IT Literature Intelligence 终审版本 (VERIFIED) 论文编号:
335| 原始基线:V0_ZCODE_BASELINE| 语义审核:pass| 图表审核:pass
Stimulus specific adaptation in inferior temporal and medial temporal cortex of the monkey
Ringo · Behavioural Brain Research · 1996 · Zotero itemID=2696
这是 Ringo 对猕猴颞下皮质(inferior temporal cortex, IT)与内侧颞叶"刺激特异性适应"(stimulus specific adaptation, SSA)现象的一篇短篇综述兼机制论证:给猴子看过的图像再次出现时,许多神经元的响应压低,而对中间插入的新图像响应不受影响。Ringo 把此前零散的观察("下降响应""熟悉效应""适应性记忆过滤")整理成一个九节的现象学清单,推导出两个候选机制的差别预言,并用一幅群体平均图(图 1)给出 SSA 相对视觉响应延迟约 50 ms 的关键证据。对今天熟悉"重复抑制"(repetition suppression)的读者,这正是该概念的 1990 年代前身文献。
研究背景
1987 年两个工作组几乎同时报告了这一现象:Brown 等与 Baylis 和 Rolls,都采用逐张序列呈现图像的任务。二者随即在一个关键参数上分岔——Baylis 与 Rolls 在颞下皮质背外侧部(按 Seltzer 与 Pandya 分区的 TEa、TEm、TE3)记录,发现只要间隔一两张新图像 SSA 就消失;而 Brown 等在颞下回(前中颞沟与嗅沟之间的 TE1、TE2、鼻周皮质/perirhinal cortex 与 Pro)记录,发现部分神经元对同一图像的适应能跨越许多介入图像。适应的持续时间因此成为理解其机制的钥匙,Fahy 等(1993)随后把可确证的适应时长推到 24 小时。术语当时各执一词,Ringo 主张用 SSA,理由是这一响应下降"专属于原刺激的再次呈现"这一本质。
到本文写作时已知:该现象不需要动物在任务中显式识别重复(不要求再认的任务同样出现);主要见于颞下回前内段与鼻周皮质;海马与下托几乎没有。尚存的缺口恰在机制与功能层面——适应究竟是全细胞疲劳还是突触效能的压抑?它与再认记忆行为是因果关系还是伴随关系?本文的任务就是把可测属性逐条立档,再把现象学清单映射为可判别的机制预言。
研究思路
文章的组织是"特性清单→机制二选一→角色推测"的三段论。第一节逐项盘点 SSA 的属性:刺激特异性、时长、幅度、诱发条件、分布部位、时间进程、出现于何种细胞、熟悉度与近因性(familiarity vs recency)之争、以及人类皮层记录的对应;然后从两个候选机制——全细胞疲劳,对比突触前、后同时活动导致的突触效能压抑(类比小脑平行纤维—浦肯野细胞的长时程压抑)——推导可观测差异,特别是对适应时序的预言(若可塑的是局部回路突触,适应应延迟于视觉响应;若是投射传入突触,则应即时)。于是"SSA 是否延迟"从一句闲话变成了判别证据,图 1 就是这一逻辑的落点;最后的"功能"一节在记忆范围内给出三个候选角色,并明确以指导实验选择为目的。
方法
本文以综述为主,但纳入了作者与 Sobotka 的两组自己的数据:其一为不要求识别重复图像的呈现任务(Sobotka & Ringo 1993,Exp Brain Res),其二为序列再认任务(未发表数据,即图 1 来源)。图 1 来自 92 个仅按视觉响应性入选的 TE2 细胞(系由大规模记录中筛选出对视觉刺激显著兴奋者),将“同一相对新颖的图像连呈 5 次”修改为“在一个相对简短的序列中,同一图像连呈 5 次”,并同步修正图注解读中的相关描述。、其间穿插另两张图像,把第 1 次与第 5 次呈现响应之差定义为 SSA 量,绘制累积脉冲计数曲线以便估读潜伏期。动物为行为训练的成年猕猴;照片式细节(训练史、记录协议)文中未详述,需回溯两人先前论文。人类部分引用 Heit 等(1988)与 Haglund 等(1994)的术中单元记录作跨种印证。
主要结果
-
存在性、占比与幅度:综合两个未预筛选的样本反推,TE1、TE2 与鼻周皮质中约四分之一的全部神经元显示 SSA——Riches 等(1991)中被首次视觉刺激兴奋的单元有 80% 响应下降(据此估计约 60% 为"真适应单元"、其余随机波动),Sobotka 与 Ringo(1994)的独立样本为 72% 下降(约 44% 真适应);平均细胞对重复的响应降低约 20–50%,强适应细胞降幅超过 50%,偶见对重复几乎完全无响应、对新图像仍反应活跃的细胞。
-
时长横跨四个数量级:从秒级(短滞后重复)到跨越上百张介入图像、持续许多分钟(Li 等 1993),到一小时后仍可测(TE2 群体 30 个视觉响应细胞中 26 个对"一小时未见"的熟悉图像响应下降,群体效应高度显著,且与同批细胞秒级短程 SSA 的个体差异相关,r=0.68),最长可确证为 24 小时(Fahy 等 1993,一组细胞保持约 100 张熟悉图像)。接触量的多寡可能是决定时长的参数(皮层下证据亦然)。
-
部位梯度清晰但海马是"盲点":Riches 等提供最佳的分布图谱——SSA 在 TE1、TE2 与鼻周皮质最强,将“鼻内侧鼻皮质(entorhinal)”修改为“内嗅皮层(entorhinal cortex)”。与 TG 次之,TE3 最弱,海马与下托(subiculum)没有;海马中也仅约 2% 单位显现 SSA,另有 1–2% 罕见的对"图像+位置"联合特异的海马细胞。作者点出一个表面矛盾:SSA 强区向海马—下托通路提供大量视觉输入,海马却无 SSA——由此推测,显示 SSA 的颞下/鼻周细胞对海马通路的贡献本来就很小。
-
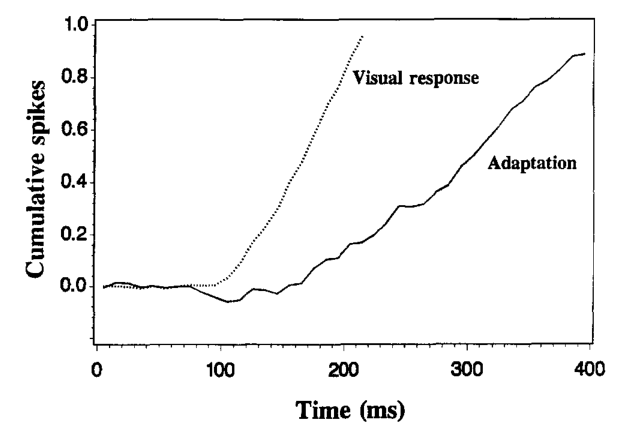
时序:适应晚于视觉响应约 50 ms(图 1)。群体平均的视觉响应潜伏期约 100 ms,SSA 的出现晚于 150 ms——对重复图像的响应在早段与新图像无异,压低在约 50 ms 后才累积形成。结合两组实验(不要求识别的任务与序列再认任务)与关键图像曾以每日一次的频率呈现数月(熟悉度足以排除"新异性"解释)的事实,这一延迟是稳健的。但文献中两种时序并存:Miller 等(1993)显示对已经熟悉的匹配/非匹配图像的比较中适应近乎即时,而初次重复的新异样本图像延迟出现、重复数次后转即时;Fahy 等也同时给出即时与延迟(约 100 ms)的个例。即时/延迟对应哪些细胞亚群与条件,文中承认尚待厘清。
-
SSA 不是简单再认的必要条件:在作者自己最近的工作(删除“社会合作者的”,保留“在作者自己最近的工作(眼间传递实验)中”即可。)中,视交叉与胼胝体压部被切断、前联合成为前脑唯一视觉信息通路的猴,同眼重复呈现出现正常 SSA,但换成另一只眼再呈现时神经元响应如同新图像——SSA 消失;尽管如此,动物行为上仍能完成再认(性能水平降低)。因此 SSA 可能贡献于日常再认成绩,但在该条件下并非必需。
图注解读
图 1 · 群体累积脉冲计数:SSA比视觉响应晚启动
原文图注:Fig. 1. The cumulative spike counts showing a delay in the SSA with respect to the visual response. These curves are averages from the entire population of cells selected only for their visual responsiveness (n= 92). The curve labeled visual response is the average cumulative spike total (above a pre-response baseline) for the first presentation of the visual stimuli. The curve labeled adaptation is the cumulative spike count for the SSA. SSA is quantified as the difference between the responses to the first presentation and the last (fifth) presentation of the same visual stimuli. This curve is the cumulative difference. The cumulative curves are presented to allow an estimate of latency. Since the measures of visual response and adaptation both employ a subtraction (of baseline or comparison activity), in the absence of a visual response or in the absence of adaptation, each value should hover around zero. The latency of the population visual response is about 100 ms, the latency of the SSA is after 150 ms. Data from Sobotka and Ringo (unpublished observations).
解读:横轴为时间(约 0–400 ms),纵轴为累积脉冲计数的差值(刻度 0–1.0,按文中量化方式给出;具体单位换算原文未标明,此图用途是估读潜伏期而非读绝对值)。读法:两条曲线的拐点差即延迟量。"视觉响应"曲线是同一图像第一次呈现的(基线校正)平均累积计数,约 100 ms 处开始上升;"适应"曲线是第 1 次减第 5 次呈现响应的累积差,约 150 ms 之后才离零——即群体水平上重复特异的压低比视觉响应晚约 50 ms 以上 onset。此图直接支撑主要结果第 4 条,也是作者把"局部回路突触可塑→适应应延迟"这一机制预言落到实处的关键证据。
讨论
机制部分,作者逐一排雷:单纯"细胞疲劳"不成立,因为疲劳应同等压低对新图像的响应,而现实是压低专属旧图像;若补救以"细胞集团"假设(同一形状激活的互馈细胞群多次循环、放大轻微疲劳),则遇到容量与时长的双重困难——SSA 细胞普遍宽调谐,少量图像就会把所有细胞的适应拉平、表象应退化为整体压抑,而 Fahy 等的细胞显然同时保有 100 张图像 24 小时。作者更看好"新异回路"式的突触压抑:细胞间同时活动的突触效能下降(类比小脑 LTD),统计上只有参与表征该图像的突触子集被削弱,容量与正向突触编码方案相当(原则上至少与神经元数成比例,可更多);且它天然预测时序的可分岔——局部突触可塑则适应延迟、投射传入可塑则适应即时——与图 1 的延迟及文献中两类时序并存的事实吻合。功能上给出三个角色:再认记忆的载体(SSA 强区与鼻周皮质损伤致再认障碍的部位吻合),但被作者自己的眼间实验削弱——SSA 消失时行为保留,只是性能降低;朝向反应(orienting response)的习惯化成分,与 Vinogradova 的兔海马习惯化记录相提并论;以及缓解 IT 中的"捆绑问题"——IT 弱空间信息使各物体的特征容易互相漂移混淆,SSA 把熟悉物体的响应压掉,让新物体独占表征通路、更易取回其记忆关联;作者同时承认这一方案处理不了"新物体与熟悉物体间的特殊交互",绝非万灵。全文反复的告诫是:海马与皮层、不同邻区乃至同区亚群之间的 SSA 性质不可外推。
一句话总结
这篇文章的功夫在组织而非发现:它把一个容易被当作"疲劳"打发掉的重复效应,整理成有可判别机制预言(适应是否延迟于视觉响应)与功能预言(缺了它行为还在不在)的现象学框架,而作者用自己团队的眼间实验亲手检验了功能预言并如实报告了否定结果。以我的理解,"SSA 并非再认所必需"反而是全文最诚实也最常被忽略的一笔——重复抑制可能更像表征系统的阶段性静噪,而不是记忆本身。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[]