IT Literature Intelligence 终审版本 (VERIFIED) 论文编号:
331| 原始基线:V0_ZCODE_BASELINE| 语义审核:pass| 图表审核:pass
Development and plasticity of the neural circuitry underlying visual recognition memory
Webster · Canadian Journal of Physiology and Pharmacology · 1995 · Zotero itemID=2689
这篇综述(Webster、Ungerleider 与 Bachevalier)把猕猴视觉识别记忆的发育时间表与两组损伤实验摆在一起,回答了一个发育神经科学里很干净的问题:为什么新生期损毁下颞叶 TE 区几乎不留永久缺陷,而新生期损毁内侧颞叶却和成人损毁一样造成永久损害。它值得读,因为它用受体发育、代谢成熟、瞬时连接保持和二次损毁四类证据,把"早期保留"从一个行为现象解释成了可指认的解剖机制——功能在婴儿期广泛分布、随成熟向 TE 局部化。
研究背景
视觉识别记忆指记住"曾见过某个物体"的能力,哪怕只有一次短暂暴露。猕猴研究表明这一功能依赖视觉信息沿枕颞通路的多级串行加工,以及该通路与内侧颞叶结构的后续连接(图 1)。成人的证据是双向的:切除内侧颞叶结构(杏仁核、海马及周围皮层区)或切除下颞叶皮层最后一个视觉区 TE(被认为存储视觉表征之处),都造成同样深刻的识别记忆缺陷(Mishkin 1982 等)。但这一"杏仁核+海马"的经典解释已被修正:仅损毁紧邻杏仁核与海马的鼻周皮层(perirhinal cortex)和内嗅皮层(entorhinal cortex)就足以造成严重识别障碍(Meunier et al., 1993),而保留鼻周皮层、选择性损毁杏仁核和海马却几乎没有影响(Zola-Morgan et al., 1992; O'Boyle et al., 1993)——至少对短延迟而言,识别记忆的神经基质是 TE 与内嗅/鼻周皮层的交互。Mishkin 与 Murray(1994)的神经模型设想:视觉系统末站的知觉每形成一次,便依次激活内侧颞区、内侧间脑和内侧前额区,这些区域再向基底前脑发信号、经其广泛皮层投射反馈回感觉皮层,反馈强化活跃神经元之间的突触,从而存储知觉的神经表征。
发育的时间线当时也已清楚:以延迟非匹配取样任务(delayed nonmatching to sample, DNMS)测量的识别记忆,猕猴约 4 个月才开始能做,1 岁仍未达成人水平,2 岁才与成人一样熟练;人类婴儿呈现同样的延后。早先的解释曾把根子放在内侧颞叶(甚至特指海马结构)的未成熟上,但作者近年自己的神经行为数据对这一看法提出了严重怀疑——缺口在于:没有证据直接指明这个漫长的发育过程到底卡在哪一环,以及"新生期 TE 损伤几乎无碍"的反常现象由什么机制托底。这篇综述正是用作者自己的一系列实验补这两块。
研究思路
文章的逻辑是"用双重分离定位瓶颈,再沿瓶颈追机制"。第一步是行为上的双重分离:在生命早期或成年期分别损毁通路的两站——内侧颞叶结构(海马结构、杏仁核复合体及邻近鼻周皮层)或下颞叶 TE 区——再用同一套 DNMS 识别测验对比"早 vs 晚"与"皮层 vs 内侧颞叶"两种维度上的后果。如果内侧颞叶早损毁与晚损毁一样糟、而 TE 早损毁显著好于晚损毁,就能断定识别记忆的迟熟源于新皮层(TE)而非内侧颞叶。第二步是为"新皮层未成熟"找独立佐证:比较新生猴与成年猴阿片受体(opiate receptor,用氚标纳洛酮结合的体外放射自显影)在新皮层各区、各层的分布;用 2-脱氧葡萄糖法在单眼视束切断加前脑连合切开的婴儿猴上,测视驱动下"明侧 vs 盲侧"半球各视觉区的局部脑葡萄糖利用(local cerebral glucose utilization, LCGU),得到逐区、逐年龄的代谢成熟曲线。第三步是解释早损 TE 后的功能保留:先解剖上比较婴儿与成人 TE/TEO 的连接(哪些是会随成熟退缩的瞬时连接),再在新生期 TE 损毁的成年猴上做解剖-损毁联合研究(看瞬时连接是否被维持、是否长出新分支),最后做二次损毁行为实验——在新生期 TE 损毁猴成年后再依次损毁 TEO 及 STP、PG、TF 等区,看保留的识别能力何时垮掉,从而反推出是谁在代偿。
方法
行为核心是 DNMS 任务(Mishkin 与 Delacour, 1975):用一次性试物,每试次分两段——习得相在中央食物井上呈现有食物的样本物体,猴子移开物体取食;10 秒后测试相,把已无食物的样本与有食物的新异物体并排放在两侧食物井上,猴子须选新异物体才能得食。每天 20 个试次(间隔 30 s)、每天用新的一套物体,达到连续 100 试次中 90 次正确的标准后,把习得-测试延迟从 10 s 逐步加到 30、60、120 s,或把需记住的样本数从 1 个加到 3、5、10 个,构成"识别表现测验"。发育轨迹通过测 3 个月至 4 岁的猴子获得;早期损毁组为新生期双侧损毁(内侧颞叶组含海马结构、杏仁核复合体与邻近鼻周皮层;TE 组为双侧 TE 切除),10 个月测 DNMS,部分动物出生后不久还用成对比较任务(测对 18 秒前看过物体的记忆)复测,成年后再测确认长期效应。受体研究用新生猴与成年猴脑切片的 [³H]纳洛酮体外结合自显影;代谢研究对 1 天、1 周、1、2、3、4、6 月龄的婴儿猴做单侧视束切断加前脑连合切开,被动注视几何图案时注射 2-脱氧葡萄糖,使视网膜直接驱动的代谢活动限于一个半球,从而在同一动物内比较明侧与盲侧半球的各区 LCGU。解剖-损毁联合研究比较"婴儿期 TE 损毁的成年猴"与"成年期 TE 损毁猴"的连接图式:在 TEO 注射麦胚凝集素偶联辣根过氧化物酶(WGA-HRP),以逆行标记细胞与顺行标记终末判定投射是否维持或扩展;二次损毁实验则在新生期 TE 损毁猴成年后补切 TEO、或 STP+PG+TF、或 TEO+STP+PG+TF,并设正常猴成年期联合损毁 STP+PG+TF+TEO 的对照组,再测识别表现(各组 n 为 3–4 只)。
主要结果
-
识别记忆的发育漫长,且与 TE 的成熟同步。3 个月到 4 岁的纵向测试显示:约 4 个月前猴子根本做不了 DNMS,之后学习能力渐升,1 岁仍未达成人水平,2 岁才与成人一样熟练;在加大延迟和样本数目的识别表现测验中,平均成绩随年龄系统性提高。人类婴儿的 DNMS 发育呈同样的延后模式(Diamond 1990; Overman 等)。这一行为时间表后来与代谢及电生理数据对上了:TE 的成人化恰在 4 个月前后出现——识别能力的出现与 TE 的成熟同时发生。
-
早损与晚损的双重分离:瓶颈在新皮层 TE 而非内侧颞叶(图 2)。新生期双侧内侧颞叶损毁的婴儿猴 10 个月测 DNMS 严重受损,而新生期 TE 切除者显著保留。量化对比(相对各自正常对照的降幅):内侧颞叶损毁婴儿降 22%、成人降 32%;TE 损毁成人降 29%,而 TE 损毁婴儿只降 8%。这种分化在出生后早期就已存在——术后不久用成对比较任务(含对仅看过 18 s 的物体的记忆)复测,早损 TE 组基本正常、早损内侧颞叶组显著丧失;且效应是永久的,动物成年后依然如此。由此得出三点推论:内侧颞叶结构从生命早期就在支撑视觉识别记忆、其他结构即便在新生期损伤后也无法接管;早损 TE 的显著而永久的保留说明 TE 在损毁时功能上尚未成熟、并非关键;DNMS 的漫长发育不能归因于内侧颞叶不成熟,功能性的 TE 不成熟才是限制因素。
-
受体发育证明新皮层(含 TE)出生时未成熟(图 3)。新生猴与成年猴的 [³H]纳洛酮结合对比:杏仁核复合体等皮层下结构和海马结构等古皮层区在两个年龄的标记样式完全相同且密度明显高于新皮层——是"成人样"的;新皮层则有两大差异:成人各区密度参差(联合区如 TE 最高、初级感觉区最低),新生猴却均匀一致;成人各区的六层内呈现区特异性层状模式,新生猴除初级视皮层外全部新皮层区都只有单一模式的层状分布(下层均匀致密)。可见阿片结合位点的出生后重新分布主要发生在皮层罩内,与这些区域树突和突触组织的迟熟相呼应——神经发生和细胞迁移虽在出生前完成,新皮层成熟却远延至出生后。
-
代谢成熟曲线:TE 比视皮层前部晚约一个月(图 4)。在明侧半球的所有枕颞视区,绝对 LCGU 在最小年龄组最低、4 个月达峰、6 个月回落到成人水平。更有意思的是半球间对比揭示了一个 3 个月的"成熟台阶":3 月龄时纹状区 V1 和前纹状区 V2、V3、V4 的半球间葡萄糖消耗差已达成人样水平,而下颞叶 TEO 与 TE 要到约 4 个月才达到。这与电生理证据(Rodman, 1994)相互印证——TE 神经元早在第 2 个月就有成人样的反应性质(包括对面孔等复杂图案的形状选择性),但反应更弱、潜伏期更长,且麻醉下到约 4 个月前无反应。作者据此推断:头 4 个月内 TE 的代谢活动可能不足以产生维持视觉识别所需的动作电位;TE 代谢成人化与 DNMS 能力出现同时发生,提示识别能力的迟熟源于下颞叶皮层的不成熟——要么无法形成完整的物体表征,要么内侧颞结构的反馈无法在 TE 上完成存储,或两者兼有。
-
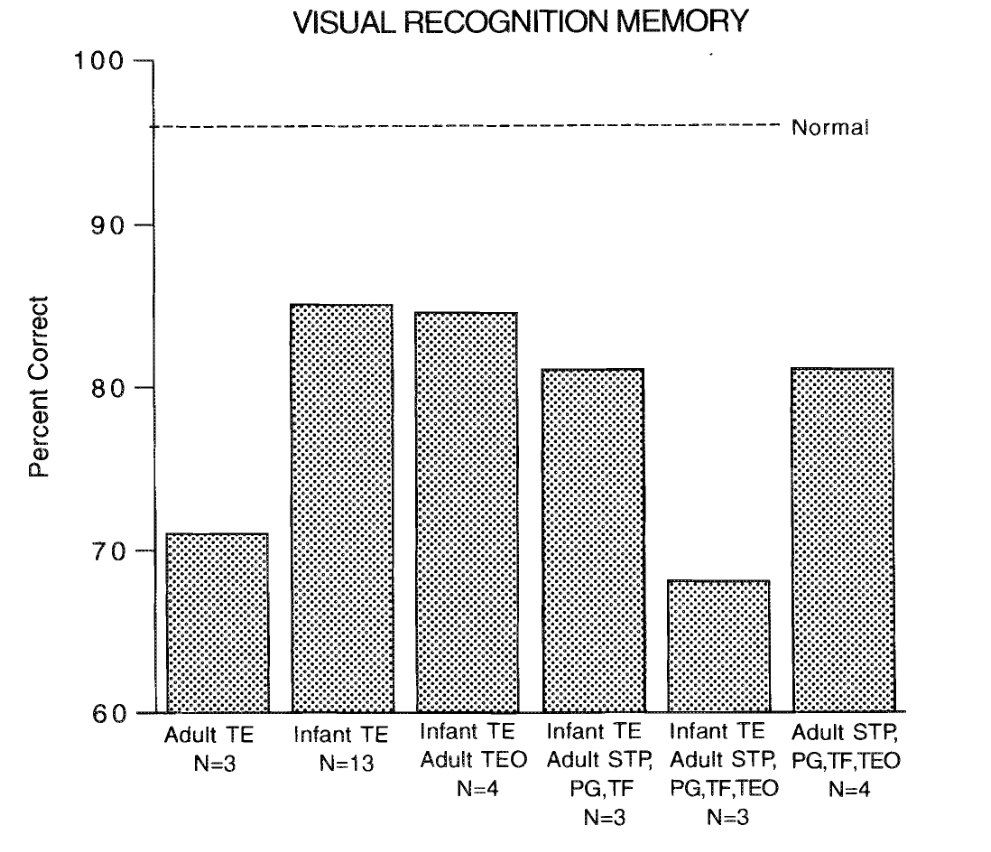
解剖可塑性与二次损毁:功能在婴儿期广布、由多区共同托底(图 5)。婴儿与成人的 IT 连接虽大体相似,但出生后早期存在大量瞬时连接与投射野的收缩:TEO 在婴儿期投射到杏仁核外侧基底核(LB)而成人没有;TEO 婴儿期还投射到海马旁区 TF 而成人没有;婴儿 TE 到鼻周区 35/36 的投射终止于第 I、IV 层,成人只限于第 I 层;TE 到上丘、丘脑内侧背核、尾核膝部等皮层下结构的投射在婴儿期也更广泛。关键的联合解剖-损毁研究显示,新生期 TE 损毁会带来两类重组:TEO→LB 这一本来注定消失的瞬时投射被维持下来(TEO 内注射 WGA-HRP 在 LB 同时得到逆行标记细胞与顺行标记终末);TEO 本来限于杏仁核外侧核(L)背部的投射扩展到整个 L,侵入了原本由 TE 终末占据的终止空间——不过 TEO→TF 的瞬时投射并未因早损 TE 而维持。行为上的二次损毁实验则表明这些区域的分工:新生期 TE 损毁猴成年后的 DNMS 平均成绩为 85%,再补切 TEO 后为 84.5%、补切 STP+PG+TF 后为 81%,都没有下降;只有当 TEO 与 STP、PG、TF 一起被切除时,成绩骤降到 68%——达到了成年期 TE 损毁组(71%)的损害程度。这说明 TEO 冗余投射的维持连同 STP、PG、TF 等颞外皮层的重组,共同介导了本会在新生期 TE 投射丧失后失效的功能。
图注解读
图 1 · 视觉信息流与记忆通路
原文图注:Fig. 1. Flow of visual infomation from primary visual area (VI) through prestriate cortical areas (V2, V3, and V4) to inferior temporal areas TEO and TE, and from TE into the limbic structures (rhinal cortex, WH; amygdala, AMPIG; hippocampaas, HIPPO). Sulcal abbreviations: ai, inferior arcuate; amt, anterior middle temporal; as, superior arcuate; ce, central; ec, external calcarine; io, inferior occipital; ip, intraparietal; la, karal; bu, lunate; p, principal; pmt, posterior middle temporal; st, superior temporal. Reproduced from Ungerleider and Murray 1992.
这张通路线图(转引自 Ungerleider 与 Murray 1992)画出视觉信息从 V1 经前纹状区 V2、V3、V4 到下颞叶 TEO 与 TE,再由 TE 进入边缘结构——鼻周皮层(RH)、杏仁核(AMYG)和海马(HIPPO)——的层级流动,并标出相关脑沟的缩写。读图要点:它把全文讨论的两个关键站点(TE 作为视觉表征的存储站、鼻周皮层作为内侧颞叶一侧的关键接口)放进同一张解剖框架里,是理解"皮层站 vs 内侧颞叶站"双重分离设计的空间前提。
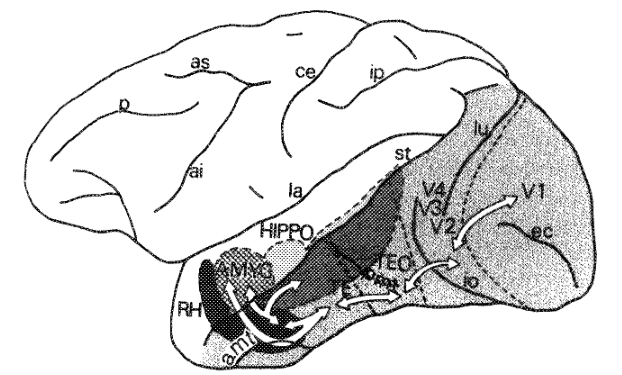
图 2 · 早损与晚损的行为后果对比
原文图注:Fig. 2. Mean scores ~n the recognition performance test (averaged across delays and list lengths) of 10-monh-old monkeys (operated neonatally) and adult monkeys. N, normal controls; TE, animals with bilateral TE lesions; MT, animals with bilateral medial temporal lobe lesions. Adapted from Bachevalier 1990.
这是全文最关键的一张行为图:柱状给出 10 月龄(新生期手术)与成年猴在识别表现测验(跨延迟与样本长度平均)中的成绩,分组为正常对照 N、双侧 TE 损毁、双侧内侧颞叶损毁,婴儿与成人两段并排。读图要点:内侧颞叶组的婴儿柱与成人柱都明显低于对照(分别约降 22% 与 32%),TE 组的成人柱同样低(降 29%),唯独"婴儿+TE"柱几乎不掉(仅降 8%)——交叉式的双重分离一目了然,直接支撑结果第 2 条"迟熟瓶颈在 TE"的结论。
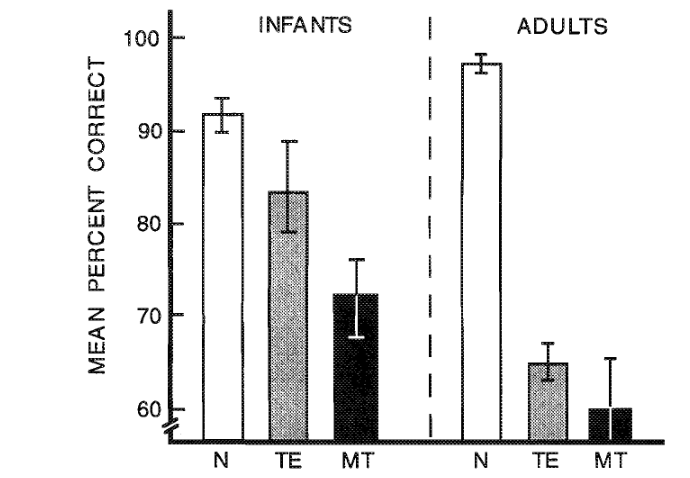
图 3 · 新生与成年新皮层的阿片受体分布
原文图注:Fig. 3. Representative autoradiographs showing [3H]naloxone binding in the neocortex of (A) the newborn compared with (B) the adult. Whereas the newborn displays uniformly dense binding throughout the lower layers in d l cortical areas, the adult brain showed regional variation of binding among the cortical areas, with the highest concentrations in the palysensory areas (e.g., PG, STP, TF) and the lowest in the modality specific sensory areas (e.g., S 1, TE). Sulcd abbreviations as in Fig. 1. Bars, 2.5 m in Fig. 3A and 3.0 rim in Fig. 3B. Adapted from Bachevalier et al. 1986.
新生猴(A)与成年猴(B)新皮层冠状切面的 [³H]纳洛酮结合自显影照片(比例尺 A 2.5 mm、B 3.0 mm)。读图要点有两处对比:A 图中各区、各层(尤其下层)的结合几乎均匀一致;B 图中结合密度则因区而异——多感觉区(PG、STP、TF)最高、特化感觉区(S1、TE)最低,且各区出现特异的层状模式。这张图把"新皮层出生时未分化、随成熟分区域分层定型"的受体证据摆到了眼前,支撑结果第 3 条,也说明作为联合区的 TE 出生后要经历大幅的化学重构。
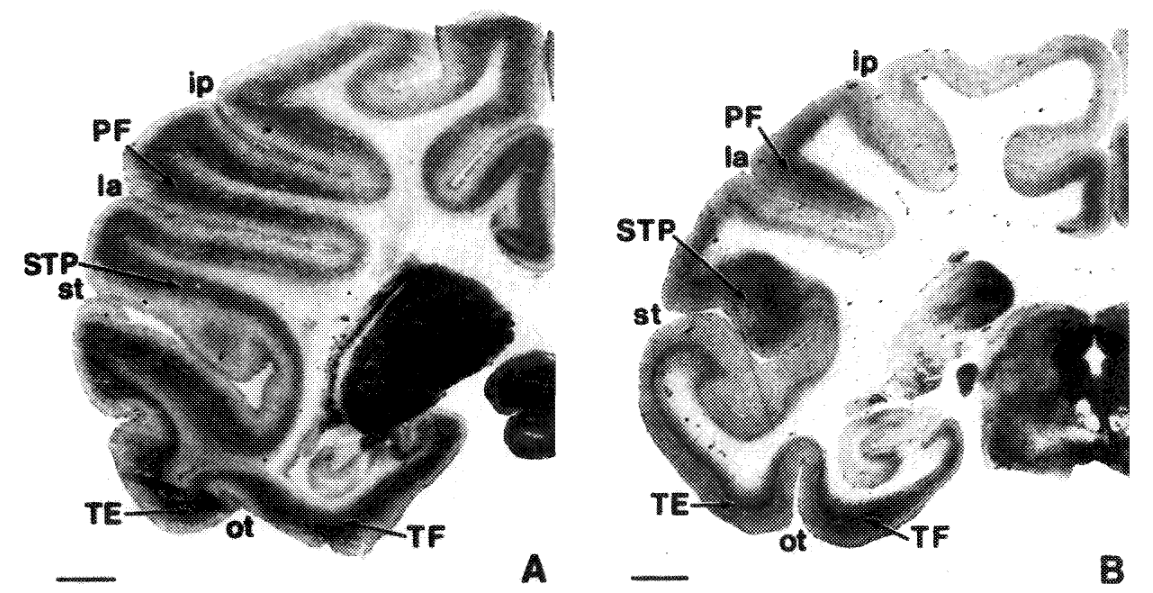
图 4 · 各视觉区代谢成熟的时间表
原文图注:Fig. 4. The percent reduction in the local cerebral glucgsse utilization (LCGU) in each corticd area measured in monkeys from 2 days to 4 years of age. For each animal, the percent reduction of LCGU in the blind compared with the seeing hemisphere was calculated by dividing the absolute LCGU in the blind by the absolute LCGU in the seeing hemisphere, and multiplying this ratio by 100. Adapted from Bachevdier et al. 1991.
横轴为腹侧皮层视觉通路的各区(V4、V2、V3v/V4v、TEO、TE 等),纵轴为盲侧相对明侧半球 LCGU 的百分变化(按图注定义:盲侧绝对值除以明侧绝对值再乘 100),横跨 2 天到 4 岁的多个年龄组。读图要点:视驱动带来的半球间代谢差在 V1–V4 一线 3 个月就达到成人样,而 TEO 与 TE 要到约 4 个月——成熟曲线按皮层层级从后往前逐区到位,TE 恰好落在 DNMS 能力出现的时点上,支撑结果第 4 条。
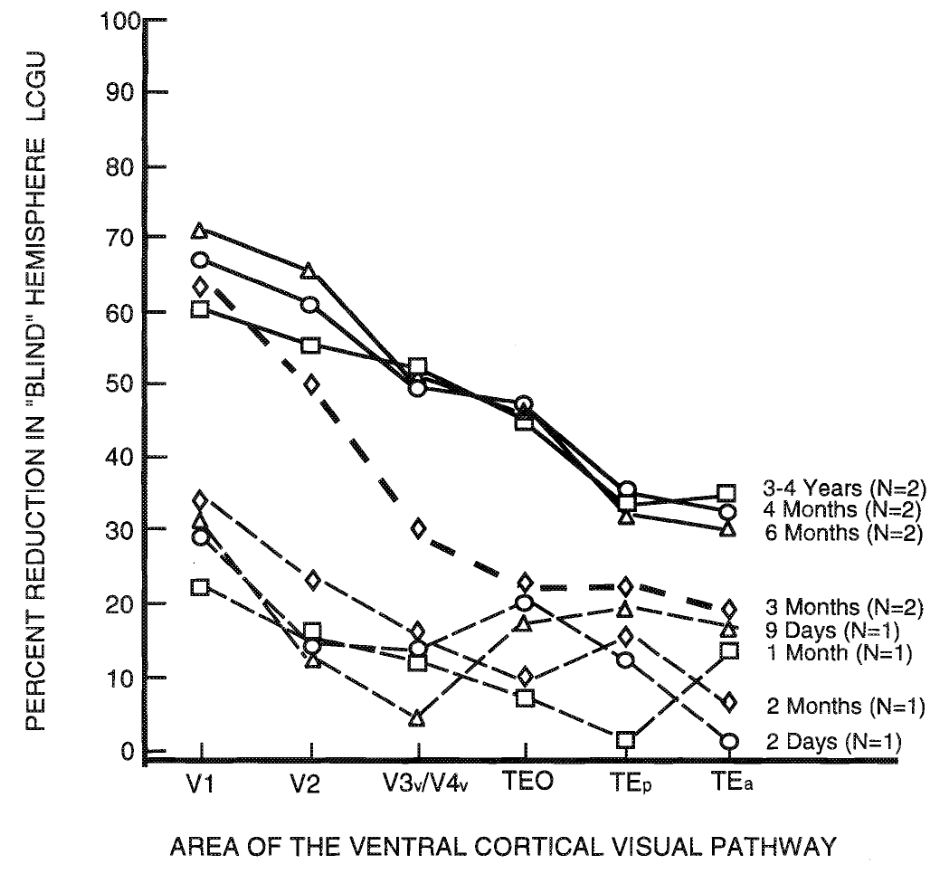
图 5 · 二次损毁实验:谁在托底
原文图注:Fig. 5. Mean scores on the recognition performance test, averaged across delays and list lengths, for six groups sf monkeys. The groups include monkeys with lesions of area TE in adulthod, monkeys with lesions of area TE in infancy, monkeys with lesions of area TE in infancy and an additional lesion sf area TEO in adulthood, monkeys with lesions of area TE in infancy and an additional lesion of areas STP, B e , and TF in adulthood, momkeys with a lesion of area TE in infancy and an additional lesion sf areas STB, BG, TF, and TEO in infancy, and finally normal monkeys with a combined lesion of areas STP, PG, TF, and TEO in adulthood. The broken line represents the mean performance of n o m d adult monkeys.
六组猴在识别表现测验上的平均成绩(跨延迟与样本长度平均):成年期 TE 损毁、婴儿期 TE 损毁、婴儿期 TE 加成年期 TEO、婴儿期 TE 加成年期 STP/PG/TF、婴儿期 TE 再加 STP/PG/TF/TEO 的联合损毁,以及正常猴的成年期 STP/PG/TF/TEO 联合损毁对照;虚线为正常成年猴的平均水平。读图要点:三根"补刀"柱(婴儿 TE 后再切 TEO、或再切 STP+PG+TF)都还在 81%–84.5% 的高位、未跌破虚线多少;唯独把 TEO 与 STP/PG/TF 一起切掉的组合把成绩打到 68%,与成年期 TE 损毁组(71%)相当。这张图是"多区共同代偿、单个区域不可替代"的结论的直接证据,支撑结果第 5 条末段。
讨论
作者的讨论把所有证据收拢成一个发育框架。第一层结论:视觉识别记忆的重要发育变化集中在出生后头 6 个月,而成人水平的熟练要到 2 岁;这一成熟节律与下颞叶联合皮层(具体说 TE 区)的长期成熟相吻合——神经行为、代谢与电生理三条独立证据都指向 TE,而非内侧颞叶。第二层结论:正是这种新皮层不成熟赋予了出生后大脑在早期损伤后的高度可塑性。TEO-杏仁核瞬时连接的存活与新分支的长出本身虽不足以解释识别记忆的永久保留(杏仁核对识别记忆并非关键),却展示了出生后重组的惊人潜力;而二次损毁实验把颞外皮层(STP、PG、TF)也拉进代偿网络,暗示这些区域凭借早期的弥散解剖连接,在发育早期有能力承担多种功能,随成熟这些功能才逐渐局部化到各自的特定皮层区。按这一逻辑,早期脑损伤会使某一功能保持广泛分布,从而解释早期脑损伤后功能常获保留这一跨领域现象——作者以此与语言发育(Bates 1992)、前额叶(Goldman-Rakic et al., 1983)和早期局灶脑损伤后恢复(Kolb & Whishaw 1989; Stiles & Thal 1993)等文献对话。作者也明确承认了边界:这些代偿机制的具体性质"仍有待阐明",二次损毁实验能证明哪些区域参与托底,却不能说明托底是如何实现的;瞬时连接的保持与重组的证据来自杏仁核侧的投射,而真正承担记忆功能的通路机制尚属未知。
一句话总结
我的读法是:这篇综述最有力的一点是它把"孩子比大人恢复得好"这个临床直觉拆成了两半——内侧颞叶的损害从新生儿期起就无药可救,而新皮层的损害之所以能被托住,是因为功能尚未落户:婴儿期的识别记忆原本就摊在 TEO、STP、PG、TF 好几处,TE 只是最后的收敛点。不过文中自己说得很清楚,这套"广泛分布→逐渐局部化"的说法目前只有行为与解剖的相关证据,代偿的因果机制仍是空白。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[] - Fig2: 提取质量
good,对齐度full,识别面板[] - Fig3: 提取质量
good,对齐度full,识别面板[A, B] - Fig4: 提取质量
good,对齐度full,识别面板[] - Fig5: 提取质量
good,对齐度full,识别面板[B]