IT Literature Intelligence 终审版本 (VERIFIED) 论文编号:
318| 原始基线:V0_ZCODE_BASELINE| 语义审核:needs_revision| 图表审核:pass
Stimulus selectivity and state dependence of activity in inferior temporal cortex of infant monkeys
Rodman · Proceedings of the National Academy of Sciences of the United States of America · 1991 · Zotero itemID=2656
这篇短文在最小只有 5.5 周大的猕猴颞下皮层(inferior temporal cortex, IT)做单细胞记录,回答一个非此即彼的问题:编码复杂物体的"成人式"神经元特性是天生就位的,还是要靠漫长的视觉经验浇灌出来。答案分两层:改为:清醒幼猴IT神经元已表现出与既往成猴研究相似的形状选择性和双侧感受野等基本性质,但是否存在细微定量差异尚未确定。;但在麻醉状态下,4 月龄以前的 IT 几乎"看不见"任何视觉反应——改为:幼猴IT视觉反应的检出率强烈依赖记录状态,在4月龄以下动物中清醒条件远高于麻醉条件;具体机制尚未由该实验分离。(behavioral state)。将“自上而下的调制”改为“行为状态或非视网膜因素的影响”,并注明本研究未区分注意、觉醒水平、麻醉药理作用及反馈调制。。
研究背景
知觉发展是"经验"还是"先天组织"占主导,是心理学与生物学的老问题。纹状皮层(striate cortex)的大批研究已经证明,朝向选择性、双眼性这类简单特性是两种影响共同塑造的;但复杂识别能力的生理机制如何发育,关注者少得多。灵长类对人脸、食物、任意实验刺激等复杂对象的识别能力令人印象深刻,而颞下皮层(IT,即细胞构筑区 TE)正是参与复杂刺激知觉与保持的关键"联合"皮层:成猴损毁 IT 造成严重且永久的视觉识别缺陷,人类相应皮层损伤产生类似的障碍;成体 IT 神经元对刺激形状和颜色有选择性、具有跨越中线的大范围双侧感受野(receptive field, RF),提示其在跨视网膜位移的刺激泛化中起作用。
矛盾的事实摆在面前:婴猴期做的 IT 损毁对识别能力影响相对轻微(无论当时测还是长大后再测);行为上的识别能力要到一岁左右才缓慢达到成体水平;代谢活动研究也提示 IT 在至少 4–6 月龄之前功能上未成熟。那么问题就是:幼猴的 IT 神经元到底有没有编码复杂物体的独特性质,还是必须经过长时期的视觉经验才能形成成体样特性?
研究思路
作者的策略是"拿成人的尺子量婴儿":直接在幼猴 IT 记录单细胞,使用的刺激体系(立体物体、猴脸及其打乱版、线条、控制物体、FD 刺激)与既往成猴研究完全同源,从而把幼体与成体的反应特性放在同一坐标系下比较。改为:研究总体包含麻醉与清醒记录组;其中3只曾接受清醒记录的动物又在3–3.5月龄接受麻醉复测,构成有限的个体内对照。——作者本意可能是控制记录条件,但这两种状态的平行数据恰好把"行为状态"变成了本研究最重要的一根主轴:如果幼婴只在清醒时才有视觉反应而麻醉时没有,那"发育未成熟"的解释就必须与" extraretinal 因素(视野之外的调制因素)尚未成熟"的解释分开检验。对照设置也很讲究:在同一次麻醉记录中顺带测纹状皮层与 MT 区(中颞区),并在清醒后把同一批动物重新麻醉复测,用来排除"动物状态差"或"早期记录造成不可逆损伤"这两种平凡解释。
方法
被试为 17 只幼猴(16 只食蟹猴 Macaca fascicularis、1 只恒河猴 Macaca mulatta),年龄 5.5 周至 7 个月,反复多次记录(每只 1–10 次,间隔至少 1 周,每次 10–12 小时)。麻醉记录:提前一周在麻醉无菌条件下植入记录室与头部固定栓;记录时用 N2O/O2(7:3)混合气体加 2% 氟烷(halothane)维持麻醉,泮库溴铵(pancuronium bromide)肌松、人工呼吸,瞳孔散大、屈光矫正并佩戴接触镜。清醒记录:另植入巩膜搜索线圈(scleral search coil),一周后训练猴子在 2°–3° 窗口内注视 0.3° 光点 700–1000 ms 以换取果汁,动物坐在垫软毛巾的迷你猴椅中、磁线圈监测眼位;猴注视 200 ms 后刺激出现、持续 500 ms。刺激分两类:三维实物(头模型、猴玩偶、刷子、塑料食品等)与计算机控制的幻灯片(猴脸、打乱的脸、线条、控制物体与 FD 刺激——由描述边界曲率的形式化方法衍生,按"周长上每周期数"(即凸瓣数)变化频率);多数刺激视角 3°–6°,在注视中心呈现 10 次。反应显著性以刺激期平均放电率与同批试次基线比较(t 检验,P<0.05)。全部数据共分离 384 个 IT 神经元。
主要结果
- 幼婴 IT 的感受野已是成体样式:麻醉动物中三分之二的感受野越过中线至少 3° 伸入同侧视野(图 1A),反应强度一律以中央凹最强、对侧强于同侧;清醒幼婴中感受野大小较难测定,但同侧视野反应明确存在(图 1B),即便在很小的动物身上也是如此。
- 清醒幼婴的刺激选择性与成体无异(图 2):许多细胞对形状有选择性,例如对 FD 刺激的边界曲率频率有调谐(图 2A);在标准面孔/非面孔刺激组内(图 2B),有的细胞只对单一图像有反应(细胞 1、3),有的对组内许多但非全部图像有反应(如细胞 2),少数只对特定侧面像有反应(如细胞 4)。
- 群体层面的选择性分布也复刻成体(图 3):以"引起显著反应的投射刺激百分比"刻画每个细胞,分布既有极其挑剔的细胞、也有对一批关键特征不明的复杂刺激子集起反应的细胞,与成体 IT 的画像一致。
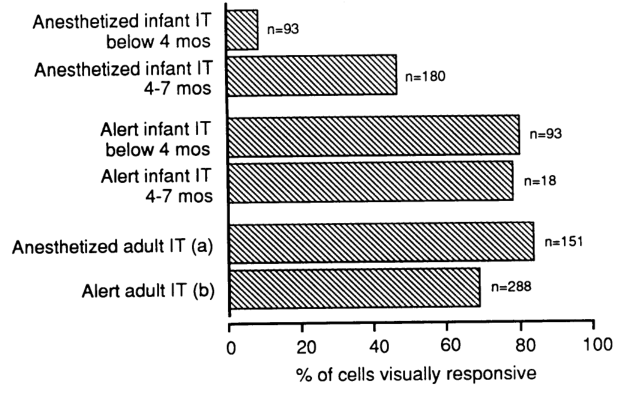
- 状态依赖是关键发现(图 4):麻醉状态下 4 月龄以下幼猴有反应的 IT 细胞极少,4–7 月龄组约为成体的一半;而清醒的 4 月龄以下幼猴,其视觉反应细胞比例与麻醉成猴或清醒行为成猴都没有显著差异(χ2 检验)。对照实验支持这一效应特异于 IT:同一麻醉记录中纹状皮层与 MT 的细胞多数有反应且具选择性(34 个记录点中 29 个);3 只清醒记录过的幼猴在 3–3.5 月龄重新麻醉复测时 30 个 IT 细胞中仅 1 个有反应,之后清醒时又记录到更多有反应的单元;此外地西泮(diazepam)深度镇静下 4–11 周龄猕猴 IT 同样无反应。
图注解读
图 1 · 记录部位、双侧感受野与清醒幼婴的视野映射
原文图注:FIG. 1. (A) Location of recording area (shaded in lateral view of macaque brain) and bilateral RFs of IT cortex cells in anesthetized infant monkeys, taken from levels a and b. hm, Horizontal meridian; vm, vertical meridian; c, contralateral visual field; i, ipsilateral visual field. (B) Responses (poststimulus time histograms) obtained at different sites in visual field to the stimulus (a set of lines) in an alert infant monkey performing the behavioral task shown (Inset); 200 ms after the monkey fixated a small spot of light, the stimulus came on for 500 ms.
A 部分左侧是 Macaque 脑侧面观,阴影标出记录区(TE 区),右侧是麻醉幼婴 IT 细胞在两个记录水平(a、b)上的双侧感受野示意:hm/vm 为水平/垂直子午线,c/i 为对侧/同侧视野——看点是多数感受野横跨中线伸入同侧半边。B 部分是清醒幼婴在行为任务中(插图为任务时序:注视 200 ms 后刺激出现 500 ms)对一组线条刺激在视野不同位置呈现时的刺激后时间直方图(poststimulus time histogram),中央注视点附近反应最强,且同侧位置也有可测反应。这张图支撑结果 1:感受野的空间构型在幼体已具成体特征。
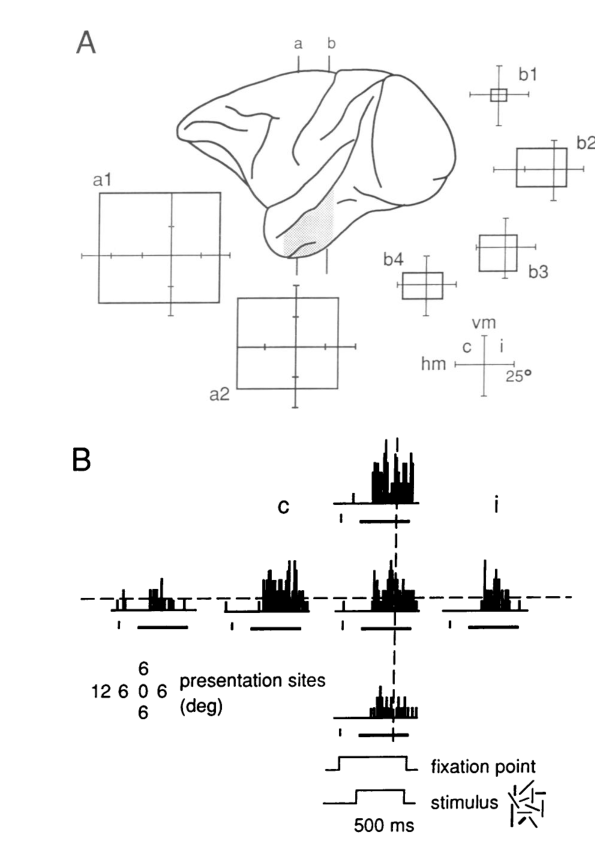
图 2 · 清醒幼婴 IT 神经元的刺激选择性
原文图注:FIG. 2. Stimulus selectivity of IT neurons in alert infant macaques. Stimuli were white on a dark background (FDs, stimuli c and d in C) or colored (remaining stimuli), subtended 3°-6° of visual angle and were presented for 10 trials at the center of gaze. (A) Tuning curves for FD frequency. Stimuli are shown below. (B) Responses from individual IT cortex cells to the set of stimuli shown in C. Asterisks indicate statistically significant responses. (C) Stimuli: a, adult front view, passive; b, baby front view, threat; c, FD; d, lines; e, scramble of a; f, multicolored square; g, adult profile 1; h, adult profile 2; i, scramble of g; j, scramble of h; k, adult front view, threat; l, adult front view, yawn; m, adult 3/4 view, passive; n, adult 3/4 view, threat; o, adult 3/4 view, yawn.
这是全文证据最密的一张图。A 是 FD 频率调谐曲线:横轴为 FD 频率(2、4、8、16、32、64 周期),纵轴为放电率,曲线在某几个频率处凸起,说明单个细胞偏好特定边界曲率复杂度。B 是若干单个细胞对刺激组(C)中 15 个刺激的反应条形,星号标记经 t 检验(P<0.05)显著高于基线的反应——对照 C 的刺激清单(成猴正面/侧面/3/4 视角、表情变化、打乱版、线条、FD、彩色方块等)可以读出各细胞"认什么":有只认一张图的,有认一类姿态的。这张图支撑结果 2:改为:清醒幼猴细胞表现出FD频率调谐,并对包含不同面孔视角、表情、打乱图像及非面孔刺激的集合产生差异化反应。,与成体记录同型。
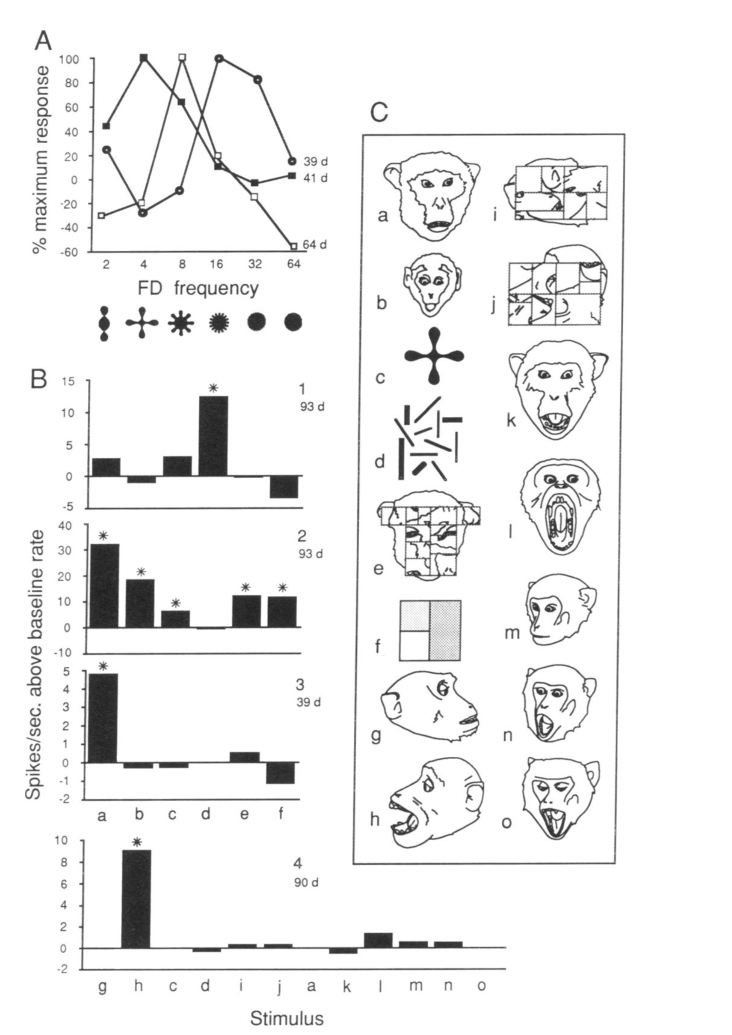
图 3 · 群体选择性分布直方图
原文图注:FIG. 3. Distribution of selectivity in the population of IT neurons studied in alert infant macaques. Bar corresponding to 0 indicates cells unresponsive to projected stimuli.
横轴是每个细胞"被投射刺激引起显著反应的百分比"(0–100%),纵轴是细胞数目;对应 0 的柱子代表对投射刺激完全无反应的细胞。读这张图的方法是与成体 IT 的同类分布对照:形状上两头都有量——最左端是无反应/极挑剔的细胞,中间与右端是对不同比例刺激子集起反应的细胞——这正是成体 IT 的典型画像。它把图 2 的个例证据升级为群体层面的结论(结果 3)。
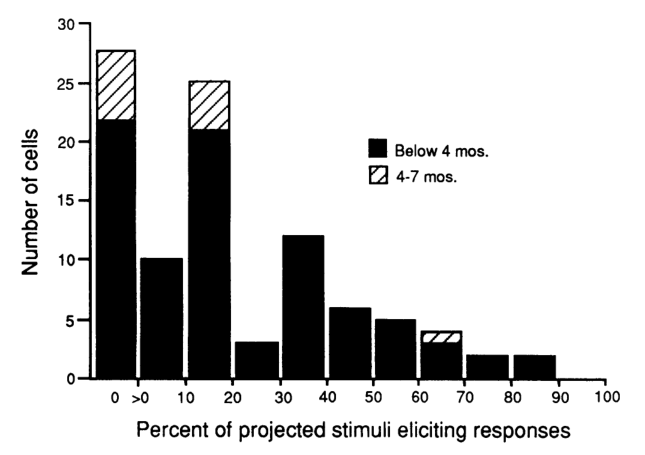
图 4 · 各组视觉反应细胞比例对比
原文图注:FIG. 4. (A) Incidence of visually responsive neurons as percentage of total cells studied for anesthetized and alert infant monkeys and for comparable samples obtained from adult monkeys. (a), From ref. 5; (b), from ref. 23.
横轴为"有视觉反应的细胞占所研究细胞的百分比",六根柱依次是:麻醉幼婴(<4 月)、麻醉幼婴(4–7 月)、清醒幼婴(<4 月)、清醒幼婴(4–7 月)、麻醉成猴(引自 ref. 5)、清醒行为成猴(引自 ref. 23)。看点是"清醒 <4 月"这一柱与成体两柱大体持平,而"麻醉 <4 月"一柱几乎贴地——改为:图4显示视觉反应细胞比例同时随年龄组和记录状态而异,尤其是4月龄以下组在清醒与麻醉条件下差异明显;本文未报告正式的年龄×状态交互检验。(结果 4)。文中统计为 χ2 检验(清醒 <4 月与成体无显著差异);各柱样本量在图内标注,正文另给出关键对照数字:麻醉复测时 30 个细胞中 1 个有反应。
讨论
作者的解读分正反两面。正面:IT 神经元的基本反应特性在 5.5 周龄即已就位,说明延长的成熟期与视觉经验并非成体样复杂物体编码的必要条件。反面则回答"那为什么行为上的识别能力长得慢":其一,IT 与参与识别记忆的其他结构之间的连接模式仍在发育(Webster et al. 1991);其二,不能排除反应幅度或调谐上存在微妙的量的差异——文中明确说这有待进一步工作;其三,成猴的 IT 活动与识别表现都深受注意、努力、刺激意义等 extraretinal 变量的影响,这些影响在很幼小的猴子身上可能尚未完全生效。而麻醉下幼婴 IT 反应的稀缺本身,就是行为状态对这一区域功能重要性的直接证词——这种影响在纹状皮层、MT 这类"低阶"区域显然不存在。作者的落点带有方法论意味:猴 IT 的发育是遗传、感觉与认知因素在复杂能力(如视觉识别)形成中汇聚的绝佳模型。
一句话总结
这篇是"先天 vs 经验"之争里少见的把问题拆成两半的研究:编码硬件(形状选择性、双侧感受野)早熟得惊人,而让这块皮层在麻醉下也开口说话的调制机制来得晚得多。以我的理解,图 4 里"清醒但未满 4 月 vs 麻醉但已满 4 月"的对照比任何发育曲线都更有说服力——它提示联合皮层的"在线状态"本身就是一个发育中的变量,这一逻辑到今天仍然是解释意识相关活动时绕不开的参照。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[A, B] - Fig2: 提取质量
good,对齐度full,识别面板[A, B, C] - Fig3: 提取质量
good,对齐度full,识别面板[] - Fig4: 提取质量
good,对齐度full,识别面板[A]
关键事实与局限性声明
- 审校纠偏: {'claim': '幼猴IT选择性与双侧感受野“与成猴无异”', 'classification': 'OVERCLAIM', 'reason': '原文支持adult-like或similar,不支持全面统计等效。'} -> 评注:
- 审校纠偏: {'claim': '记录揭示了“自上而下的调制”', 'classification': 'OVERCLAIM', 'reason': '实验未直接测量或操纵特定反馈、注意或其他自上而下机制。'} -> 评注:
- 审校纠偏: {'claim': '图4证明年龄与状态存在交互', 'classification': 'OVERCLAIM', 'reason': '没有正式交互检验,且成体比较数据来自其他研究。'} -> 评注:
- 审校纠偏: {'claim': '行为状态影响在纹状皮层和MT“显然不存在”', 'classification': 'OVERCLAIM', 'reason': '对照只显示这些区域在麻醉中通常仍有反应,不能证明不存在状态调制。'} -> 评注:
- 审校纠偏: {'claim': '幼猴IT已经具备面孔偏好并对打乱图像无反应', 'classification': 'OVERCLAIM', 'reason': '图2展示混合刺激集合内的单细胞选择性,没有系统的类别偏好或完整打乱对照分析。'} -> 评注:
- 补充要点: : (第 7573 页)
- 补充要点: : (第 7574 页)