IT Literature Intelligence 终审版本 (VERIFIED) 论文编号:
283| 原始基线:V0_ZCODE_BASELINE| 语义审核:needs_revision| 图表审核:pass
Body patches in inferior temporal cortex encode categories with different temporal dynamics
Kumar · Journal of Cognitive Neuroscience · 2019 · Zotero itemID=2426
这篇文章在猕猴 STS 的两个 fMRI 定位的身体补丁(body patch)——中段 STS 身体区(MSB)与前段 STS 身体区(ASB)——里,用相同的动物、相同的 100 张图像和线性 SVM 解码,追踪物体类别表征在神经反应进程内如何演化。核心 surprising 的发现是:较靠后的 MSB 反而比靠前的 ASB 更早达到显著分类(约早 20 ms),且编码相对静态;而 ASB 呈现"双相"(biphasic)的动态编码——反应早期与晚期是两套可分的编码,只对上位(superordinate)类别如此,对"人身体 vs 猴身体"这种基本水平(basic-level)判别则两区动态相似。这对动辄把多个脑区信号"炖在一起"的 EEG/MEG 解码动力学解读敲了一记警钟,也为"前部 IT 补丁表征更抽象也更动态"的观点补上了身体系统的证据。
研究背景
物体表征在单个脑区的神经反应进程内是否随时间改变,是视觉神经科学的悬案之一。人类 EEG/MEG 解码研究给出一个共同观察:训练与测试时窗一致时解码好、两者的时间错开就变差,于是得出"视觉类别编码高度动态"的结论;但 MEG 空间分辨率低,无法区分这种动态究竟源自同一群神经元编码的持续演化,还是不同脑区(各有不同表征)在不同时段轮流贡献信号所致。回答这个问题需要高空间分辨率的单单元记录,而猕猴 IT 皮层的单单元研究本身也彼此矛盾:Meyers 等(2008)在习得的人工类别上报告动态编码,Kumar 等(2017)与 Zhang 等(2011)对自然物体的编码则相当静态——差异可能来自记录的具体亚区、任务或类别层级,当时无人厘清。
另一个争议是类别层级与速度的关系:一些研究(猕猴 IT 与人类 MEG)报告基本水平分类早于上位分类,另一些行为研究则暗示相反的次序。此外,分类速度可能与脑区对该类别的偏好有关(面区对面孔理应更快),而此前的动态研究要么在 IT 内随机记录、要么空间分辨率不足,均无法控制这一点。作者实验室此前已在两个身体补丁积累了系统的单单元证据:MSB 靠近面补丁 ML/middle fundus,ASB 更靠前、靠近面补丁 AL,两者对身体的群体反应显著强于非身体;ASB 对身体姿态与身份的编码比 MSB 更能容忍视角变化(Kumar et al., 2019);电刺激 fMRI 显示两补丁之间存在解剖连接(Premereur et al., 2016)。但有一个反常:尽管 ASB 位置更前、按层级理应更高阶,两补丁的平均反应潜伏期却没有差异——本文的解码范式恰好能在比平均反应更灵敏的尺度上重新检验这一层级问题。
研究思路
作者的策略是"同动物、同刺激、同分析,只让脑区位置不同",从而把两补丁编码动力学的差异干净地归因于区域本身。技术上采用两条互补的解码通道:其一,同刺激分类(same-stimulus classification, SSC),训练与测试用同一组刺激的不同试次,衡量类别表征的试次间线性可分性;其二,异刺激分类(different-stimulus classification, DSC),用某类别 80% 的实例训练、其余 20% 的实例测试,直接检验"举一反三"式的类内泛化——后者才是分类学意义上的严格考验。时间维度上,先把逐 20 ms 时间窗的同窗解码精度画出时间进程,再把"训练窗 × 测试窗"的全部组合画成时间交叉训练(temporal cross-training, TCT)矩阵:对角线高与非对角线也高,意味着编码静态;只有对角线高、离开对角线即跌落,意味着编码动态。这套设计既能在层间(上位 vs 基本)比较解码起始时间(onset)差异,也能把 MEG 文献的标准争论移植到单细胞数据上做裁决。
方法
被试为两只雄性恒河猴(7–9 kg,与 Popivanov 等 2014 同批动物),植入 MRI 兼容头柱与分别指向 MSB、ASB 的两个记录室。刺激为 10 类黑白图像各 10 张,共 100 张:猴身体与人身体(均无头)、猴脸与人脸、四足哺乳类、鸟类、两类人造物体(objectsM 物体长宽比匹配猴身体、objectsH 匹配人身体)、水果/蔬菜、身体样雕塑;各类间平均亮度、对比度匹配,图像面积大体匹配,嵌入与图像同平均亮度的粉噪声背景(30°×40° 显示)。fMRI 定位用块设计(注视红色小点,MION 造影,3T,1.25 mm 等向体素),以"猴身体 vs objectsM"的显著激活确定记录位点,并用电极-导套管共成像与玻璃毛细管轨迹验证。电生理为环氧绝缘钨微电极单单元记录,被动注视任务下每张图呈现 200 ms(ISI 约 400 ms)、要求刺激前一后 100/200 ms 内维持注视;只纳入每个刺激至少 5 个未中断试次的反应神经元,最终 MSB 214 个、ASB 146 个单元(两只猴合计 360 个)。解码用 Neural Decoding Toolbox 的线性 SVM(C=1,五折交叉验证,all-pairs 多类方案),每次从各猴各补丁随机抽 68 个神经元构成伪群体(pseudopopulation),重复 50 次取平均;20 ms 时间窗从刺激前 100 ms 扫到刺激后 440 ms;类别判别共五种(body vs nonbody、body vs face、body vs object、猴身体 vs 人身体、猴脸 vs 人脸),实例(exemplar)解码只做 SSC 且用 10 ms 步长以精细估计 onset。显著性用 200 次标签打乱的零分布加 FDR 校正(q<0.005),解码 onset 定义为首个显著时间窗;TCT 矩阵差异用从合并群体随机抽 136 个神经元的重抽样零分布检验,仅呈 p<.01 的元素。
主要结果
- 两补丁群体反应的潜伏期相近,但 ASB 的群体 PSTH 呈双峰形状——自约 120 ms 起出现一个反应低谷,MSB 则无此结构(图 1C);平均反应看不出类别信息的时间演化,这正是引出解码分析的动机。
- 上位水平(body vs nonbody、body vs face、body vs object)两区解码都很好,DSC 一致低于 SSC(泛化更难);ASB 的解码精度时间进程呈双相,约 120–250 ms 间有一低谷,MSB 则在峰值后单调衰减;两区峰值出现在同一时间窗,但 MSB 的分类 onset 比 ASB 早 20 ms(SSC 与 DSC 均如此,且在每只猴子单独分析时也成立)(图 2)。
- TCT 矩阵揭示两区编码性质的质的差异:MSB 的 body–nonbody 编码大体静态(跨时窗训练—测试仍可解码,但存在不对称——晚期训练对早期测试的泛化好于早期训练对晚期测试),ASB 则呈两个分离的方块,反应后半段几乎不通用于前半段;差异矩阵统计显著(p<.01)(图 2A、B)。body vs face 的 TCT 与此高度一致,且 ASB 在刺激消失后解码持续更久;body vs object 趋势相同但 ASB 双峰不明显、DSC 的 onset 差异未达显著(图 2C–F)。
- 基本水平判别改写预期的拓扑:猴身体 vs 人身体的解码在两区都比较强、动态相似(TCT 只差一个整体的时间平移),MSB 仅在 SSC 口径显著更快;在 ASB 中该基本类别与上位类别的 onset 无差,MSB 的 SSC onset 跨层级相同(DSC 对基本类别约慢 20 ms)(图 3A、B)。而身体补丁的非偏好类别——猴脸 vs 人脸——解码很弱(DSC 尤甚),且 ASB 的 onset 反而显著更晚,晚期解码更高(图 3C、D)。这说明"基本早于上位"的普遍规律并不可靠:凡涉及身体的判别,上位与基本 onset 一样早。
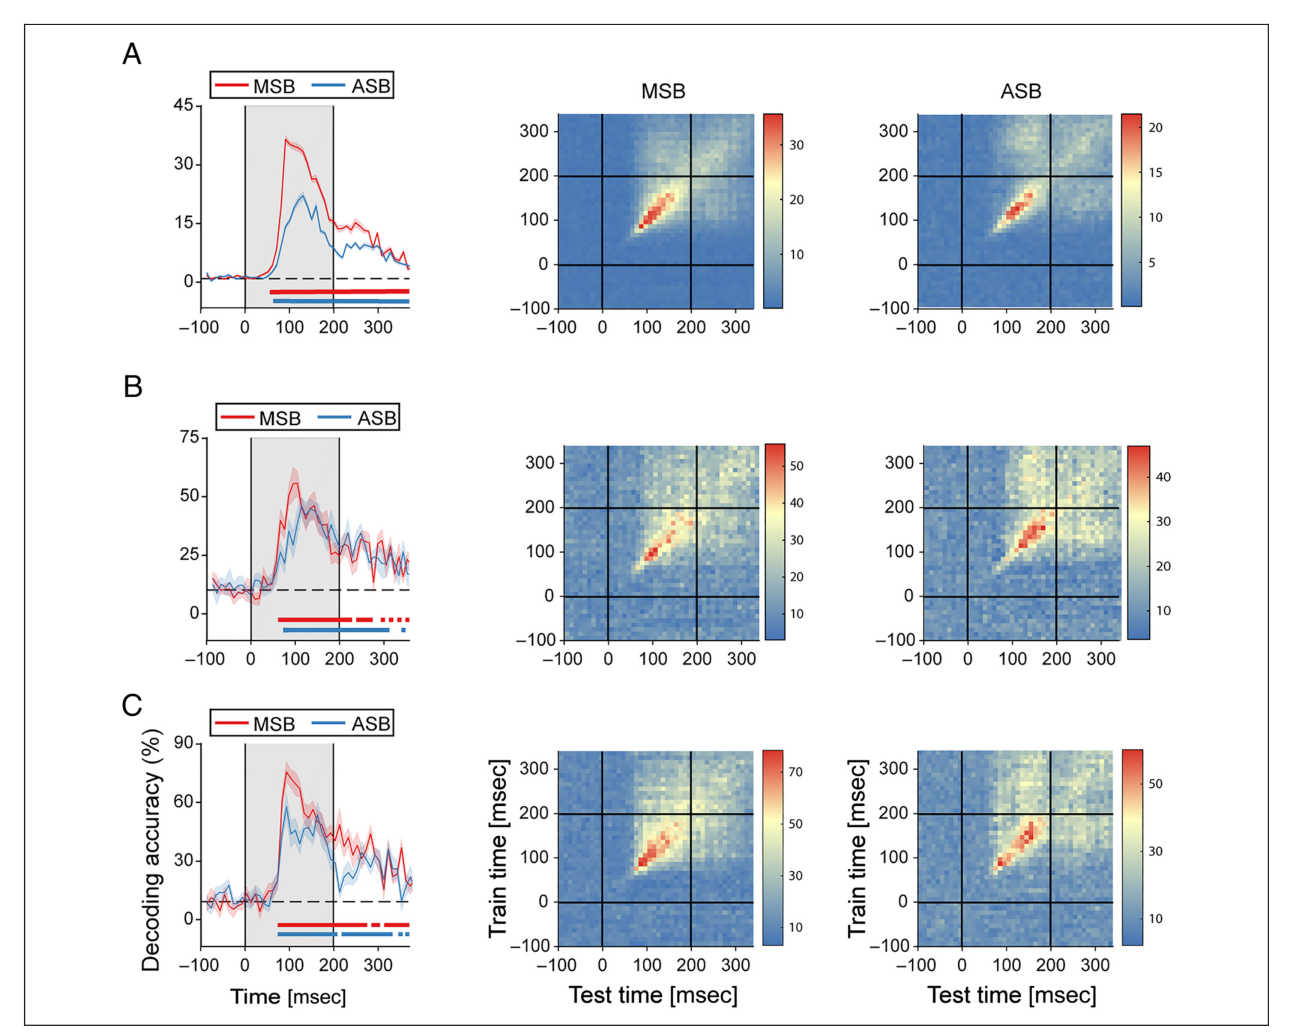
- exemplar 层面:100 张图各自的解码 MSB 又快又准,两区 TCT 都显示离开对角线即大幅跌落(个体图像的表征相当动态),ASB 仍隐约双峰;只解码人身体或猴身体内部 10 个实例时结果类似,且有早期—晚期泛化更好的趋势。作者指出 exemplar 解码本质上是基于图像的(尺寸、姿态、视角、身份混杂其中),解释困难,故未深究(图 4)。
图注解读
图 1 · 两个身体补丁的 fMRI 定位与群体反应
原文图注:Figure 1. The MSB and ASB patches: fMRI mapping and population spiking activity. (A) One example image from each of the 10 stimulus classes used to record the responses of the neurons in MSB and ASB. (B) Activations of the contrast "monkey bodies"–"objectsM" (t > 5). The images of Monkey B show an electrode targeting ASB. The figure is adapted from Kumar et al. (2019). (C) Population PSTHs of mean normalized firing rate averaged across the 10 stimulus classes for MSB (red; n = 214) and ASB (blue; n = 146) neurons. Data of the two animals were pooled. Shaded bands: ± 1 SEM. Normalization was performed for each neuron by dividing the response by the maximum mean firing rate (across the 10-msec bins). The gray-shaded region corresponds to the stimulus presentation (0 = stimulus onset).
A 面板给出 10 类刺激的样例,B 面板是"猴身体 vs objectsM"的 fMRI 激活图并展示指向 ASB 的电极,C 面板为两区合并数据的归一化群体 PSTH。读图要点:横轴时间(0 = 刺激起始)、阴影为刺激呈现期,红(MSB,n=214)与蓝(ASB,n=146)两条曲线的起始时间几乎同时,但蓝线在约 120 ms 后有个明显的回陷、随后再起——这个肉眼可见的双峰形状正是 ASB"双相编码"在平均反应上的影子,也是主要结果 1 的来源。
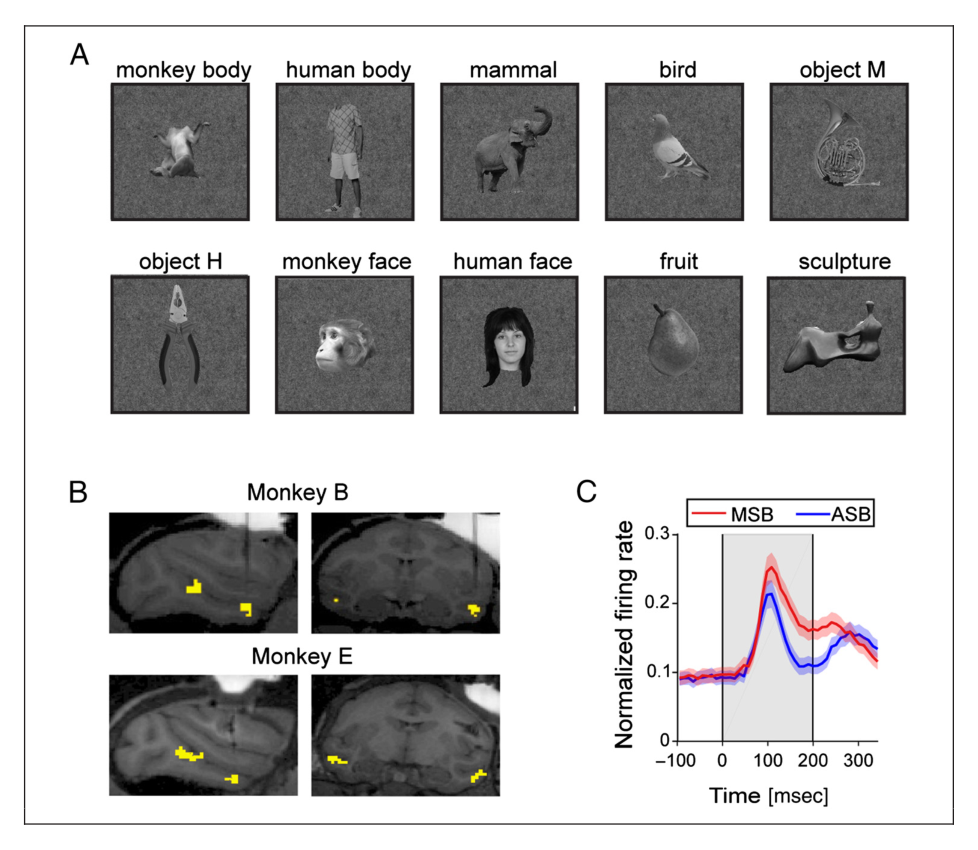
图 2 · 上位类别(body vs nonbody 等)的解码时间进程与 TCT 矩阵
原文图注:Figure 2. Temporal patterns of body category decoding in MSB and ASB. (A, B) Left column: Time course of decoding accuracy for body versus nonbody for MSB (red) and ASB (blue) neurons for SSC (A, top) and DSC (B, bottom). Dashed lines indicate chance levels, and error bars correspond to standard deviations (n = 50 resamplings). The gray-shaded region corresponds to the stimulus presentation (0 = stimulus onset). The horizontal filled bars at the bottom indicate significant decoding accuracy for MSB (red) and ASB (blue). Second and third columns: TCT matrices describing the decoding performance (in color code; see the vertical bar on the right side of each panel) as a function of the training and testing time bins (width = 20 msec). Each row corresponds to the time bin that was used to trai ……(后略:行为矩阵的行列定义、SSC/DSC 两版以及右列为 ASB−MSB 的差异矩阵)
左列是 body vs nonbody 的解码精度时间进程(红 MSB、蓝 ASB,虚线为随机水平,底部色条为显著性区间);中列是 MSB 与 ASB 的 TCT 矩阵(横轴测试窗、纵轴训练窗,颜色编码精度,对角线为同窗解码);右列是令非对角线元素置零(p>.01)的 ASB−MSB 差异矩阵。读图要点有三:一是蓝色(ASB)进程曲线呈两峰一谷而红色单调滑坡;二是 ASB 的 TCT 呈两个方块、MSB 的大面积亮色延伸出对角线(静态);三是这种差异对 SSC 与 DSC 皆成立,C–F 行还显示 body vs face、body vs object 复现同款格局。这是主要结果 2、3 的主图。
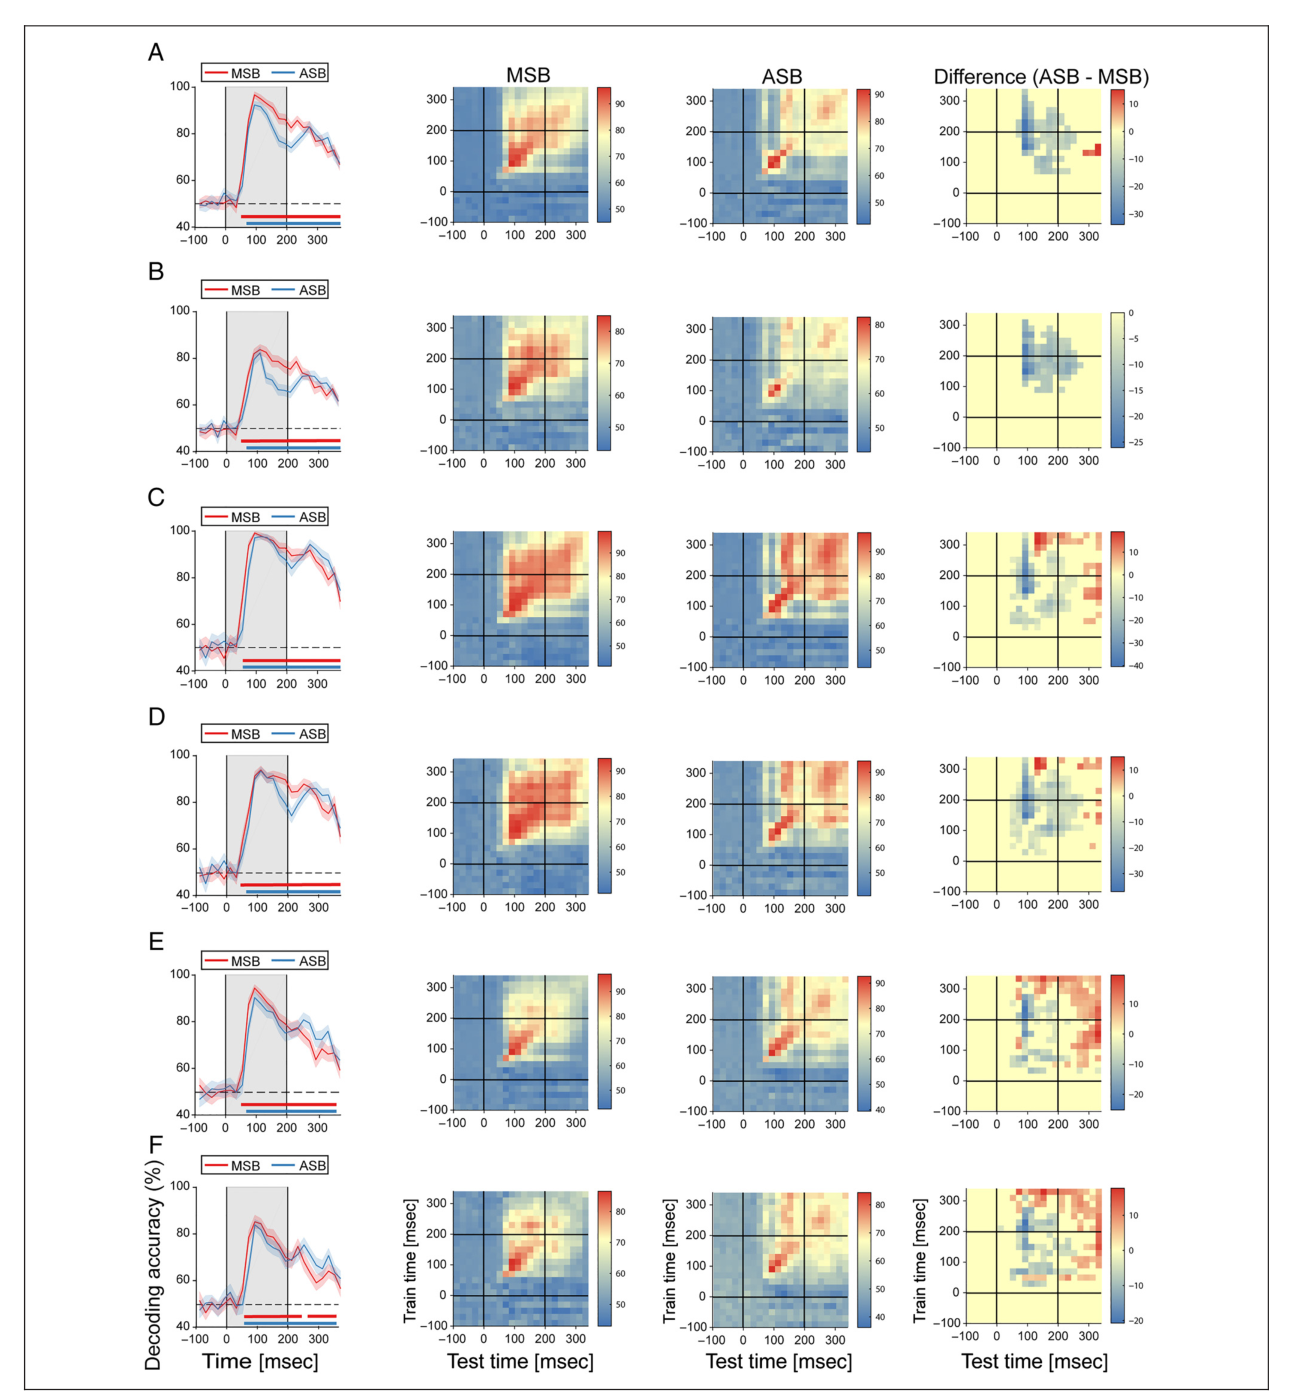
图 3 · 基本水平类别的解码(人 vs 猴身体、人 vs 猴脸)
原文图注:Figure 3. Temporal patterns of basic-level category decoding in MSB and ASB. (A, B) Human versus monkey body category decoding: (A) SSC and (B) DSC. (C, D) Human versus monkey face category decoding in MSB and ASB: (C) SSC and (D) DSC. Same conventions as in Figure 2.
格式完全沿用图 2(左列时间进程、中列两区 TCT、右列差异矩阵)。读图要点在于对比两组结果:A/B 行中人身体 vs 猴身体在两区精度都高、TCT 形状相似(仅 ASB 整体右移、且刺激结束后解码持续更久),说明基本水平身体判别的编码性质两区相仿;C/D 行中人 vs 猴脸的精度整体低(DSC 尤其接近随机),而 ASB 的解码反而更晚 onset、晚期更高——与"分类速度取决于读出群体的类别偏好"这条核心解释相互印证。此图支撑主要结果 4。
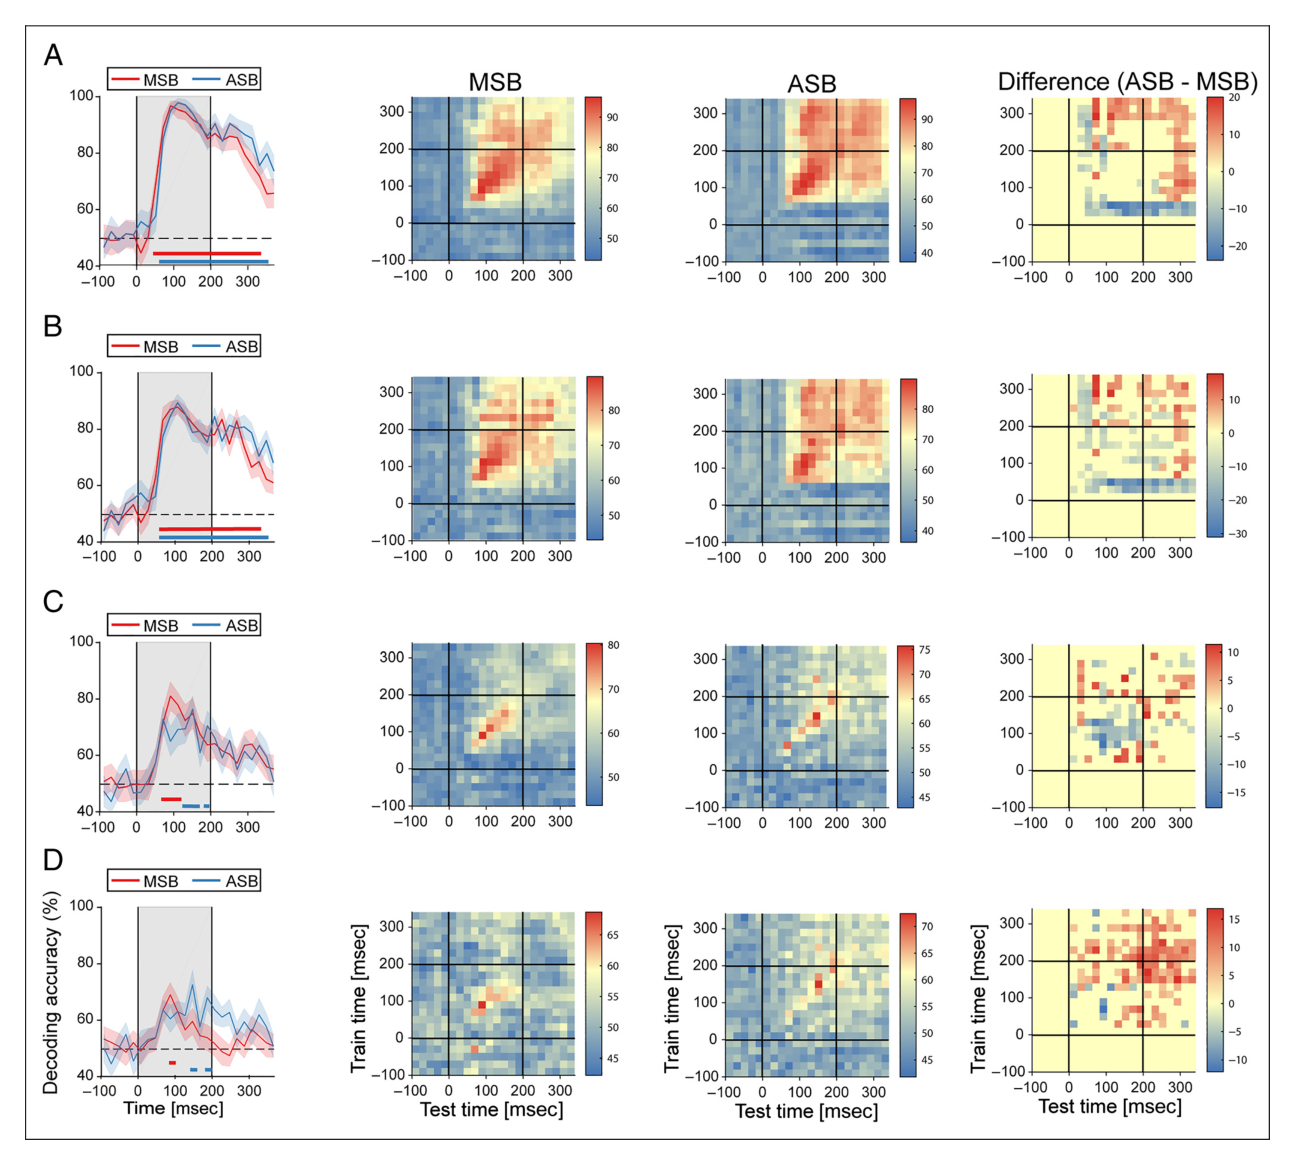
图 4 · exemplar 水平的解码
原文图注:Figure 4. Temporal patterns of exemplar decoding in MSB and ASB. Decoding of all individual images (A, N = 100) and the exemplars of the human body (B, N = 10) and the monkey body (C, N = 10) categories. Same conventions as in Figure 2. Only the SSC-type classification was possible for the exemplar decoding. No difference matrix between ASB and MSB is shown as there was a marked difference between the peak performances of MSB and ASB.
A 行解码全部 100 张图像,B、C 行分别只解码人身体、猴身体内部的 10 个实例;只做 SSC,且因两区峰值差异悬殊而不展示差异矩阵。读图要点:MSB 的 exemplar 解码比 ASB 又快又高;两区 TCT 都显示离开对角线性能骤降但也留有跨时间泛化的痕迹,ASB 隐约双峰。作者在正文中明确说 exemplar 解码是纯图像层面的(混杂姿态、视角、身份与大小),解释空间有限,故点到为止。此图补齐主要结果 5,也提示"个体图像表征动态"可能是两区共享的性质而非区域特异。
讨论
作者把两区的差异放进 IT 层级来看待:MSB 更靠后,符合"类别信号先出现在后部补丁"的层级预期,这也解释了与早前平均反应研究的表面矛盾——群体 PSTH 看不出潜伏期差,但解码分析对"类别信息何时可用"灵敏得多。ASB 的双相动态编码来源不明,作者列出三种可能:不同刺激成分的信息经由异步输入在不同时刻到达(Brincat & Connor 2006 的动态形状整合);补丁内局部循环(recurrent)加工在反应的不同阶段产生不同表征;或反应后半段的编码来自其他脑区的反馈。MSB 的泛化不对称(晚训练→早测试优于早训练→晚测试)以及"最初 20 ms 的编码几乎不适用于其后各时窗"的现象,提示即使是在早期,循环加工也已在起作用。与 Dehaqani 等(2016)"基本类别先于上位类别被解码"的结论相比,作者给出两点归因:其一,该研究在 IT 内随机记录,其上位类别(animate–inanimate)混入了面孔与身体,而 IT 的类别选择组织恰把两者分开,导致那条高抽象轴线本来就难解、解码滞后;其二,本文检出的规律是"分类 onset 取决于被读出群体的类别偏好"——身体补丁读身体极快、读脸极慢,正符合此说(Yamins 与 Baldassi 等的 IT 研究同样未见 animate–inanimate 区分)。ASB 对上位类别双相、对基本类别不双相的格局,与面系统里前部补丁 AM/AL 对视角不变的表征在反应进程中递增且呈双模的既有证据(Freiwald & Tsao 2010;Meyers et al. 2015)平行,暗示前部补丁在反应中改变表征也许是一个跨类别系统的共性。最后的落点是方法论警示:IT 内两个补丁尚且动态迥异,MEG 这类把多区信号混合的方法会大大高估"某个区域的编码动态",而假设一个统一读出器给散布全 IT 的神经元加权(如 Majaj et al. 2015 那类做法)在生物学上也不现实——要弄清 IT 选择性如何变成行为,需要因果扰动与 IT 输出区的同时记录(作者引 Semedo et al. 2019 的"通讯子空间"作为例子)。
一句话总结
这篇最值钱的启示是"读哪儿"和"读多久"不能混为一谈:同一批刺激、同一种分类器,在 MSB 与 ASB 上硬是跑出了静态与双相两种完全不同的动力学,说明 MEG 文献里那套"表征流转"的宏大叙事里至少有一部分可能只是脑区信号叠加的假象。我的判断是:ASB 的双相模式更像是层级顶端的表征正在被迭代抽象(与面系统 AM/AL 的证据遥相呼应),而"上位类别反而和基本类别一样早"这个结果提醒我们,onset 之争的答案取决于你以为自己在读哪一区——不过文中供甄别动态来源的三种机制(异步输入、recurrent、反馈)都还只是候选,未有因果证据,这一部分读者留意即可。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[A, B, C] - Fig2: 提取质量
good,对齐度full,识别面板[A, B] - Fig3: 提取质量
good,对齐度full,识别面板[A, B, C, D] - Fig4: 提取质量
good,对齐度full,识别面板[A, B, C]
关键事实与局限性声明
- 审校纠偏: {'classification': 'OVERCLAIM', 'md_section': '研究思路', 'current_text': '同动物、同刺激、同分析,只让脑区位置不同,从而把两补丁编码动力学的差异干净地归因于区域本身。', 'problem': '这是观察性、跨记录数据的区域比较,不是对脑区身份的因果操纵;相同动物、刺激与分析减少了混杂,但不能实现“干净归因”。', 'recommended_fix': '改为“该设计减少了动物、刺激和分析流程差异造成的混杂,使区域差异成为更合理的解释,但不构成因果证明”。'} -> 评注:
- 审校纠偏: {'classification': 'OVERCLAIM', 'md_section': '图注解读—图 1', 'current_text': 'ASB“双相编码”在平均反应上的影子。', 'problem': '放电率双峰与表征几何改变不是同一测量,不能由 PSTH 形态直接推定双相编码。', 'recommended_fix': '将其标为时间上的对应现象,而非双相编码的直接证据。'} -> 评注:
- 审校纠偏: {'classification': 'INTERPRETATION', 'md_section': '图注解读—图 3及讨论', 'current_text': '这说明“分类速度取决于读出群体的类别偏好”。', 'problem': '作者将其表述为“most likely depends”并以脸类别结果作为一致性证据;研究没有独立操纵类别偏好,而且脸解码 onset 很嘈杂。', 'recommended_fix': '改为“结果与分类潜伏期可能受被读出群体类别偏好影响的解释一致”。'} -> 评注:
- 审校纠偏: {'classification': 'OVERCLAIM', 'md_section': '一句话总结', 'current_text': 'ASB 的双相模式更像是层级顶端的表征正在被迭代抽象。', 'problem': '研究没有测量“抽象化”过程,也未通过因果扰动区分异步输入、局部循环或跨区反馈;该说法超出数据与作者结论。', 'recommended_fix': '删除“正在被迭代抽象”,或明确标为无直接证据的个人假设,并并列保留作者提出的三种候选机制。'} -> 评注:
- 审校纠偏: {'classification': 'OVERCLAIM', 'md_section': '一句话总结', 'current_text': 'MEG 文献里那套“表征流转”的宏大叙事里至少有一部分可能只是脑区信号叠加的假象。', 'problem': '本文证明两个 IT 补丁具有不同解码动力学,并据此提出 MEG 混合多区信号可能高估单一区域的动态性;它没有直接重分析 MEG 数据或证明既往结果属于假象。', 'recommended_fix': '改为“提示 MEG 中观察到的部分动态性可能受到多脑区信号混合的影响,不能直接等同于单一区域内部的表征变化”。'} -> 评注:
- 补充要点: : (第 1701 页)
- 补充要点: : (第 1701 页)
- 补充要点: : (第 1705 页)
- 补充要点: : (第 1706 页)
- 补充要点: : (第 1701 页)