IT Literature Intelligence 终审版本 (VERIFIED) 论文编号:
279| 原始基线:V0_ZCODE_BASELINE| 语义审核:pass| 图表审核:pass
Evidence concerning how neurons of the perirhinal cortex may effect familiarity discrimination
Brown · Philosophical Transactions of the Royal Society of London. Series B, Biological Sciences · 2002 · Zotero itemID=2416
这是 Brown 与 Bashir 为皇家学会"认知过程生理学"讨论会撰写的一篇整合性综述:把损伤研究、清醒猴单细胞记录、计算建模和大鼠鼻周皮层脑片电生理四条证据链串起来,论证再认记忆中的"熟悉性辨别"(familiarity discrimination)由鼻周皮层(perirhinal cortex)完成,其基本编码机制是刺激重复时该皮层神经元反应的降低,候选突触机制则是长时程抑制(long-term depression, LTD)。文章最有说服力之处在于层层递进的排除法——先排除其他候选神经机制,再用建模说明"反应降低"比"反应增强"在信息论上更高效,最后到脑片里找出降低效应所需的突触装置。
研究背景
见过阿尔茨海默病早期患者的人都知道那种反复问同一个问题、讲同一个故事的窘境——而判断"这事是不是刚发生过"(先前出现判断)恰恰是再认记忆的核心过程(Mandler 1980)。大量研究表明再认记忆至少包含两个可分离的成分:熟悉性辨别与回忆(recollection),本文关注前者。鼻周皮层(经典定义为 Brodmann 35 区,后扩至 35 和 36 区)是灵长类颞叶内前下方的一条皮层带,位于海马结构外侧并向其提供大量输入,位于 von Bonin 和 Bailey 高级视觉区 TE 的内前方;它接收视(尤其 TE 区)、听、躯体感觉与嗅觉等广泛皮层输入及海马回返通路,是感觉加工层级顶部的多模态区,也被认为参与"把物体知觉为独立实体"。
到本文写作时,损伤研究已确立鼻周皮层在视觉再认中的关键地位:猴与大鼠的切除实验显示,依赖"判断不常重复的个别条目是否出现过"的任务(尤其是视觉延迟匹配/非匹配取样任务)在鼻周皮层损毁后严重受损,且损伤远重于海马、杏仁核或前额叶损毁;海马损毁只在任务复杂化、需要空间记忆时才造成重大损伤。当时真正的缺口是机制层面的:哪些候选神经机制能解释这一行为结果?任何候选机制都必须满足几条硬约束——单次接触即可学习、持久、大容量(同时记住大量复杂刺激)、在无训练情境下也自发运作(熟悉性辨别本身不该需要学)、对初次和第二次接触的刺激同样生效而不只对高频熟悉刺激。此前记录研究发现的候选——匹配/非匹配反应差异、延迟期活动(delay activity)、重复时的反应增强、同步放电——逐一对照这些约束后都站不住,只有"重复时反应降低"(response reduction)全部达标,但它的突触机制仍然空缺。
研究思路
作者的论证链是一条"逐级收紧"的排除与收敛:第一步,用约束条件筛选候选神经机制,确立"反应降低"是唯一同时满足单次暴露、长时程、大容量、内源性等要求的信号(第 2 节);第二步,用反应降低的速度(刺激呈现后约 90 ms 内即出现新旧群体差异)与海马、前额叶、皮层下结构更长的潜伏期和更低的检出率做对照,反推该变化至少最初是在前部 TE 与鼻周皮层内局部生成的,而非其他脑区反馈而来(第 3 节);第三步,既然行为与记录都指向"重复→反应降低",就用计算建模检验这种编码方式在速度、精度、容量上是否真能支撑人类能力,并从理论上说明为什么降低比增强更高效(第 4 节);第四步,建模要求突触特异的、使效能衰减的可塑性,于是转向大鼠鼻周皮层脑片,综述该区已发现的 LTD 形式及其受体机制,作为候选突触装置(第 5 节)。结尾坦然交代证据边界:脑片里的 LTD 只是"必要而非充分"的证据,三层次(LTD 机制—神经元反应降低—行为熟悉性辨别)的一致性检验仍待完成。
这条设计逻辑的妙处在于每一环都为下一环供给约束:记录研究给出信号的方向(降低),建模解释信号方向为何是降低而非增强,建模对"突触特异、效能衰减"的要求又规定了脑片研究的搜索目标。
方法
本文是综述,其"方法"分属三个层面。行为—记录层面:猴做串行再认记忆任务(serial recognition memory task)——每试次呈现一张图片,首次出现按左侧键、重复出现按右侧键以获取果汁奖励,试次类型伪随机排列使首次与重复不可预测;对照试次(Fahy 等 1993)排除了动物行为反应和眼动变化的解释。在 anterior TE、鼻周皮层、内嗅皮层记录单细胞反应,用累积刺激后时间直方图(peristimulus-time histogram)与栅格图比较同一图片首次与第二次呈现的放电,用群体平均(43 个神经元)量化记忆广度,用累积放电计数的新旧分叉点估计加工速度,并以方差分析确立群体差异潜伏期。建模层面:以 Bogacz、Brown 与 Giraud-Carrier(1999, 2001)的网络模型为代表,基本设定是单个突触在被刺激首次激活时发生可塑的、使用依赖的改变(LTP 型或 LTD 型),以此存储刺激的既往出现;用模拟与理论预测比较抗赫布(anti-Hebbian,主要使突触减弱)与赫布(Hebbian,主要使突触增强)两种学习规则在不同神经元反应相关系数下的存储容量。脑片层面:成年大鼠鼻周皮层离体脑片,以低频刺激(1 Hz、200 个脉冲)诱发 LTD,或以药物激动剂激活受体,记录场兴奋性突触后电位(fEPSP);配合 NMDA、代谢型谷氨酸受体(metabotropic glutamate receptor, mGlu)、毒蕈碱受体的拮抗剂(AP5、EGLU、pirenzepine 等)解析诱导机制。文中未详述各实验的具体动物数量与统计细节,这些在所引原始文献中。
主要结果
-
损伤证据确立鼻周皮层是熟悉性辨别的关键节点。猴(Zola-Morgan 等 1989;Gaffan & Murray 1992;Meunier 等 1993, 1996;Suzuki 等 1993)和大鼠的消融研究一致显示,依赖个别视觉条目先前出现判断的任务(视觉延迟匹配/非匹配取样)在鼻周皮层损毁后严重受损,远重于海马、杏仁核或前额叶损毁;海马损毁的损害程度则一直有争议,且只在增加任务复杂度(尤其需要空间记忆的判断)时才重大。内嗅皮层消融只造成短暂损伤(Meunier 等 1993;Leonard 等 1995),说明关键变化不依赖内嗅皮层。
-
五类候选神经机制中只有"重复时反应降低"全面合格。匹配/非匹配差异(Gross 等 1979 起)只标记试次类型而非特定刺激的新旧,且只见于小刺激集、每试次判断单一目标的任务;延迟活动未见在必须同时记住多个刺激、选择阶段不可预测的长时记忆条件下存在,更可能是注意或短时记忆机制;反应增强只在动物被训练到"特定目标重复意味着有奖励"时出现(Miller & Desimone 1994),同样受单刺激、短延迟限制;同步放电(6 ms 内同时放电)出现率极低,且时相偏晚、更贴近动物的行为反应而非刺激起始,信号远慢于单个神经元的放电率变化(图 1 是这五类机制的图解)。反应降低则见于多种条件(图 2 给出鼻周皮层单个神经元的实例:同一图片第二次呈现时放电显著少于首次),在严格控制下无法用警觉、注意、动机、眼动解释,单次暴露后即可发生、间隔可超过 24 小时,且在必须同时记住大量刺激、间隔被其他刺激填满、甚至动物未受任何再认训练、不以重复换奖励的情境下都出现——即内源性而非训练诱导,大鼠与猴皆然。
-
记录的量化特征:约四分之一的神经元参与,记忆广度长,速度极快。前部 TE、鼻周皮层、内嗅皮层中约 25% 的记录神经元在刺激重复时反应降低(Miller 等 1993;Xiang & Brown 1998b);反应发生变化的神经元中超过 50% 在 24 小时延迟后仍显示降低,这种长记忆广度在鼻周皮层的出现率最高(图 3:43 个前部下颞与内嗅皮层神经元的群体平均反应,对间隔若干试次乃至前一天见过的刺激的重复仍显著低于首次呈现 N)。更后部的视觉区(V4 及后部 IT)虽有类似降低但不存活超过几秒或几个插入刺激。速度上,群体水平在刺激呈现后约 90 ms 内即出现依新旧而异的显著活动差异;许多神经元反应变化的潜伏期与其视觉反应起始相同(误差 10–20 ms 内;图 4:TE 神经元对新旧图片的累积放电计数在约 75 ms 分叉,恰在神经元开始反应之时)。海马对不常重复刺激的反应变化检出率不足 1%、潜伏期更长;前额叶检出率较高但潜伏期仍显著长于颞叶;基底前脑等皮层下结构亦然且神经元数量不足以支撑对数百复杂刺激的辨别。故最初的变化只能在前部 TE 和/或鼻周皮层内生成——记录数据显示两区都可能参与(前部 TE 潜伏期更短、鼻周皮层记忆广度更长),损伤证据则最支持鼻周皮层为关键区。
-
计算建模证明"反应降低"编码在速度、精度、容量上都够用,且比"反应增强"更高效。若假设人类鼻周皮层约有 10^7 个判断熟悉性的神经元、每个约 10^4 个突触(依据 Insausti 等 1998 与 Xiang & Brown 1998b 的数据),Bogacz 等(2001)模型可辨别约 10^9 个刺激的熟悉性、错误率 1%——相当于以约每 3 秒一张新图片的速度高精度登记并记住 100 年生涯里见到的所有图片;所需神经元不足全皮层的 0.1%,且因输出只需"相对熟悉性",可在毫秒级作出决定。容量的关键变量是神经元间反应的相关性(图 6):所有已发表的熟悉性辨别网络都以突触增强(赫布型)为基本存储变化,这类模型要求反应相关系数低到约 0.05 才能高容量,且相关稍增容量即迅速崩塌;而以突触减弱(抗赫布型)为基本变化时,存储动作本身使反应更去相关,容量对中等程度的相关相对不敏感(图 6a 与 6b 对照)。原因是增强型网络朝"特征提取"方向移动(对某特征敏感的神经元更敏感),适合构建表征;降低型网络则强调刺激中"独特而非平常"的成分。由此建模恰好解释了鼻周皮层重复时反应降低(而非增强)的观测方向,并指出对新颖刺激系统反而产生大信号,可供别处进一步加工(可能包括在熟悉性辨别网络之外建立新表征)。模型还要求可塑性必须突触特异——非局部化的变化将导致容量灾难性损失;鉴于鼻周皮层兴奋性突触远多于抑制性突触(Thompson 等 2001),高容量只能靠可修饰的兴奋性突触实现(图 5 给出三种候选模型的突触变化示意)。
-
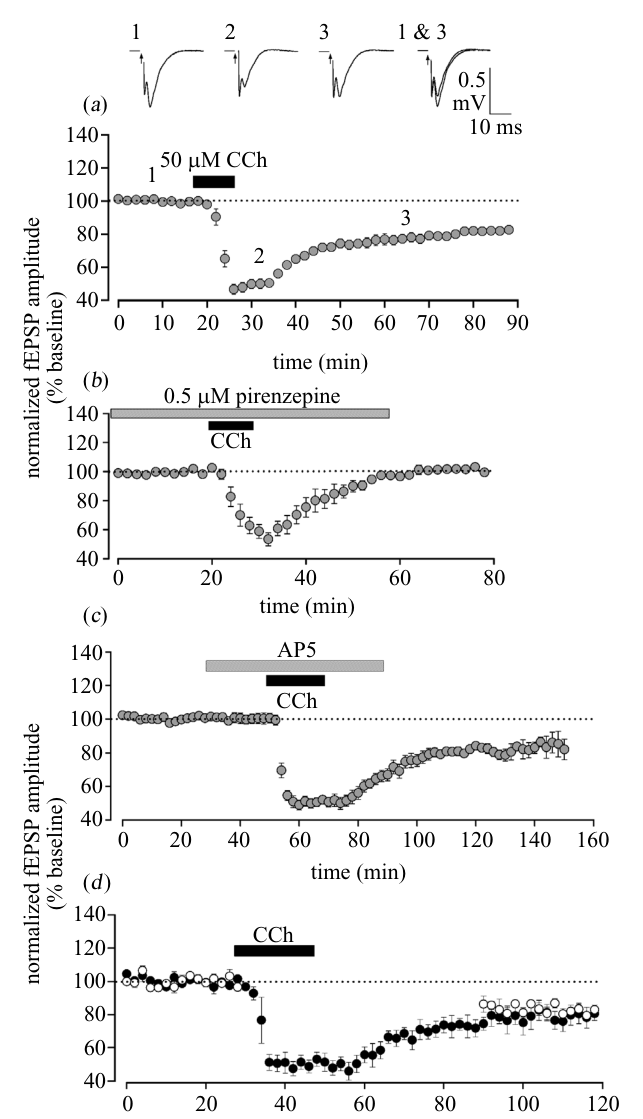
大鼠鼻周皮层脑片提供了"效能衰减型"可塑性的候选机制,其诱导条件在脑区中显得特殊。NMDA 受体激活依刺激模式不同可诱发 LTP 或 LTD(Bilkey 1996;Ziakopoulos 等 1999);I 组激动剂 3,5-dihydroxyphenylglycine 与 II 组激动剂 (2S,2'R,3'R)-2-(2',3'-dicarboxycyclopropyl)glycine 各自也能诱发出兴奋性传递的 LTD(McCaffery 等 1999)。活动依赖的 LTD(1 Hz、200 脉冲)在神经元钳制于 –70 mV 时需要 NMDA 受体与 I、II 组 mGlu 受体共同激活(Cho 等 2000),而把低频刺激与去极化到 –40 mV 配对时则不再需要 II 组 mGlu——解释是 I 组与 II 组 mGlu 受体间存在协同,可增强 I 组激活引起的胞内钙释放;当 NMDA 钙内流受镁离子电压依赖阻断限制(–70 mV)时,这一协同提供 LTD 所需的额外钙,去极化(–40 mV)解除镁阻断后协同变得多余(图 7)。胆碱能方面,激动剂 CCh 应用引起洗脱后仍长期持续的突触传递抑制(CCh–LTD),其诱导被 M1 毒蕈碱受体拮抗剂 pirenzepine 阻断、却不被 NMDA 拮抗剂 AP5 阻断,也无需突触刺激(图 8);初步数据显示突触特异的活动依赖 LTD 可被东莨菪碱(毒蕈碱阻断剂)阻止,而东莨菪碱早已被证明损害大鼠、猴与人的物体再认记忆。作者特别强调两点:鼻周皮层 LTD 同时需要 NMDA 与 mGlu 受体的情形在文献中仅见一例,多数脑区的 LTD 只依赖其中之一,提示其机制可能限于特化的脑区子集;体外诱导需要持续数分钟的刺激,而体内重复引起的衰减在约 1 s 内即可观察到,故需检验生理型活动能否在体外诱导 LTD。
图注解读
图 1 · 五类候选神经活动变化示意
原文图注:Figure 1. Schematic representation of types of neuronal activity change found in perirhinal cortex during performance of familiarity discrimination tasks. The size of letter represents the magnitude of response to an individual stimulus. A change in size denotes a change in response on repetition. (a) Match/mismatch response differences. Neuronal responses may be larger or smaller on match compared with non-match trials in tasks where the repetition of one target stimulus must be judged on each trial and small stimulus sets are used. (b) Delay activity. The sustained activity between the initial presentation of a stimulus and its repetition is represented by the arrows. (c) Response enhancement. When an animal is taught that responding to the repetition of a target stimulus leads to reward…… (d) Response reductions. The response when a stimulus has been encountered before is reduced compared with its first presentation. In fact, there is more than one type of such response reductions, with there being three different, commonly found patterns of neuronal response on stimulus repetition (Xiang & Brown 1998b)…… (e) Simultaneous firing……
用字母的大小表示对单个刺激反应的强弱、字号变化表示重复时的反应变化,把五类候选机制(匹配/非匹配差异、延迟活动、反应增强、反应降低、同时放电)画在一张图上。注意 (d) 下还标注了反应降低其实不止一种模式——至少三种常见重复反应模式并存,暗示背后不止一种突触可塑性。这张图是第 2 节排除法的总纲。
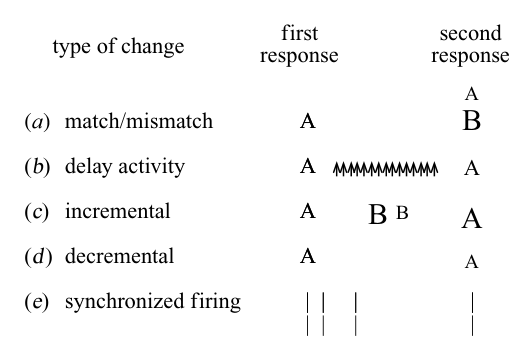
图 2 · 重复引起反应降低的单细胞实例
原文图注:Figure 2. Example response reduction on stimulus repetition. Illustrated are the cumulated peristimulus-time histograms and rasters showing the times of occurrence of individual action potentials for trials on each of which one of 10 different unfamiliar pictures was presented for either the first (a) or the second (b) time. Note the response reduction with stimulus repetition. The neuron's activity was recorded from perirhinal cortex while pictures were presented to a monkey performing a serial recognition memory task in which juice rewards were obtained for left-sided presses for first presentations and right-sided presses for repeat presentations……
(a) 为 10 张陌生图片首次呈现、(b) 为同一批图片第二次呈现时的累积刺激后时间直方图与栅格图(每道竖线代表一个动作电位)。读图要点:两栏的放电密度差清晰可见——同一神经元、同一批图片,第二次呈现时反应明显降低。图注还交代了排除混淆的细节:试次类型伪随机化(猴子无法预测首次还是重复)、对照试次排除行为反应与眼动的解释、所有正确试次都给奖励。此图是结果 2 中"反应降低"的原始证据样张。
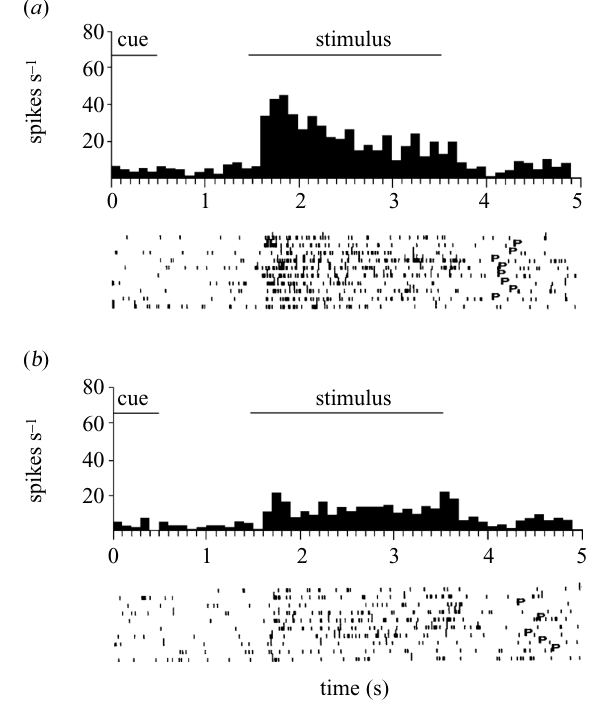
图 3 · 群体记忆广度
原文图注:Figure 3. Population memory span. Illustrated are the population mean (±s.e.m.) responses of 43 neurons recorded in anterior inferior temporal and entorhinal cortex to the first presentations of novel stimuli (N) and their repetition after varying numbers of intervening trials on which other stimuli were shown. The final bar (24 h) represents the response to stimuli not seen since the previous day. An asterisk implies a significant reduction in response compared to N. Ordinate: mean firing rate in 0.5 s after stimulus onset normalized relative to prestimulus activity (= 1)……
横轴是重复前插入的其他刺激的试次数(末柱为隔天,即约 24 小时),纵轴是刺激呈现后 0.5 s 平均放电率、以刺激前活动归一化(首次呈现 N 为基准),星号表示相对 N 显著降低。读图要点:即便隔着许多插入试次甚至隔了一整天,重复呈现的反应仍显著低于 N,且降低幅度大体维持——这就是"单次暴露、长时程记忆"的直接展示,支撑结果 2、3 中关于记忆广度的论述。
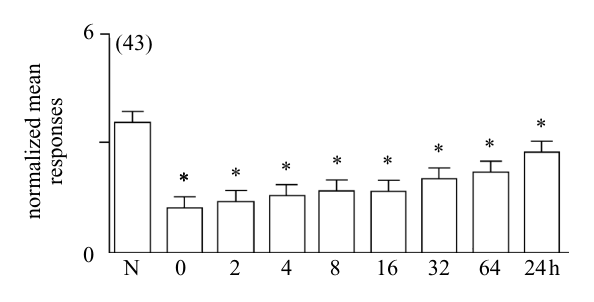
图 4 · 加工速度:新旧差异与视觉反应同步出现
原文图注:Figure 4. Speed of processing. (a) The cumulated action potential counts after stimulus onset (time = 0) for 20 novel (continuous line) and 20 familiar (dashed line) pictures for a neuron recorded in area TE. Note that the divergence of the counts occurs early (ca. 75 ms) and at approximately the same latency as the neuron starts to respond (shown by the increase in slope of the line for the novel trials). Peristimulus-time histograms and rasters for 20 novel (b) and 20 familiar (c) pictures for a neuron recorded in area TE……
(a) 把新旧各 20 张图片的累积放电计数画成两条随时间上升的线:实线(新)斜率率先抬升,虚线(旧)随后——两条线在约 75 ms 处分叉,恰在该神经元视觉反应起始之时。(b)(c) 是对应的直方图与栅格。所有反应发生变化的神经元经归一化后再做方差分析,确立群体差异潜伏期(约 90 ms 内群体水平即出现新旧差异)。这张图支撑结果 3 的速度论断,也是排除"反馈生成"假说的关键:变化来得太快,不可能等海马或前额叶算完再传回来。
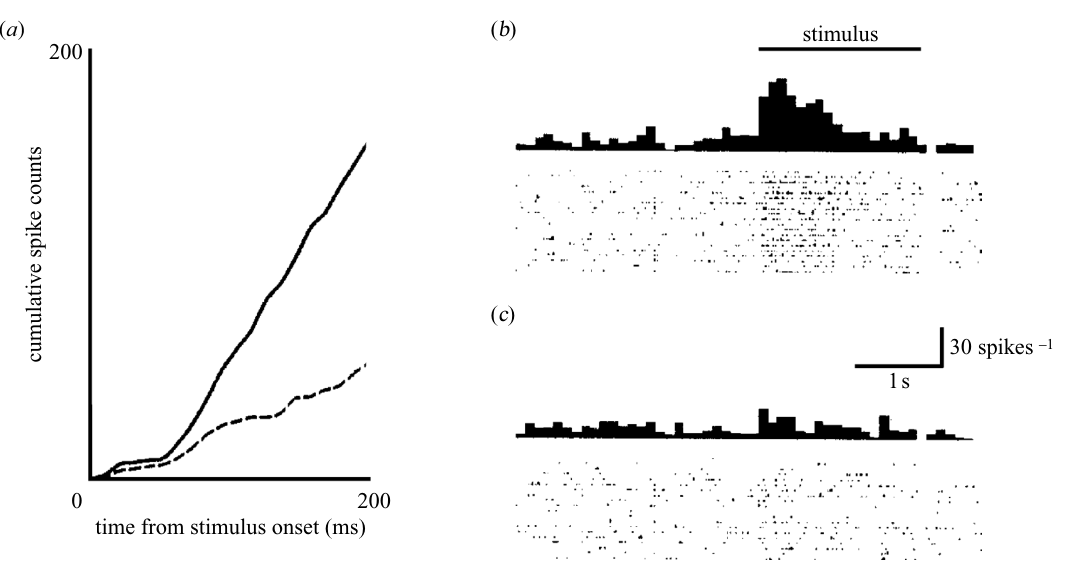
图 5 · 三种熟悉性辨别模型的突触机制示意
原文图注:Figure 5. Computational models for familiarity discrimination. The fundamental synaptic changes for three possible models are illustrated schematically: (a) based on anti-Hebbian learning (in which the primary change is a weakening of synaptic strength, for example as in LTD), (b) based on Hebbian learning (in which the primary change is an increase of synaptic strength, for example as in long-term potentiation), and (c) based on Hebbian learning between inhibitory interneurons and excitatory neurons. Triangles represent excitatory neurons and circles inhibitory interneurons. Horizontal lines on the left side of each diagram denote inputs to the network…… The upper row of diagrams illustrates the synaptic strengths and neuronal responses for a novel stimulus, and the lower row of diagrams those values after modification and when the stimulus is presented again (i.e. is familiar)……
上排为面对新颖刺激时的突触强度与神经元反应,下排为学习后再次呈现(熟悉)时的状态;三角是兴奋性神经元、圆是抑制性中间神经元,输入线粗细表示突触连接强度。对照 (a)(b)(c) 可见三种实现"重复→反应降低"的途径:突触直接减弱、突触增强加抑制性反馈、以及抑制性中间神经元与兴奋性神经元间的赫布学习。图中未画出的补偿性变化(对未激活突触)用于维持网络整体兴奋性。此图是结果 4 建模部分的机制图解。
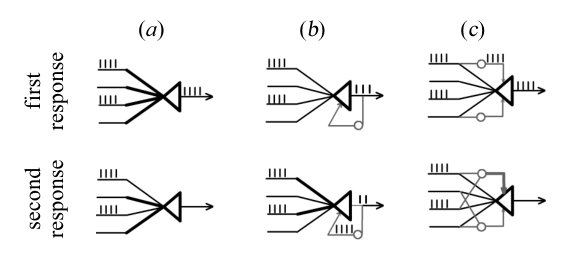
图 6 · 反应相关性对存储容量的影响
原文图注:Figure 6. The influence of correlation on capacity. Illustrated are the results of simulations and theoretical predictions of the number of stimuli (patterns: P) that can be stored by networks employing anti-Hebbian (a) or Hebbian (b) learning rules for different values (rij) of the mean coefficient of correlation between their responses…… Note that the storage capacity of the computational models is markedly reduced if the responses of the neurons are correlated with each other. For the Bogacz et al. (2001) model, and for other models using increases in synaptic efficacy (Hebbian learning) as the fundamental storage mechanism, both theoretical calculations and simulations indicate that capacity falls off rapidly even for very small values of rij. By contrast, if synaptic efficacy is reduced for active synapses (anti-Hebbian learning), then capacity is relatively little affected even at moderate values of the correlation coefficient. Note that the square root of rij is plotted on the abscissa.
纵轴为可存储的刺激(模式)数 P,横轴为神经元间平均反应相关系数的平方根(图注特别提醒横轴是 sqrt(rij))。(a) 抗赫布网络(开符号为模拟 n=100/200/300,实心符号为理论预测)与 (b) 赫布网络(Bogacz 等 2001 模型等)的对照一目了然:赫布型曲线在很小的相关下就急剧下坠,抗赫布型在中等相关下几乎纹丝不动。这张图是"为什么大脑选择反应降低而非增强来做熟悉性辨别"的核心论证(结果 4)。
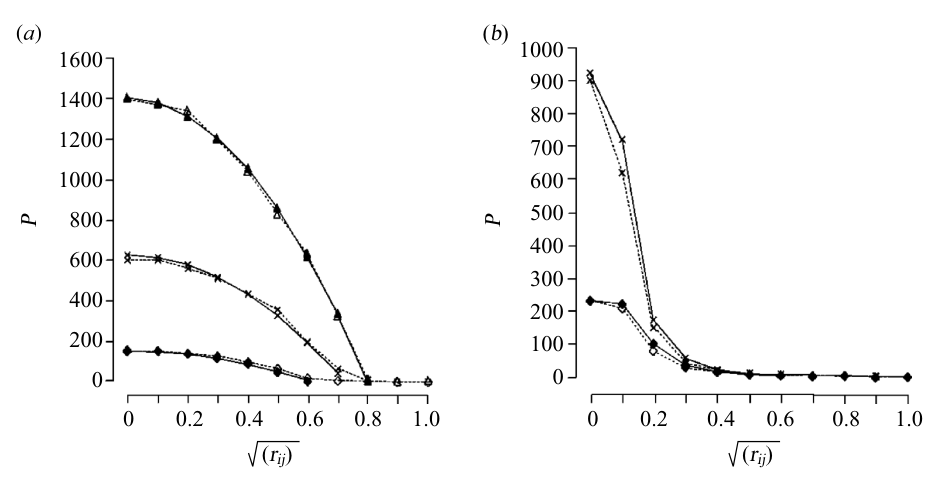
图 7 · 谷氨酸受体在 LTD 诱导中的作用
原文图注:Figure 7. The role of glutamate (glu) receptors in the induction of LTD (based on data from rat perirhinal slices). (a) At –70 mV calcium ion influx through NMDA receptor channels is minimized by a voltage-dependent magnesium block. Group II mGlu receptors (mGlu2/3) enhance the calcium mobilization due to group I mGlu receptor (mGlu1/5) activation by a mechanism that may rely on mGlu1/5 dephosphorylation. The combination of NMDA and mGlu receptor-mediated calcium mobilization results in the induction of LTD……
信号通路示意图,分 –70 mV(a,静息电位)与 –40 mV(b,去极化)两种情形:a 中镁离子电压依赖地阻断 NMDA 通道,II 组 mGlu 受体(mGlu2/3)通过可能依赖 mGlu1/5 去磷酸化的机制增强 I 组 mGlu(mGlu1/5)激活引起的钙动员,NMDA 与 mGlu 两路钙汇聚才够触发 LTD,阻断 II 组受体即阻断诱导;b 中去极化解除镁阻断,即便用 EGLU 削弱 mGlu 依赖的钙信号,钙升幅仍足以诱导 LTD。图中的圆圈 G 代表 G 蛋白。此图解释了结果 5 中"II 组 mGlu 参与与否取决于膜电位"这一鼻周皮层 LTD 的特殊性质。
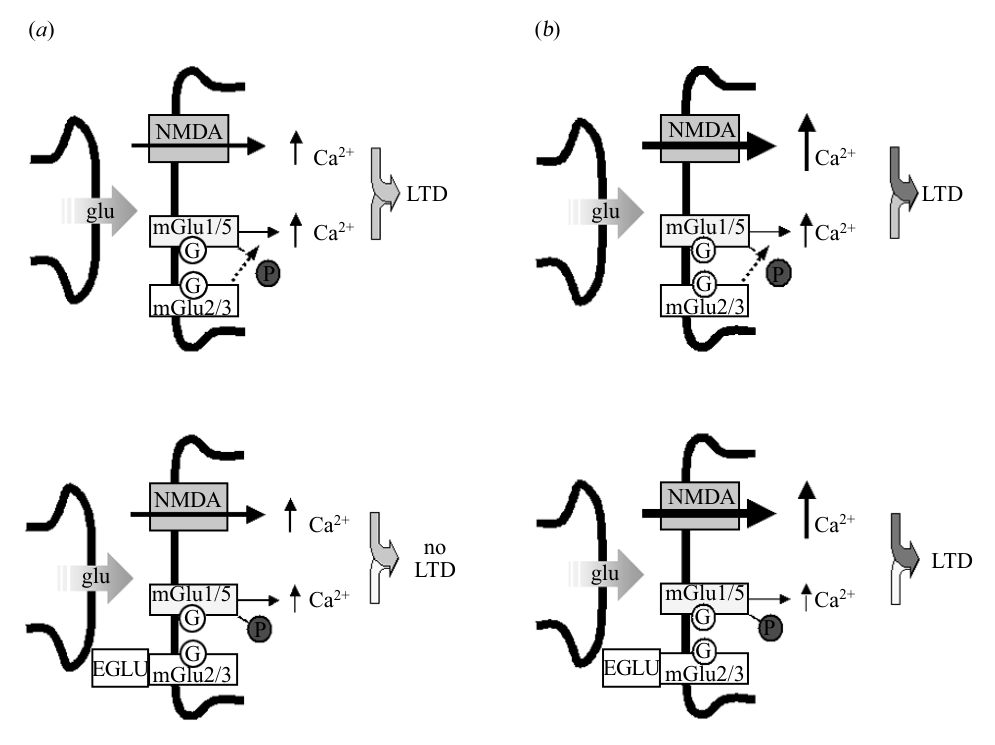
图 8 · 毒蕈碱受体介导的 LTD
原文图注:Figure 8. Muscarinic receptor-mediated LTD in rat perirhinal cortical slices. (a) The application of CCh results in long-lasting depression (CCh–LTD) of synaptic transmission that is (b) blocked by the M1 muscarinic receptor antagonist pirenzepine. The transient depression is, however, unaffected by M1 antagonism. (c) The NMDA receptor antagonist AP5 does not prevent CCh–LTD. (d) The induction of CCh–LTD does not require synaptic stimulation. Stimulation through one electrode (on the temporal side) was discontinued during and for 40 min after application of CCh; however, LTD still occurred in this input. Black circles, temporal; white circles, entorhinal; fEPSP, field excitatory post-synaptic potential.
四联图:纵轴均为 fEPSP(场兴奋性突触后电位)、横轴为时间,黑圆为颞侧输入、白圆为内嗅侧输入。(a) CCh(卡巴胆碱)应用产生洗脱后仍持续的抑制;(b) pirenzepine 阻断长时相抑制但不妨碍短暂的瞬时抑制——说明两相机制可分离;(c) AP5 不阻断,说明此型 LTD 不需要 NMDA 受体;(d) 在 CCh 应用期间及其后 40 分钟停止一侧电极的突触刺激,该输入中 LTD 照样出现——诱导不需要突触活动。这为结果 5 的胆碱能 LTD 段落提供了证据图,也呼应"乙酰胆碱可能在学习记忆中起关键作用"的药理学背景。
讨论
作者的结论是分层的:损伤研究确立鼻周皮层对不常遇到的个别视觉刺激的熟悉性辨别必不可少;记录研究确立其神经基础是刺激重复时神经元反应的降低;计算建模确立了这一基础的可行性——用生物学现实的参数构造的网络能以所需的高速高容量执行熟悉性辨别,并且解释了为什么变化方向是降低(强调刺激的独特成分、对反应相关性不敏感)——而鼻周皮层脑片中已发现的 LTD(NMDA+mGlu 依赖型、毒蕈碱依赖型)提供了能产生突触特异反应性降低的候选机制。整个论证隐约回应了"再认记忆的海马中心论"传统(引用 Aggleton & Brown 1999;Brown & Aggleton 2001 处理海马在空间与回忆成分中的作用,Murray & Bussey 1999 综述鼻周皮层的知觉—记忆双重功能),并与 Desimone 的注意性适应解释、Miller & Desimone 的反应增强发现划清界限。局限处作者交代得直白:大鼠脑片里存在 LTD 并不证明体内熟悉性辨别使用同类机制;要成立,必须证明药理学或分子遗传操纵对"鼻周皮层 LTD 机制、重复时的神经元反应降低、行为的熟悉性辨别"三个层次产生一致的影响——这是必要而非充分条件。文中还列出一串具体的未决问题:体外长时程刺激与体内亚秒级重复的诱导差异、体内 theta/gamma 振荡引起的膜电位波动是否决定 II 组 mGlu 的参与、mGlu 受体在再认任务及其反应降低中的作用、哪种 mGlu 亚型参与等,并说明这些联结"尚待实验建立"。
一句话总结
依我看,这篇综述真正的贡献是把一个看似平常的观察——"老熟人再看一眼,神经元话就少了"——论证成再认记忆最经济的编码方案:存储动作只需要在熟悉的突触上做减法,既天然去相关、容量惊人,又自带"新颖即大声报警"的副产品。它诚实地标出了链条上最脆弱的一环(脑片 LTD 与行为熟悉性辨别的联结未建),二十年后的研究者大约会先去检验那一环;但作为"系统—网络—突触"三层证据相互约束的范例,这篇文章仍值得精读。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[A] - Fig2: 提取质量
good,对齐度full,识别面板[] - Fig3: 提取质量
good,对齐度full,识别面板[] - Fig4: 提取质量
good,对齐度full,识别面板[] - Fig5: 提取质量
good,对齐度full,识别面板[] - Fig6: 提取质量
good,对齐度full,识别面板[] - Fig7: 提取质量
good,对齐度full,识别面板[] - Fig8: 提取质量
good,对齐度full,识别面板[]