IT Literature Intelligence 终审版本 (VERIFIED) 论文编号:
275| 原始基线:V0_ZCODE_BASELINE| 语义审核:pass| 图表审核:pass
On the neural correlates of object recognition awareness: relationship to computational activities and activities mediating perceptual awareness
Sewards · Consciousness and Cognition · 2002 · Zotero itemID=2392
这是一篇纯理论文章:作者在 Aurell(1979)"外/内意识"与 Block(1995)"现象意识/通达意识"二分的基础上,论证"认出一个物体"的觉知(object recognition awareness,物体识别觉知)与"看见它"的感知觉知(perceptual awareness)是两回事,且各有独立的神经底座。文章的核心主张相当具体——识别觉知由颞极皮层(temporopolar cortex)与内侧眶额皮层(medial orbitofrontal cortex, mOFC)中神经元活动提供,分别负责久远过去习得的(已巩固的)与新近习得的物体,而感觉皮层只做计算、不直接产生识别觉知。对关心"意识相关物在哪里"这一问题的读者,它展示了把意识哲学区分翻译成可检验解剖学命题的完整样板。
研究背景
当时的意识研究里有一个被普遍默认的假定:谈论"视觉意识"时,知觉到物体与认出物体要么是同一件事,要么由同一批神经活动介导。作者开篇就挑战这一点。论证分三层:其一,神经生理层面,Crick 与 Koch 提出视觉皮层 gamma 频段同步振荡活动是视觉意识的神经相关物,双眼竞争实验(Fries 等 1997)也显示只有持续被知觉的图案驱动的神经元保持强同步——这些工作确立了"同步振荡是知觉觉知的必要条件"这一出发点。其二,现象学层面,Aurell 早已指出听不懂的外语仍可以被"听见"却无法"认出",视觉系统的联合性视觉失认症(associative visual agnosia)病人同样视力完好、能定位并绕开物体,却不能认出物体、地点与人;Block 则把这类区分形式化为 phenomenal(现象)与 access(通达)意识的二分,并引盲视与 Anton 综合征论证两者可以分离。其三,由此推出的可检验命题:若识别觉知独立于感知觉知,那么介导后者的应当是感觉皮层,而介导前者的应当在"损毁后不损害感觉锐度与视引导行为、却造成物体识别记忆缺陷"的区域——即非感觉皮层。
当时的第二个知识缺口是编码方式问题。视觉分析器最高阶区域——前下颞叶皮层(anterior inferior temporal cortex, AIT)与嗅周皮层(perirhinal cortex,包括 35、36 区但按作者的定义不含颞极的 38 区)——感受野极大(常大于 60×60°)、双侧、整体式且视角不变,对复杂刺激有特异性反应。单个"祖母细胞"未必存在,更可能的是以少量神经元组成的稀疏分布式编码(sparse distributed code)。剩下的悬而未决之问是:这些"计算结果"与意识觉知究竟是什么关系——同一批神经活动的两种功能,还是由不同区域分别承担?
研究思路
作者的策略是先立起一个功能分离原则,再用解剖连接与临床损毁数据一方面限制、一方面筛选候选脑区。分离原则是:感觉皮层神经活动承担两种主功能——提供感知觉知、完成物体识别所需的计算——这两者必须以某种方式解离。他们用图 2 那样的图景说明这种解离可以在同一群神经元上实现:群体同步振荡(同步、有节律地按时间"窗口"放电)负责提供知觉觉知,而每个窗口内各神经元"放电/不放电"的 0/1 向量充当计算的载体,计算成分"秘密地"随行于觉知成分之下,本身不进入意识。按此逻辑,从视网膜到 AIT/嗅周皮层的整条腹侧通路加上海马结构都在隐式地做计算,其终点激活一个识别单元(recognition unit, RU,即某个特定物体的稀疏表征),而 RU 的激活并不直达意识。
剩下的问题于是变成:RU 的激活把信号送到哪里,才变成"我认出它了"这件事?作者由此给出候选脑区必须满足的三个解剖—临床约束:该区应与感觉皮层的表征区有前馈连接(被 RU 激活);其神经元应表现出对特定物体的特异性、振荡性活动(延续 Crick–Koch 假设的逻辑);损毁该区应造成识别觉知缺失而不损害感觉锐度。随后他们用猕猴连接数据、单细胞记录与两类失忆病人的双分离,逐一排除并最终锁定颞极皮层与 mOFC 两个区域,并按损毁后的时间梯度把二者分派给"久远/新近"两类物体。
方法
这是理论文章,其"方法"实为证据库的构成方式,来自四类材料。第一是猕猴单细胞生理:Nakamura 等在猕猴颞极皮层记录到对熟悉面孔、食物与非食物物体照片起反应的"记忆型"振荡神经元——这些细胞在视觉短时记忆任务中于刺激消失后的延迟期仍持续节律性放电,34 个振荡神经元中 29 个(85%)位于颞极腹侧部,2 个(6%)位于 AIT 最前端,3 个(9%)位于过渡区,振荡频率 3.3–28.6 Hz、多数低于 8 Hz;一个细胞对熟悉女性面孔照片振荡放电、对陌生男性面孔完全不反应、对完全陌生的螺母螺栓集合仅作非振荡反应。第二是神经解剖连接数据:颞极接收来自 AIT、嗅周皮层及视听体感分析器高阶区的前馈输入;下托(subiculum,海马结构的主要输出结构)与内嗅皮层投射到猕猴 mOFC 的 13a、13b、14c、14r、11m 各区;颞极至 mOFC 是层级上的前馈投射(mOFC 发出的纤维起自 II–III 层、终于 I–III 层);mOFC 另受丘脑背内侧核大细胞部(MDmc)强烈投射,MDmc 又接受嗅周、颞极与内嗅皮层的输入。第三是临床损毁与血管病例:双侧人类颞极损毁造成显著逆行性遗忘(丢失全部久远记忆,包括名人面孔与姓名的辨认),顺行学习与新近记忆相对保留(病例 LT、TJ 的损伤限于颞极及邻近下颞皮层,嗅周皮层与海马结构完好);mOFC 损毁在猴与人都造成视觉物体识别严重缺陷,而病人 EVR 的额叶大块切除若保留 13、14 区则视觉与听觉识别记忆正常;前交通动脉(ACoA)动脉瘤破裂——其供血恰涵盖含 mOFC 的直回与基底前脑——常造成类 Korsakoff 的严重遗忘,而久远记忆(含名人面孔识别)不受损。第四是心内对照:海马结构本身及其投射靶区(扣带、前边缘、下边缘皮层)被逐一检验,因海马 theta 振荡对感觉刺激不够特异、gamma 振荡的自相关太弱,且其损毁病人保留久远识别,故被排除出识别觉知的生产者行列。
主要结果
- 计算与觉知在原则上可分离:同一群感觉皮层神经元的同步振荡活动提供感知觉知,而其窗口化 0/1 向量码承载识别计算;振荡节律对觉知是必要的,对计算却不是(只要各物体的表征群体间保持同步即可)(Fig. 2)。因此 RU 激活本身不进入意识,计算是隐式完成的。
- RU 储存于感觉分析器的最高阶区:AIT 与嗅周皮层;此处损毁应该、且确实对久远与新近习得物体的识别都造成严重损害(猴损毁数据与人联合性视觉失认症一致),且无时间梯度——因为 RU 是任何识别的必经节点(Fig. 1 标定这些结构的位置)。而颞极或 mOFC 的损毁不影响视觉辨别与定位,只打掉"认出"的觉知。
- 颞极皮层对应久远(已巩固)物体的识别觉知:其"记忆型"振荡神经元对熟悉物体特异性放电;人类颞极损毁病例(LT、TJ 等)丢失久远名人面孔/姓名识别而顺行学习保留。由于熟人面孔随岁月变化需要不断更新 RU、须动用新近识别系统,这些病人仍能认出家人——这一悖论性细节恰是模型的预测。
- mOFC 对应新近习得物体的识别觉知:它是下托与内嗅皮层的投射靶、又是颞极前馈投射的主要皮层目标,与海马损毁表现等同的"新近记忆缺失、久远保留"(因海马损毁剥夺了 mOFC 的主输入);mOFC 损毁的猴与人识别严重受损,EVR 这类保留 13/14 区的病例识别正常,ACoA 病例的逆行记忆保留与 mOFC 定位一致。由于 mOFC 损毁后海马神经元活动应大体保留(下托轴突约半数有分支投射,逆行变性有限)而病人识别觉知严重损失,可反推海马结构活动本身不与识别觉知相关。
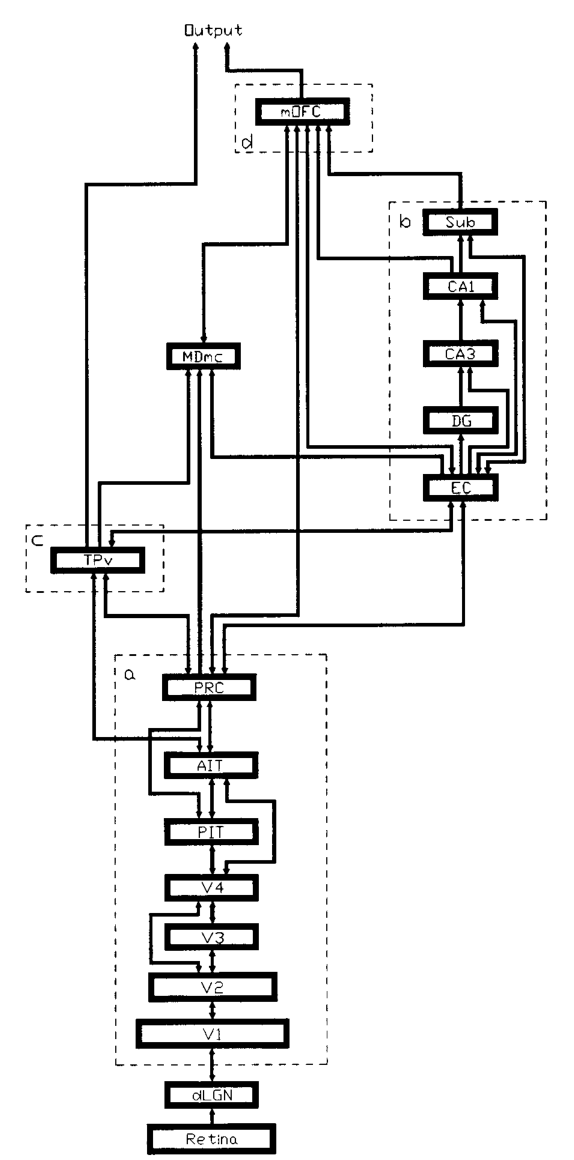
- 两个觉知区在层级上被放置为:海马结构 < mOFC < 颞极——依据是下托/CA1 到 mOFC 的非交互投射、mOFC 到颞极的前馈投射;巩固过程即识别觉知的"产地"从 mOFC 向颞极转移,由 AIT/嗅周皮层到颞极投射的渐进突触变化实现(引 Alvarez 与 Squire 1994 的网络模型)(Fig. 3 给出全通路示意)。
图注解读
图 1 · 猕猴腹侧面识别系统解剖图
原文图注:FIG. 1. Ventral view of the macaque brain, illustrating the approximate locations and sizes of the divisions of inferior temporal cortex (PIT and AIT), the perirhinal and entorhinal cortices (PrC and EC), the parahippocampal cortex (PhC), the dorsal and ventral parts of temporopolar cortex (TPd and TPv), and the divisions of the medial orbitofrontal cortex (13a, 13b, 14r, 14c, and 11m). Sulci: mos, medial orbital sulcus; mt, middle temporal sulcus; rh, rhinal sulcus; sts, superior temporal sulcus.
猕猴脑的腹面观,标出后/前下颞叶皮层(PIT/AIT)、嗅周与内嗅皮层、海马旁皮层、颞极背腹两部(TPd/TPv)以及 mOFC 的五分区(13a、13b、14r、14c、11m),并以嗅沟(rh)与颞上沟等作定位参照。这是全文解剖论证的"地图":从枕颞端(感觉分析器)向喙端依次排到颞极与 mOFC,读者应按"计算在尾侧、觉知在喙侧"的方向去读,它支撑主要结果第 2、3、4 条所涉的所有区域定位。
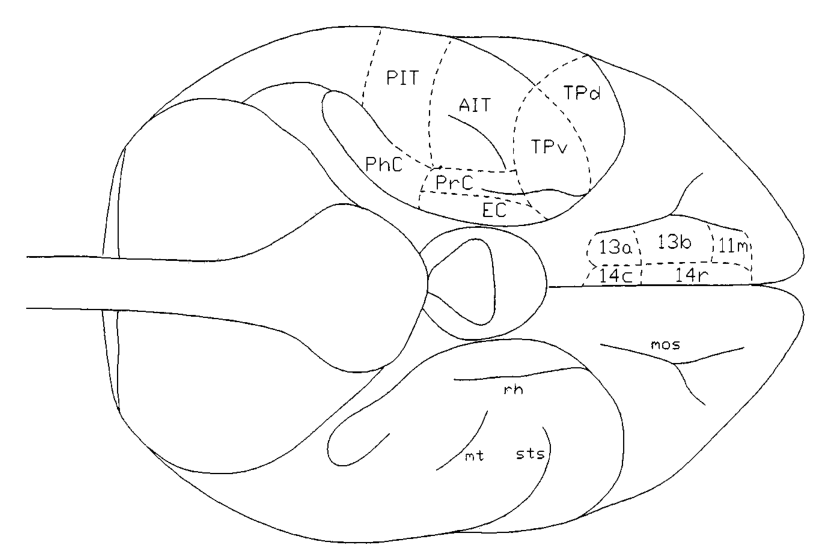
图 2 · 八个神经元同步振荡与向量编码示例
原文图注:FIG. 2. Example of synchronized oscillatory activities in eight neurons. Each neuron fires action potentials predominantly during temporal "windows" that are spaced regularly (T = 33 ms). Neurons fire either single action potentials or bursts of two or three spikes. A vector computational code could be obtained by assigning a 1 or a 0 to each neuron depending on whether it fires or does not fire within each particular window. For example, the vector code for the first window is (1,1,1,1,1,1,1,1), and the code for the eighth window is (1,0,0,1,1,0,0,1).
示意图画 8 个神经元各自的动作电位发放:放电主要落在每 33 ms 一个的规则时间"窗口"内,形式为单脉冲或 2–3 个脉冲的爆发。若给每个神经元在每窗口记 1(放电)或 0(不放),就得到随窗口更替的向量序列(如第一个窗 (1,1,1,1,1,1,1,1)、第八个窗 (1,0,0,1,1,0,0,1))。读图的关键在于同一活动的两副面孔:整体同步振荡样式=感知觉知的载体的候选者,窗口向量=永远不会被意识到的计算码。这是"双功能解离"假说最直观的图示,支撑主要结果第 1 条。
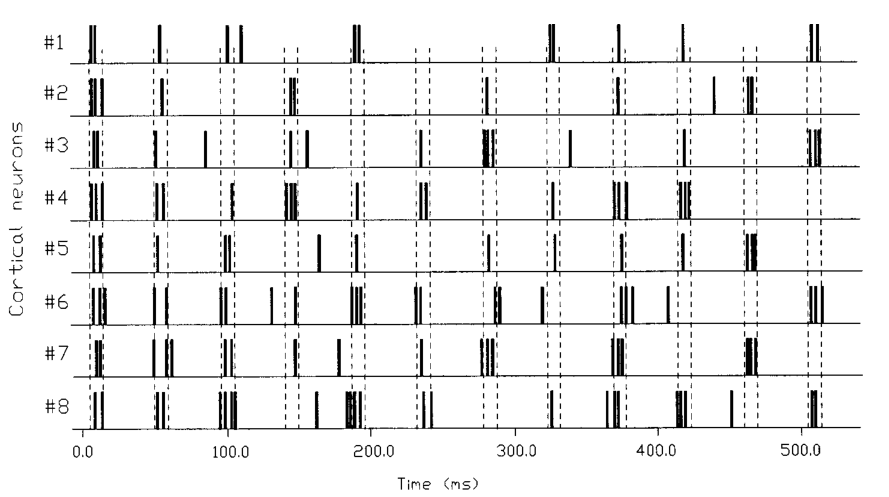
图 3 · 从感觉皮层到识别觉知区的通路示意
原文图注:FIG. 3. Schematic of network of proposed neural pathways from sensory cortex to the areas in which neuronal activities provide the awareness of recognition of visual objects. (a) Simplified diagram of the ventral stream of the cortical visual analyzer. (b) Hippocampal formation. (c) Ventral temporopolar cortex, where activities provide recognition awareness of objects learned in the remote past. (d) Medial orbitofrontal cortex, where activities provide recognition awareness of objects learned in the recent past. Abbreviations: AIT, anterior inferior temporal cortex; DG, dentate gyrus; EC, entorhinal cortex; MDmc, magnocellular division of the mediodorsal thalamic nucleus; mOFC, medial orbitofrontal cortex; PIT, posterior inferior temporal cortex; PRC, perirhinal cortex; Sub, subiculum; TPv, ventral part of the temporopolar cortex; V1–V4, visual areas in occipitotemporal cortex.
全文的枢纽图,四个框(a)–(d) 分别为腹侧通路简化图、海马结构、颞极腹侧部(久远物体识别觉知产地)与 mOFC(新近物体识别觉知产地),箭头给出提议的通路:V1–V4 → PIT → AIT/嗅周皮层(RU 所在地)之后分两路——直接到颞极(对应久远物体)与经海马结构到 mOFC(对应新近物体);丘脑 MDmc 通路(嗅周/内嗅 → MDmc → mOFC)作为可能但未确定的旁路画出;mOFC 与颞极之间还有双向连接以绑定两处觉知活动、防止"双重识别事件"。读图时把它与正文讨论里的十步运行流程对照(从视网膜振荡到巩固转移),它支撑主要结果第 3–5 条的整体架构。
讨论
作者在讨论里先自答模型的中心预测:mOFC 应存在与颞极"记忆型"细胞类似的、对特定物体特异性放电的振荡神经元——这一预测当时未被检验,文章实际上为实验指了路。他们还提出一种原则上可行的分离实验:用局部麻醉剂选择性削弱视皮层神经元的振荡节律性(全身氟烷已知能显著削弱鸟类顶盖的振荡样式),若计算成分所受影响有限而感知觉知丧失,同时 mOFC 不受影响,就应出现"识别觉知仍在、知觉觉知消失"的表型;临床上的"反向 Anton 综合征"病例(患者自称全盲、却能在视野右上象限认出单词与面孔,自述"我感觉到了")被引为这种分离可能存在的证据——作者推测 spared V1 岛内活动不足以产生知觉觉知的振荡同步,但计算通路仍通往下颞与嗅周皮层。
文章还借这套框架介入 Crick–Koch 之争:Koch 与 Crick 曾主张参与意识的神经元必须直接投射到额叶(否则无法报告意识),并据此排除 V1;作者反驳说这只对识别觉知成立——早期视皮层无需直达前额叶,只要颞极与 mOFC(二者确有到前运动/运动皮层及前额叶的投射)承担报告出口即可,并明确站在 Block 一边批评 Crick–Koch 混淆了现象意识与通达意识。在更一般的意识观上,作者主张意识的不同成分分别由特定脑结构中的神经活动产生,而非全局网络效应;许多纯计算模块的活动不进入意识;注意可能主要由丘脑网状核控制进入觉知的内容(引 Crick 1984 的探照灯假说);识别觉知区在认知结构层级中属于最低阶成分,其观点与 Kinsbourne 的整合场理论大体一致,只是强调组织虽大规模并行、层级上仍以串行为主。局限方面作者交代得较坦白:海马结构各组分的层级归属按现有判定标准并不适用(Fig. 3 的层级画法"有些可疑");MDmc 通路是否必要悬而未决;人颞极病例的损伤边界不齐、术语常不统一;CSF/癫痫等来源的病理数据不能像可控损毁那样切干净。所有"识别觉知由振荡活动介导"的环节,除 Nakamura 系列外,其余多为类比推理,作者自己也以"probable""may"措辞。
一句话总结
这篇文章做的事情是把 Block 的哲学二分直接翻译成解剖学:把"计算"留给感觉皮层,把"认出"分给颞极(旧物)和眶额(新物),再用连接与损毁数据把方案钉在一个十步流程图上。我喜欢它的可证伪性——mOFC 应有记忆型振荡神经元、麻醉剂应能单独切掉感知觉知——这些是真正能上手术台的命题;但我(笔记作者)也认为它对"振荡即觉知"的前提假如不成立,整个上层建筑会一起松动,读它应当作一个野心勃勃、结构漂亮而每块砖都有待钉牢的假说体系。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[] - Fig2: 提取质量
good,对齐度full,识别面板[A] - Fig3: 提取质量
good,对齐度full,识别面板[]