IT Literature Intelligence 终审版本 (VERIFIED) 论文编号:
264| 原始基线:V0_ZCODE_BASELINE| 语义审核:needs_revision| 图表审核:pass
Selectivity for 3D shape that reveals distinct areas within macaque inferior temporal cortex
Janssen · Science · 2000 · Zotero itemID=2359
注:该 PDF 开头(第 1 页前半)混入了另一篇无关论文(免疫学方向,关于红细胞与巨噬细胞)的残页。本笔记仅依据与标题相符的 Janssen、Vogels、Orban 正文撰写,残页内容未纳入解读。
一句话定位:这是第一篇在猕猴下颞叶皮层经典"物体识别区"TE 内部划出功能边界的电生理研究。作者用一对对"单眼图像完全相同、只差视差符号"的立体形状作刺激,改为“STS下岸富集对视差定义的3D凹凸形状有选择性的神经元,而外侧TE对这类3D形状通常缺乏选择性,尽管两区的二维轮廓选择性相近”。三十年来只靠解剖学标准划分的大皮层区,第一次被证明内部存在真正意义上的功能分工。
研究背景
猕猴下颞叶皮层(inferior temporal cortex, IT)是腹侧视觉通路(ventral visual stream)的终点,对物体识别至关重要;其前段即 TE 区,在颞叶占据很大一块皮层(文中给出的数量级约为 380 mm²),其中的神经元对物体的各种属性表现出选择性反应。三十多年来,这个大区域的组织方式一直让研究者困惑:凭借细胞构筑等解剖学标准,TE 可以分成若干亚区,但"解剖分区"与"神经元到底选择性编码什么"之间始终没有建立起清晰对应。换句话说,在功能上 TE 一直被当作一个整体来对待。
另一方面,由双眼视差(binocular disparity)定义的三维结构,通常被认为是背侧通路(dorsal stream)——尤其是顶内沟(intraparietal sulcus, IPS)——的领地;文中援引的证据显示 IPS 尾岸存在对"视差定义的深度朝向"有选择性的神经元,且 IPS 与 STS 下岸之间有皮层连接。于是缺口很明确:TE 内部不同解剖亚区是否存在功能特化?视差定义的 3D 形状选择性能否成为区分 TE 亚区的功能标记?这是本文要回答的问题。
研究思路
全文的核心逻辑建立在一组精心设计的刺激对上:每一对 3D 形状由同一张 2D 形状构造而来,两对成员的单眼图像完全相同,唯一的差别是双眼视差的符号——一个感知为凹的半圆柱面,一个感知为凸的半圆柱面。这样一来,任何只对单眼 2D 特征敏感的神经元都无法区分这对刺激;若神经元对"凹"与"凸"反应截然不同,它编码的就只能是视差所定义的 3D 结构本身。作者进一步要求"双眼条件下的反应差异至少是两个单眼反应之和的差异的 3 倍",从判据上排除单眼机制的解释。
在这个探针之上,作者把两类亚区放到了天平两端:利用 CT 与 MR 图像叠加重建每根电极穿刺的位置,把记录位点归属于 STS 下岸或外侧 TE,比较两区中 3D 选择性神经元的比例、选择性的强度以及双眼总和的程度。为了排除"外侧 TE 只是总体不敏感"这种平凡解释,他们还用同一批刺激的 2D 版本检验了外侧 TE 的 2D 形状选择性——这一步是整个论证能够成立的关键对照。
方法
被试为两只正视的恒河猴,训练其在 0.7° 范围内注视小目标,右眼位置用巩膜搜索线圈记录(事后分析显示刺激期间眼位偏移小于 3 角分,且无可证实 的辐辏运动)。刺激为 8 个简单 2D 形状 × 4 组深度轮廓构成的 32 对视差定义的弯曲 3D 形状,通过液晶快门分目呈现(每眼 60 Hz);刺激最大直径 5.5°,点密度 50%,点大小 4 角分,注视距离 86 cm,最大视差梯度 0.65°,呈现时长 800 ms,三种纹理填充的版本交替出现。正式检验前先做搜索测试(从每对 3D 刺激中取一个成员,彼此在 2D 拼贴上也不相同)筛出差异反应的神经元,再用源自同一 2D 形状的两对 3D 刺激检验其选择性;3D 选择性用净反应(400 ms 窗)的方差分析(ANOVA)判定(P<0.05)。
记录位置重建是本文的另一半方法学支柱:在引导管在位的情况下做 CT 扫描,确认记录舱埋置于目标坐标(前 16 mm、外 22 mm),再把 CT 与 MR 图像叠加,重建每根穿刺中反应神经元与标志点(白质—灰质边界、颅骨)的深度。最外侧的穿刺中,上部 1000 μm 的神经元归为 STS 下岸,其余归为外侧 TE;剔除 40 个过渡区神经元不改变结果。共 139 根穿刺(STS 71 根、外侧 TE 68 根),记录 828 个神经元,其中 604 个无反应;进入分析的样本为 STS 下岸 142 个、外侧 TE 82 个。3D 选择性神经元在 STS 内呈均匀分布,作者据此认为不太可能恰好在未被探及的外侧 TE 位置遗漏了同类细胞团。
主要结果
- 两区 3D 选择性比例悬殊。STS 下岸 56% 的受测神经元对 3D 形状有选择性,外侧 TE 只有 12%(χ²=40.9,P<0.001);分动物看,猴 J 为 61% 对 12%,猴 L 为 44% 对 12%(图 2A/B 展示了两个典型例子:STS 神经元对凹形反应强烈、对凸形沉默,且单眼呈现几乎无效;外侧 TE 神经元对凹凸反应同样强,单眼呈现与双眼呈现反应相当,说明它只是在检测 2D 形状)。
- 差异在选择性,不在反应强度。3D 选择性指数([ R_pref − R_nonpref ] / R_pref)的中位数在 STS 为 0.82(n=79),外侧 TE 仅为 0.58(n=10);但两区对偏好 3D 形状的平均净反应几乎一样(20.2 与 19.1 spikes/s,Kolmogorov–Smirnov 检验不显著)。也就是说外侧 TE 神经元"一样在干活",只是干的是 2D 的活。
- 编码的是视差的空间变化而非局部视差值。把偏好与非偏好 3D 形状放在 5 个深度位置呈现,37/42 的 STS 神经元是对"凹—凸"这一视差梯度变化反应,而不是对特定远—近视差值反应;受测的 4 个外侧 TE 神经元无一能归入此类。
- 双眼总和只出现在 STS。作者定义双眼总和指数 =(对偏好 3D 形状的反应 − 两单眼反应之和)/(两单眼反应之和);STS 的中位数为 0.18(n=142),外侧 TE 为 −0.41(n=82),K-S 检验 P<0.001。STS 神经元对偏好形状的响应普遍大于两单眼之和,而这种总和是非对称的——对非偏好 3D 形状(其单眼图像与偏好形状完全相同)的中位数只有 −0.65(图 3B),说明总和来自 3D 结构本身的编码,不是一般性的双眼增益。
- 排除平凡解释。外侧 TE 的 2D 形状选择性指数(0.65)与 STS(0.66)几乎相同;把视差幅度加大到 1.3° 后,76 个外侧 TE 神经元中 3D 选择性者的比例仍只有约 10%。群体层面(图 3A)同样如此:拆成两句:“外侧TE群体对3D结构的敏感性不高于统计上无选择性的对照群体(n=135)。对偏好减非偏好群体反应进行分析时,STS与外侧TE之间差异显著,F(1,34)=155.9,P<0.0001。”
图注解读
图 1 · 记录位点的解剖重建
Fig. 1. Anatomical reconstruction of the recording sites. (A) Superposition of the MR (blue) and the CT coronal section (black). The vertical bar is the guiding tube, the red line the electrode track. (B) Lateral view of the macaque brain showing the anterior-posterior extent of the recordings (vertical lines). The shaded area corresponds to area TE. (C) Estimated recording zones in STS (blue) and lateral TE (green). The red lines indicate the medio-lateral range used in (D), the right one corresponds to the penetration shown in (B). Arrows indicate fundus (a) and lip (b) of the STS, and lateral border of the anterior middle temporal sulcus (AMTS) (c). (D) Average depth (in micrometers) of the silent zones (dotted lines) and the skull (full line), for three medio-lateral bins spaced 2 mm apart. Same scale as in (C). (E) Flattened map of the estimated recording area (average of the two monkeys). (a), (b), and (c) are as in (C). The pale blue area indicates that posteriorly, STS neurons were weakly responsive. Most responsive neurons were recorded in rostral STS. (F) Shown are the 2D shapes used to derive the 3D stimuli.
这张图回答的是"数据从哪里来"。(A) 展示 MR(蓝)与 CT(黑)冠状切面的叠加,竖直条是引导管、红线是电极轨迹——这是把电生理数据钉回解剖坐标的手段;(B) 在猕猴脑外侧面标出记录的前后范围(竖线),阴影区为 TE;(C) 用蓝、绿分别标出 STS 下岸与外侧 TE 的估计记录带,红线给出 (D) 中所用的内外侧范围;(D) 按内外侧三个 2 mm 区间汇总"静默区"(虚线)与颅骨(实线)的平均深度,作为分区重建的基准;(E) 是两只猴平均后的记录区展平图,淡蓝区域提示 STS 后部神经元普遍反应弱,反应强的神经元集中在 STS 嘴侧;(F) 给出用来合成 3D 刺激的 8 个二维形状。它支撑的是方法部分与结果 1 的前提:142 与 82 这两个样本数,以及"外侧 TE 确实被充分探及"的论断。
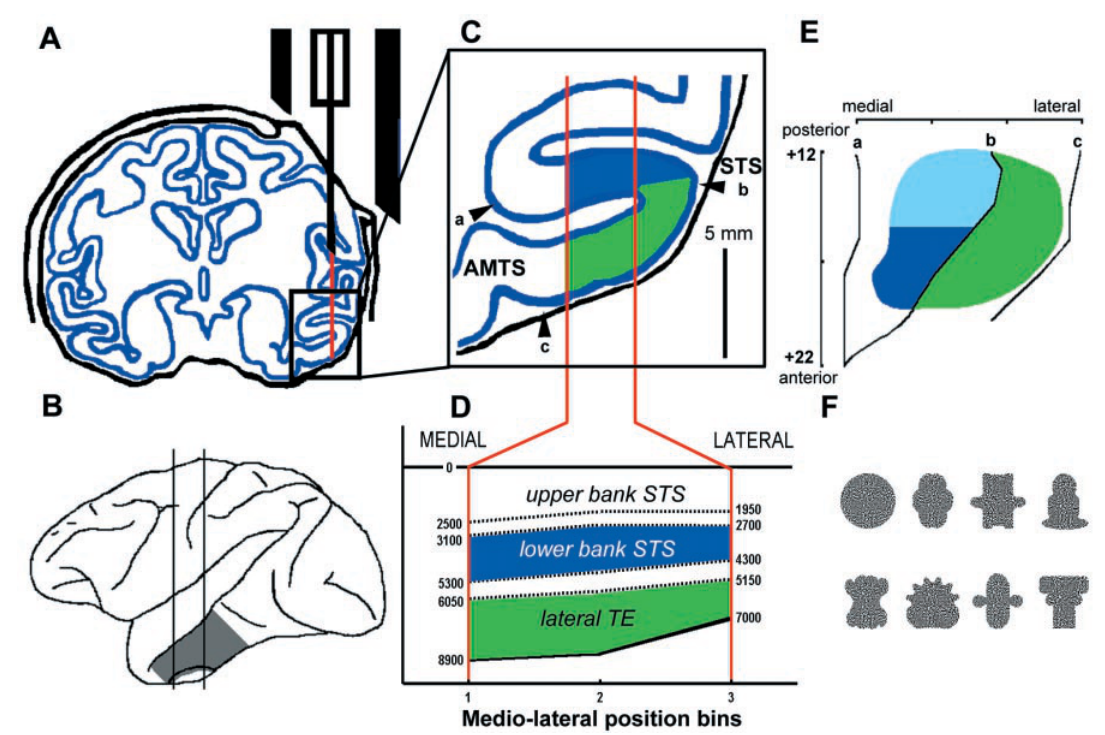
图 2 · 两类神经元的典型反应对比
Fig. 2. Responses of STS (A) and lateral TE neurons (B). The left panel illustrates the images presented to left and right eye for the preferred (top row) and the nonpreferred (bottom row) 3D shape. The middle panel illustrates the perceived 3D structure (semi-cylindrically concave and convex). This illustration does not display the actual borders of the stimulus. The right panel shows the neuronal responses to binocular ("stereo") and monocular ("left eye" and "right eye") presentation of preferred and nonpreferred 3D shapes. Bin width is 20 ms.
这是一张"读一例神经元"的入门图。左侧面板给出左、右眼分别看到的图像,中间面板画出由此感知到的 3D 结构(半圆柱状凹形与凸形,图并未展示刺激的实际边界);右侧面板是四种条件——双眼(stereo)与分别单眼(left eye、right eye)——下偏好与非偏好 3D 形状(上行、下行)诱发的刺激后时间直方图,直方图箱宽 20 ms。读图的要领在上下行的对照与 stereo 对单眼的对照:A 中的 STS 神经元只在双眼呈现偏好形状时才强烈放电,两个单眼条件几乎无反应;B 中的外侧 TE 神经元则对凹凸两形反应同样强,且单眼条件与双眼条件反应相当。这组对照直接支撑结果 1 和结果 4:前者说明 3D 选择性,后者说明该选择性不是任何单眼机制拼出来的。
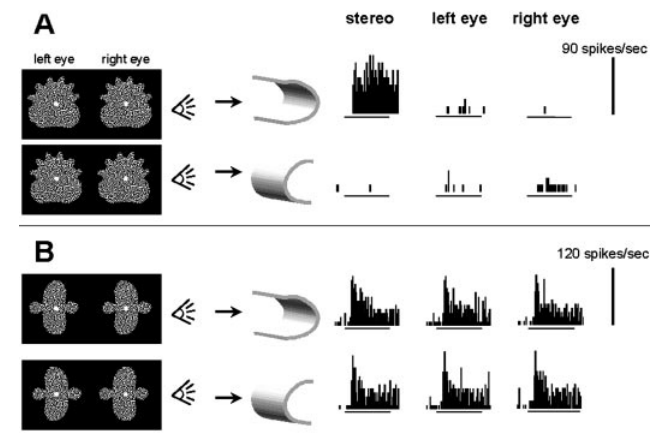
图 3 · 群体层面的分离
Fig. 3. Population responses. (A) Population peristimulus-time histograms (PSTHs) for preferred (red) and nonpreferred (blue) 3D shape, for STS (left panel), lateral TE (middle panel), and all statistically nonselective neurons (right panel). (B) Population PSTHs for the response to the preferred 3D shape in the stereo and in the monocular conditions, for STS (black) and lateral TE neurons (green).
把单细胞结论推到群体。(A) 三组群体 PSTH:STS(左)、外侧 TE(中)、全部统计上无选择性的神经元(右),红色为偏好 3D 形状、蓝色为非偏好 3D 形状。读法是看红蓝两条曲线的间距:STS 组间距明显比外侧 TE 组大,而外侧 TE 的间距与右边的"非选择性对照组"(n=135)几乎一样——这正是结果 5 中"外侧 TE 群体对 3D 结构不比非选择性群体更敏感"的图形证据。作者也坦承群体差异里含有分析性成分(偏好刺激永远取反应最大的那个),所以又配了 (B):对偏好 3D 形状,比较 stereo 与单眼条件的群体反应,STS(黑)的双眼反应远超两单眼之和,外侧 TE(绿)则否,支撑结果 4 的双眼总和结论。
讨论
作者的解读分两层。首先,本研究为 STS 的顶叶连接赋予了一个具体功能:IPS 是背侧通路的终点,其尾岸有对视差定义的深度朝向选择性的神经元;如今腹侧通路一侧的 STS 下岸被证明编码视差定义的 3D 形状,这两块彼此连接、分属背腹两条通路的皮层便在"三维结构处理"这件事上汇合了(文中并提示 3D 信息也可能经由接收 MT/V5 投射的 FST 区到达 STS)。其次,考虑到 STS 下岸独特的细胞与髓鞘构筑、特异的连接模式(它与 IPS 连接紧密,与 TE 内其他亚区如 TEad/TEav 的连接也不同于外侧 TE)以及此次发现的功能特化,作者主张这一区域应被视为 TE 内部一个独立的区(area)。至于外侧 TE 为何"看不见"视差,作者在注释中留了口子:它未必对一切 3D 结构不敏感——以阴影等单眼深度线索定义的 3D 结构(Ito 等 1994)恰可能由外侧 TE 处理;而用面孔、复杂刺激等其他维度(Baylis 等曾报道 STS 神经元更有选择性)或许还能进一步区分两个亚区。
一句话总结
在我看来,这篇文章漂亮之处在于它把"一个探针"用到了极致:凹凸只差视差符号的一对刺激,配合 2D 选择性对照与双眼总和检验,把"真的在编码 3D 结构"与"只是在看 2D 轮廓"干净地分开,然后才敢宣称 TE 不是一个区而是至少两个区。(我的理解:改为“该研究把细胞与髓鞘构筑、连接差异和视差定义3D形状选择性结合起来,为将STS下岸视作TE内独立功能区提供了综合依据”。)
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[A, B, C, D] - Fig2: 提取质量
good,对齐度full,识别面板[A, B] - Fig3: 提取质量
good,对齐度full,识别面板[A, B]
关键事实与局限性声明
- 审校纠偏: {'overclaim_id': 'OVERCLAIM_001', 'classification': 'OVERCLAIM', 'claim': '外侧TE只对二维形状敏感。', 'reason': '研究只检验了有限的视差定义凹凸刺激,不能排除外侧TE编码其他类型的3D结构。'} -> 评注:
- 审校纠偏: {'overclaim_id': 'OVERCLAIM_002', 'classification': 'OVERCLAIM', 'claim': '该研究第一次证明TE内部存在真正意义上的功能分工。', 'reason': '本文没有提供足以确立全面历史优先权的证据。'} -> 评注:
- 审校纠偏: {'overclaim_id': 'OVERCLAIM_003', 'classification': 'OVERCLAIM', 'claim': '功能标准应当压倒解剖划分。', 'reason': '作者的独立脑区判断来自解剖、连接和功能证据的共同支持,而非功能证据取代解剖证据。'} -> 评注:
- 审校纠偏: {'overclaim_id': 'OVERCLAIM_004', 'classification': 'OVERCLAIM', 'claim': '该研究是后来物体识别网络不断细分的方法论起点。', 'reason': '这是超出论文数据及讨论范围的历史影响判断。'} -> 评注:
- 补充要点: : (第 3 页)
- 补充要点: : (第 3 页)
- 补充要点: : (第 3 页)