IT Literature Intelligence 终审版本 (VERIFIED) 论文编号:
253| 原始基线:V0_ZCODE_BASELINE| 语义审核:needs_revision| 图表审核:pass
The cerebellum in the spatial problem solving: a co-star or a guest star?
Petrosini · Progress in Neurobiology · 1998 · Zotero itemID=2326
一句话定位:这是一篇综述(部分数据引自作者团队彼时尚未刊出的工作),标题里的问句就是全文的问题——小脑在空间问题解决中究竟是一个正式角色(co-star),还是只在极窄情境里偶尔出场的客串(guest star)。作者用一侧小脑切除(hemicerebellectomy, HCb)的大鼠,在 Morris 水迷宫、水 T 迷宫与主动回避等一组逐一改造过的范式里系统拆解空间行为,结论是"小脑的功能与'如何找到物体'相关,而非'物体在空间的哪里'"。它值得精读,因为延长线索期让损伤动物建立空间地图、术前习得的策略在术后完整保留、剥离联想学习后的左/右分辨测试这一系列实验,改为“通过多种对照尽量缩小了运动、程序学习与空间加工之间的替代解释,但并未将这些成分完全分离”。
研究背景
传统神经病学把小脑限定在姿态与精细运动的控制和协调上,认为它与知觉、注意、情绪、语言无关(Luciani 的开创性工作与 Holmes 的临床研究)。为解释小脑如何优化运动操作,Marr、Albus 等人后来赋予它"从运动事件与情境中获取信息、据此组装自动执行的复杂技能动作"的学习机器角色。而文中综述的新趋势是把小脑推入"认知"领域:解剖上,新皮层-脑桥-小脑传入纤维起自后顶叶、颞上沟及运动、运动前与前额区,齿状核输出经丘脑主要回到前额、额叶与顶叶,构成双向环路(Middleton & Strick 1994;Schmahmann 及其合作者);系统发育中小脑半球不断增大(Leiner 等),Ito (1993) 则把"自适应控制器"概念从运动域扩展到认知域,主张思维与运动共用同一类皮层-核团微复合体。临床与影像证据链也在累加:小脑病人视空间回忆与三维操作受损、时距与节律判断异常、按语义或音位规则生成词语困难,PET 与 fMRI 显示认知作业中齿状核激活、且程序学习任务中小脑激活与使用哪只手无关。
缺口在空间问题上尤其明显。空间能力要求环境(感觉)信息与探索(运动)动作的紧密整合,与新皮层-顶叶-海马的空间认知研究(O'Keefe 与 Nadel 的认知地图学说;额、顶、眶额损伤的空间作业障碍;纹状体参与线索学习的报告)已经拼出一个"海马-新皮层构成定向空间系统(allocentric)、基底节构成自我中心导航控制系统(egocentric)"的图景——但小脑始终没有席位,临床报告互相矛盾、突变小鼠工作又难以界定损伤范围。作者由此提出:用切割范围严格可控的单侧小脑切除来正面回答"co-star 还是 guest star",因为单侧切除既足以影响空间能力,又比全切除更少破坏运动(尤其游泳),且不累及任何小脑外结构。
研究思路
全文的总体策略是把空间任务拆开,逐层排除替代解释。首先回到经典 Morris 水迷宫(MWM)三段范式——隐藏平台(place I)、可见平台换位置(cue)、再隐藏(place II)——使地图策略(place)与非地图策略(praxic 运动序列、taxic 趋近线索)都能被观察;接着用一串变式逐一堵漏:水 T 迷宫从几何上排除"绕圈妨碍搜索"这个纯运动解释;延长线索期看损伤动物能否学会平台位置;起点逐次变更的纯 place 版检验学到的到底是不是空间地图;"无平台"试探直接引出地形偏向;术前训练-术后重测,判定损伤影响的是获取还是储存/提取;非空间预训练(黑幕围池、平台每试随机换位)把程序成分与非空间成分分离;最后主动回避任务把联想学习与空间判别切开。每一步的设计理由都直接写在结果旁边,整篇读下来像一份层层递进的实验逻辑教学。
方法
被试为大鼠,术后经尼氏(Nissl)染色切片核查切除局限于小脑一侧(图 1)。核心装置是 Morris 水迷宫(Morris water maze, MWM):在不透明水池中寻找隐藏或可见的逃生平台,以逃避潜伏期与游泳轨迹刻画策略,另用一张 1–10 分的搜索行为评分表量化探索方式(1=直接找到无需搜索,8=沿池壁绕圈后找到,10=绕圈且未找到)。空间策略沿用已有框架:praxic(重复同一组运动序列,靠始点-目标相对位置不变)、taxic(趋近平台或近端线索)、place(依窗外、家具等外源线索建立真正的地形图,allocentric mapping)。主动回避任务用穿梭箱改造:隔板上开两个各带单向门的通道,灯(条件刺激,CS)亮 10 秒后电击,动物必须穿过被任意指定的"正确"门才能得到无电击安全期,穿错门则进入封闭受电击的第二间;每天 100 试、连续 5 天,随后做正确门反转的空间迁移测试;反应分为正确/错误的回避(CS 期间穿行)与正确/错误的逃避(电击期间穿行)。主要数据来自 Petrosini et al. (1996) 与 Molinari et al. (1997a),另引 Leggio 等(投稿中)的非空间预训练实验。
主要结果
- 标准三段范式中 HCbed 大鼠全线受损:未损伤动物到第 3 次会话已全部成功;HCbed 动物 place I 相成绩极差,cue 相略升,place II 相维持不变;全程表现为贴池壁的绕圈式搜索,成功全靠"突然中断绕圈、直线冲向平台",潜伏期渐进缩短而搜索行为评分几乎不变(图 2、3)。
- 绕圈不是缺陷主因:在无法绕圈的水 T 迷宫中,HCbed 动物成功逃逸仅约随机水平(图 4),证明缺陷在于空间信息处理本身而非强迫性绕圈。
- 延长线索期后损伤动物仍能学到平台位置:线索相从常规 2 次会话延长到 5 次,成功找到次数渐进上升,但潜伏期与搜索评分收效很小(图 5);随后的纯 place 版(平台隐藏、位置固定、起点逐次更换)里它们维持既得水平,路线分析显示绕圈会在不同位置骤然中断、改为直线冲向平台,失败则退回绕圈而不再搜索(图 6);"无平台"试探中它们把搜索时间明显偏向先前获奖的 NE 象限(图 7)。结论是 HCbed 大鼠习得的确实是地形图,但该地图主要在 cue 相通过联合池内与池外线索建立。
- 损伤打的是"习得"而非"储存/提取":动物术前完成 place I–cue–place II 训练,术后仅测 place III,成绩与术前末段无显著差异,术后仍保持术前习得的直达轨迹(图 8、9)。
- 程序成分习得受损的更细证据:正常动物先做"无定位信息"的水迷宫预训练(黑幕围池、平台每试随机换位)后,只能发展出"扫描全池"的周遍搜索策略;这些动物再被切除小脑后,绕圈完全消失、继续用高效的扫描策略成功找台,成绩显著优于未预训练的 HCbed 组,成功次数与术前训练过的对照动物无显著性差异,但评分更高、潜伏期更长(图 10、11)。
- 左/右分辨本身受损:无空间要求的穿梭箱双向回避中 HCbed 与对照无异,说明光-电击的联想学习及动机不受影响;加入左右门判别后,HCbed 大鼠严重受损,但练习后能掌握任务,错误回避几乎消失,缺陷特定地定位于空间成分而与联想学习无关(图 12、13);空间反转测试(正确门互换)中,对照能重新学出,HCbed 的成绩曲线全程持平。
图注解读
图 1 · HCb 损伤范围的组织学核查
原文图注:Fig. 1. Coronal section through the cerebellum and brain stem of a HCbed rat. Nissl staining. Magni®cation: ×7.5.
一只 HCbed 大鼠的小脑与脑干冠状切面(尼氏染色,约放大 7.5 倍)。读图要点:确认切除仅限一侧小脑、未伤及脑干等小脑外结构——这是全文一切行为学解释的前提,也回应了文献中突变小鼠工作"损伤范围不可控"的批评。
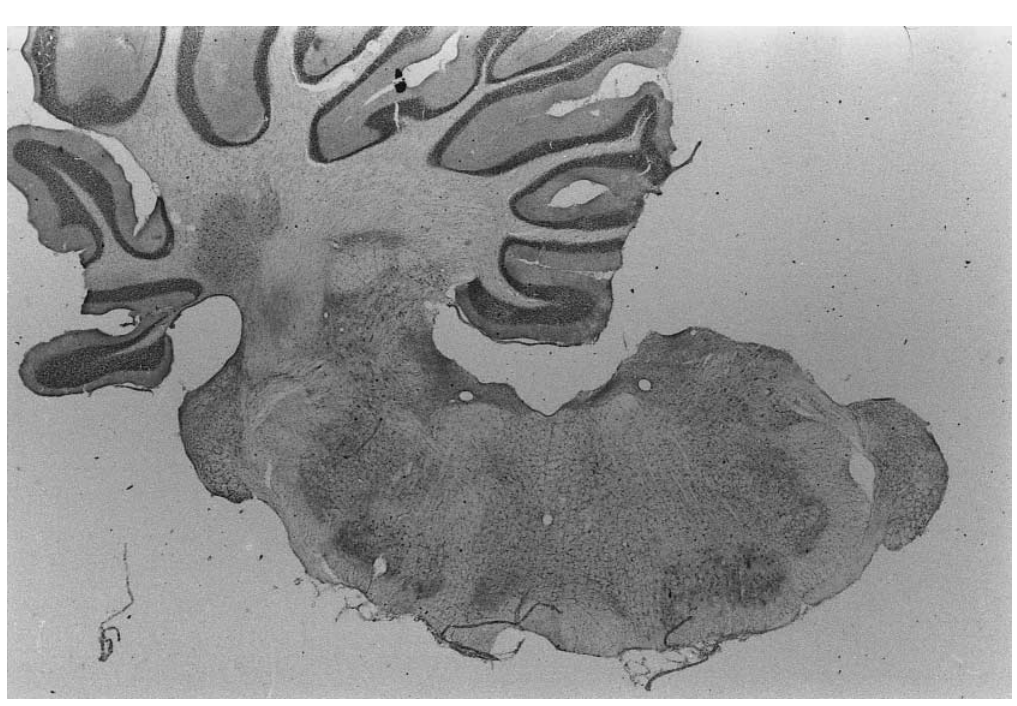
图 2 · 标准三段范式的定量对比
原文图注:Fig. 2. Mean successful ®ndings, behavioural scores and escape latencies of control and HCbed animals in the MWM paradigm characterized by a ®rst phase with the platform hidden in the NW pool quadrant (place I phase), followed by a phase with the visible platform moved into a NE position (cue phase), fol- lowed by a ®nal phase with the platform hidden in this last NE position (place II phase). Vertical bars indicate standard errors [from Petrosini et al. (1996)].
此图同时呈现三块指标:成功找到平台的次数、搜索行为评分、逃避潜伏期,对照与 HCbed 两组在三段(place I–cue–place II)逐段并列,竖条为标准误。读图要点:对照组很快到达几乎全部成功(成功率满分、评分与潜伏期持续下降),HCbed 组的成功次数全线低垂、略在 cue 相抬升后持平,而其行为评分始终停在评分表的高端——正是图 2 与表 1 合读才显出"潜伏期在缩短、搜索方式却没变好"这个关键反差,支撑结果 1。
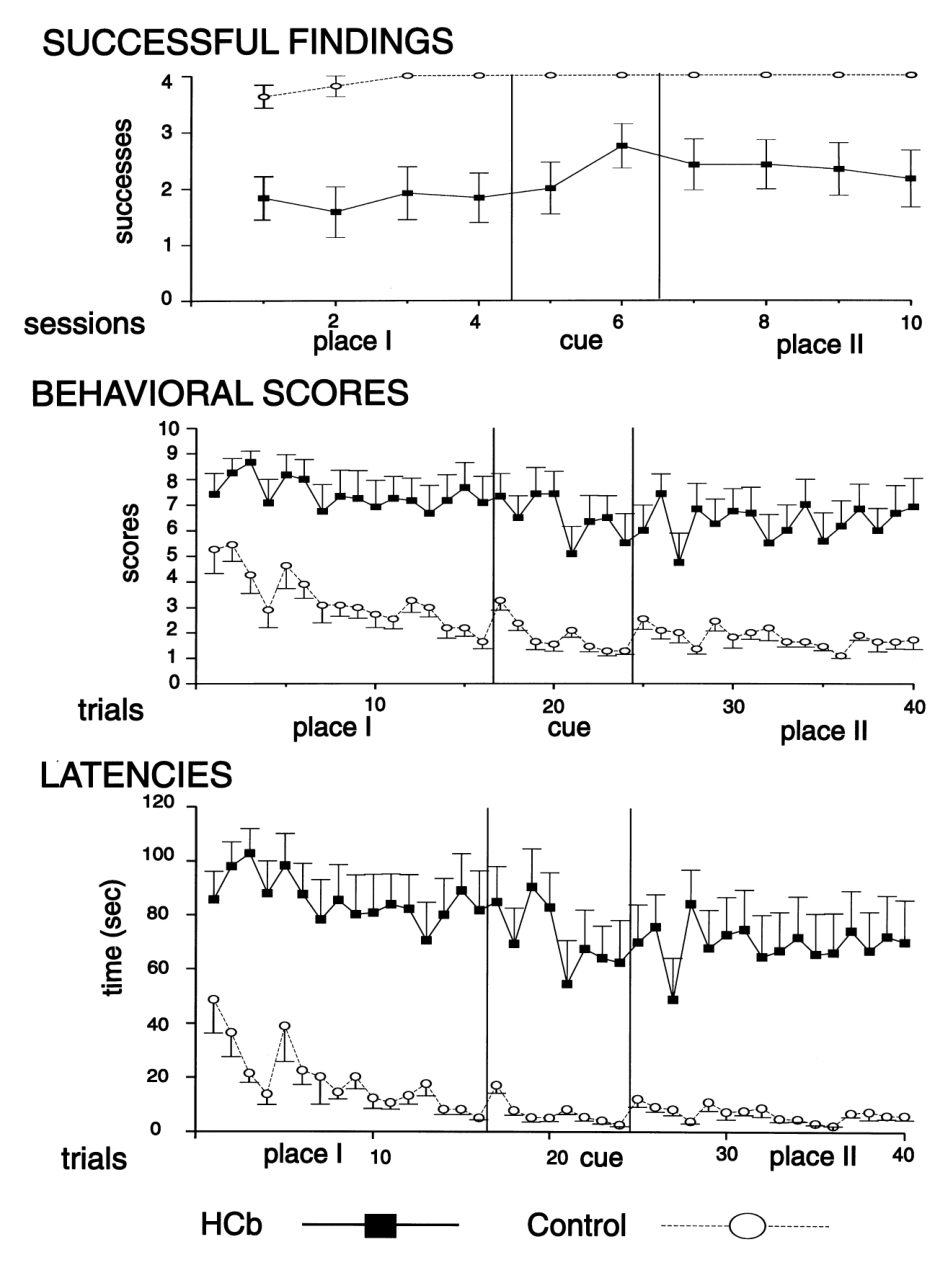
图 3 · 游泳轨迹的质性对比
原文图注:Fig. 3. Swimming trajectories of a control and a HCbed animal during Place I, Cue and Place II repre- sentative trials. While control animal exhibits searching behaviour extended around the pool in the early trial and then a direct ®nding to the platform in the successive phases, the HCbed rat displays peripheral searching in all phases of the task, with successful ®ndings only in Cue and in Place II phases [from Petrosini et al. (1996)].
代表试次的游泳轨迹图:对照组早期 trials 绕池搜索、随后各阶段近乎直达平台;HCbed 大鼠在各阶段都贴边绕圈,只有在 cue 与 place II 阶段偶有成功。读图时的关键细节是损伤动物"直线冲刺"的形态——它是对绕圈的突然中断,而不是逐步的定向修正;这为 5.7 节"绕圈是唯一剩下的探索策略"的解读提供了行为学证据。
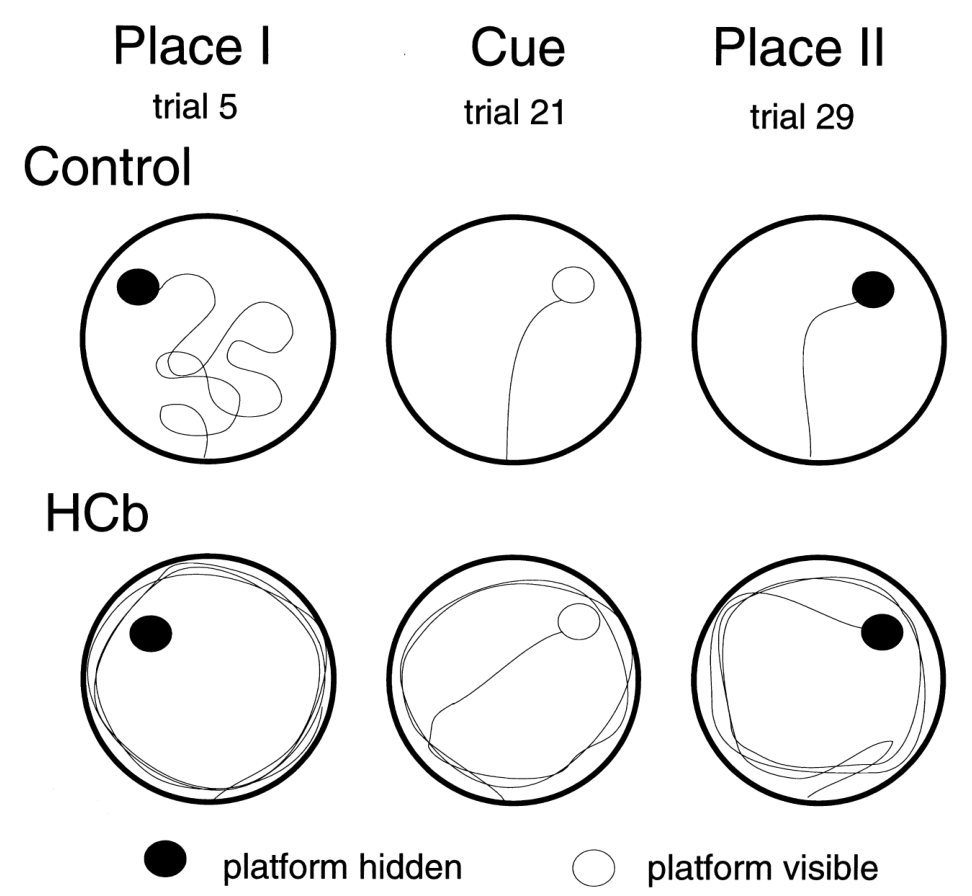
图 4 · 排除"强迫绕圈"假说
原文图注:Fig. 4. Mean successful ®ndings in control and hemicerebellectomized rats in a T-maze paradigm. Vertical bars indicate standard errors [from Petrosini et al. (1996).]
水 T 迷宫不给绕圈的地形余地,因此两组柱高之差直接用于二选一的解释:如果缺陷只是"不能抑制贴壁绕圈",那么禁止绕圈后 HCbed 表现应回升;实际成功逃逸仍近随机水平,支持"空间加工本身受损"。此图对应结果 2,也为后文"绕圈是仅存的探索策略"的正面解释铺垫。
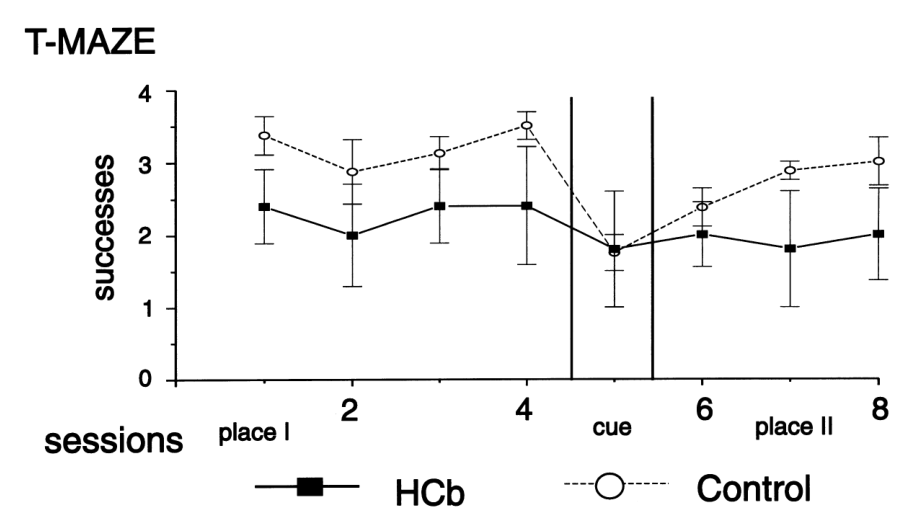
图 5 · 延长线索相的效果
原文图注:Fig. 5. Mean successful ®ndings, behavioural scores and escape latencies of control and HCbed rats in an MWM enhanced cue paradigm. Vertical bars indicate standard errors [from Petrosini et al. (1996).
同图 2 的三指标结构,但 cue 相延长到 5 次会话。读图要点:HCbed 的成功次数随重复渐进上升,而行为评分与潜伏期在最初的轻微改善后基本不再变化;随后的 place II 相(撤掉可见平台)维持所达到的水平。这组数量关系支撑结果 3 的前半——重复的"强化奖赏"(可见平台)足以发展出一种成功策略,且学到的不依赖池内线索。
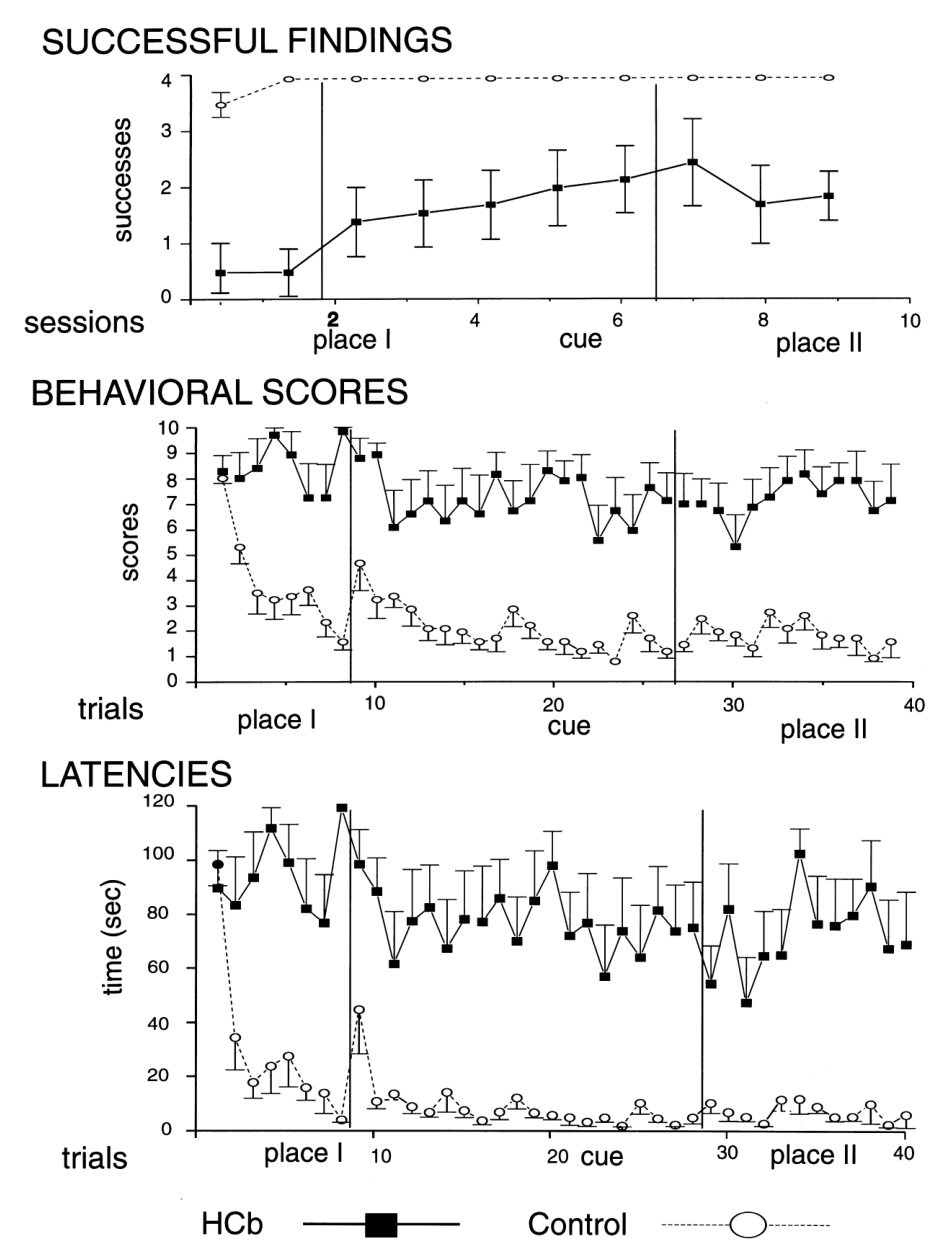
图 6 · 起点顺序变更的纯 place 版本
原文图注:Fig. 6. Mean successful ®ndings, behavioural scores and escape latencies of control and HCbed rats in an MWM paradigm with sequentially changed starting points. Vertical bars indicate standard errors [from Petrosini et al. (1996)].
平台固定隐藏、起点逐次更换——在这一设计中 praxic 与池内、池外的 taxic 策略都不再有效,解题只剩地形图一条路。读图要点:曾经历强化 cue 预训练的 HCbed 组维持了既得水平,参数之间"保持而无改进";路线分析进一步显示绕圈中断的位置每次不同。此图回答正文"它们学到的是平台位置知识、还是把池外线索当作趋触目标"之问,支持 HCbed 大鼠确实存有地形图(结果 3 中段)。
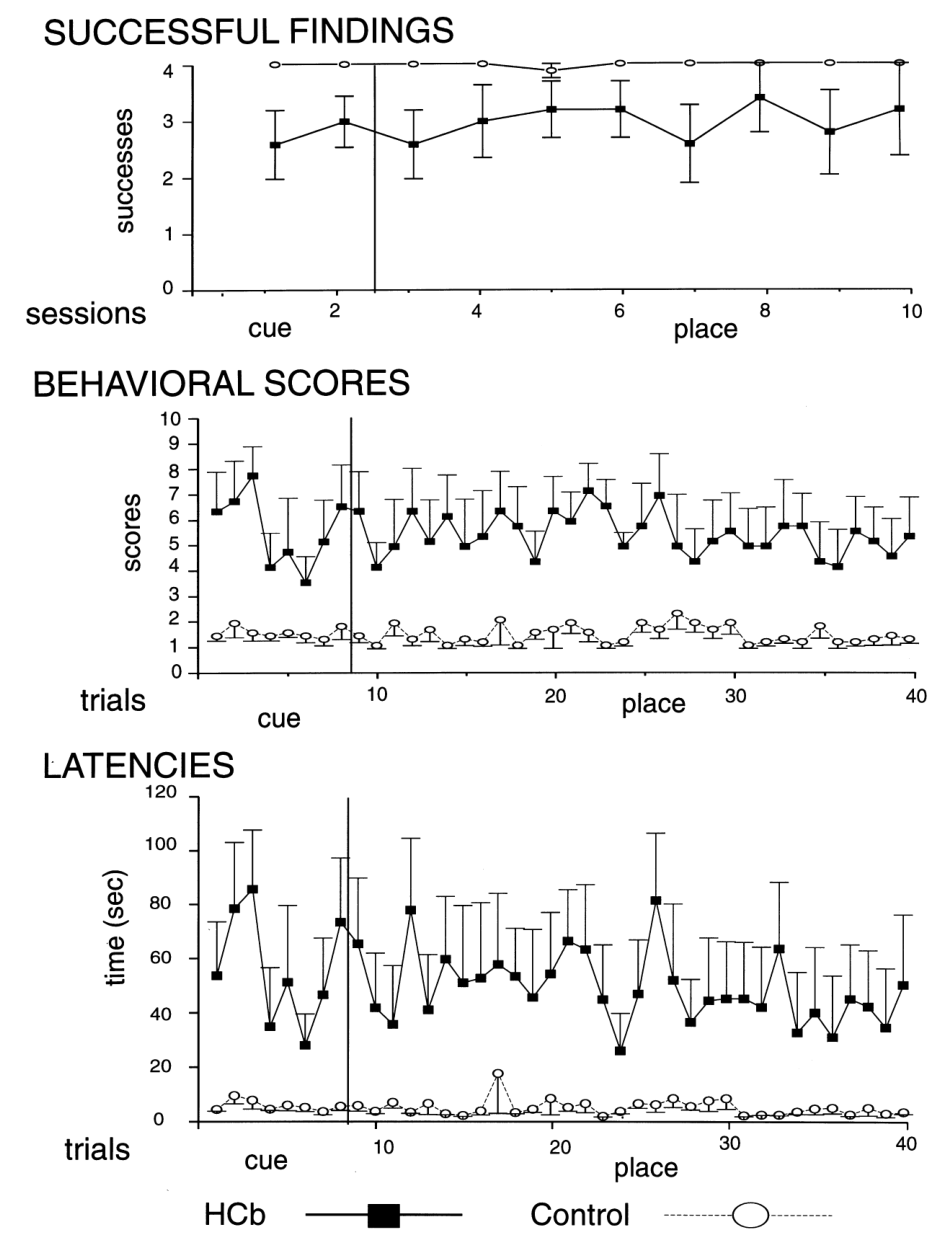
图 7 · 无平台试探的空间偏向
原文图注:Fig. 7. (A) Typical searching pattern of a HCbed animal during recall session with hidden platform (ses-
sion 1), and during two successive trials of the two no-platform' sessions in the MWM paradigm with
no platform present in the pool. (B) Distribution of searching times in the four quadrants during the
twono-platform' sessions. Note the biased preference towards the previously rewarded quadrant (NE)
[from Petrosini et al. (1996)].
(A) 为一只 HCbed 动物在隐平台回忆会话及随后两轮"无平台"会话中的典型搜索轨迹;(B) 为两轮无平台会话中四个象限的搜索时间分布,可见对先前获奖 NE 象限的明显偏向。读图顺序:先从 (A) 看轨迹形态走向 NE,再用 (B) 的定量分布确认偏向。这是"HCbed 大鼠在强线索训练后已习得平台位置"(结果 3 后半)最直接的图形证据。
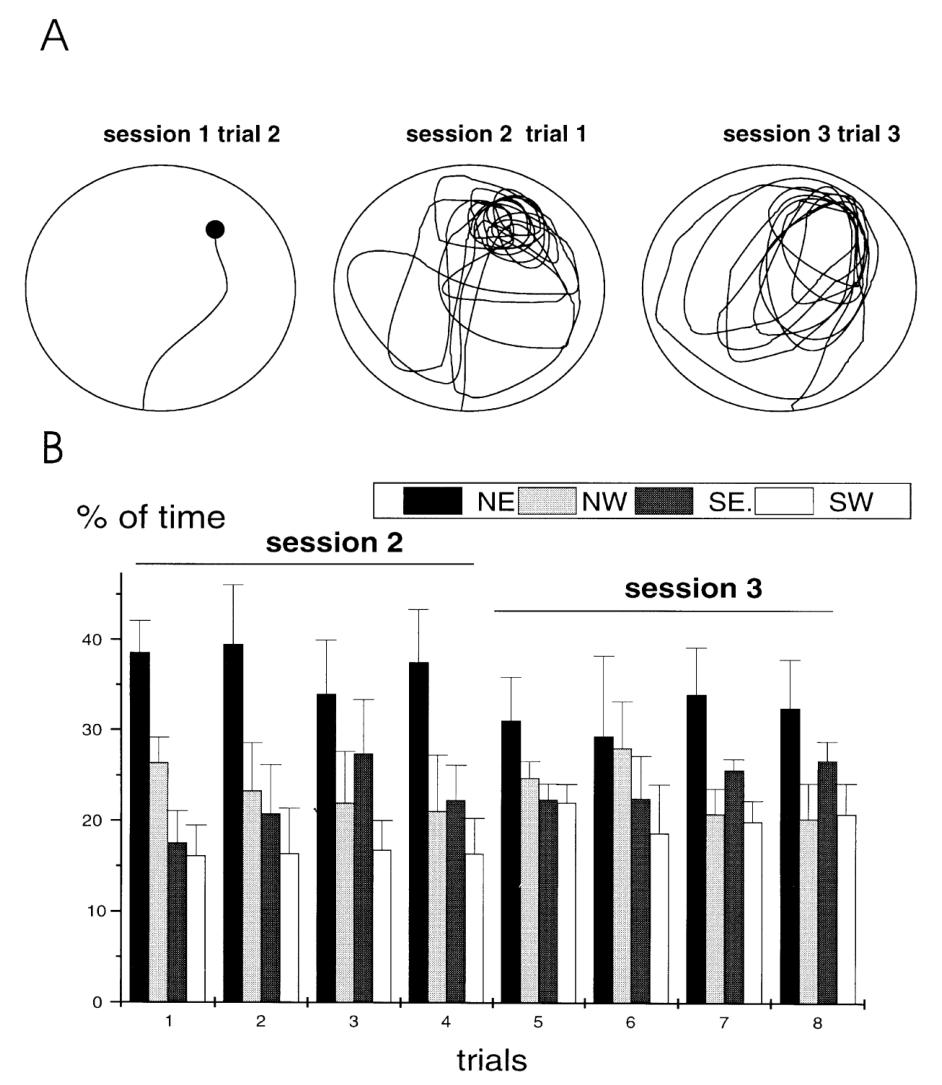
图 8 · 术前学习、术后保持的定量对比
原文图注:Fig. 8. Mean successful ®ndings, behavioural scores and escape latencies in MWM retention paradigm. Rats were pre-operatively (place I, cue and place II) and post-operatively (place III) tested. Vertical arrows indicate hemicerebellectomy (HCb). Vertical bars indicate standard errors [from Petrosini et al. (1996).]
保留(retention)范式的三指标曲线:动物术前测 place I、cue、place II,术后只测 place III;竖直箭头标出 HCb 手术时刻,是读图的时间锚点。要点:术后 place III 的成功率、评分与潜伏期与术前末段无显著差异——支撑结果 4"小脑影响的是空间学习策略的获取,而不是储存或回忆"。
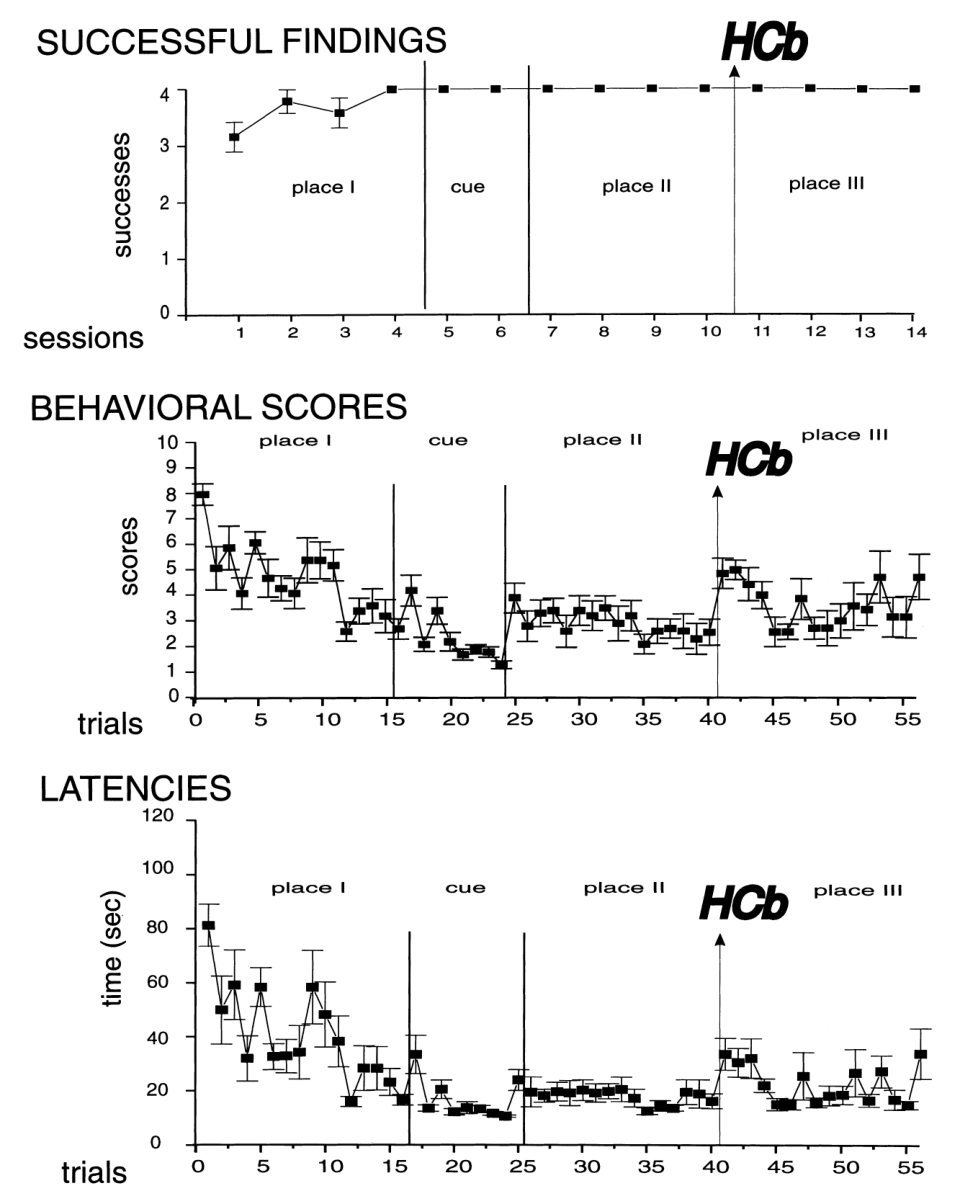
图 9 · 术后直达轨迹的保持
原文图注:Fig. 9. Swimming trajectories displayed by a rat in the retention paradigm. The animal was pre-operatively (place I and place II) and post-operatively (place III) tested. Note the maintenance of the direct trajectory acquired preopera- tively.
保留范式中的代表性游泳轨迹,给出图 8 定量数据的个例呈现:术后(place III)的轨迹仍是术前习得的直达路径。它把"术后成绩不变"落到可视层面——已建立的空间模板在失去小脑后被完整调出执行,与结果 4 一致。
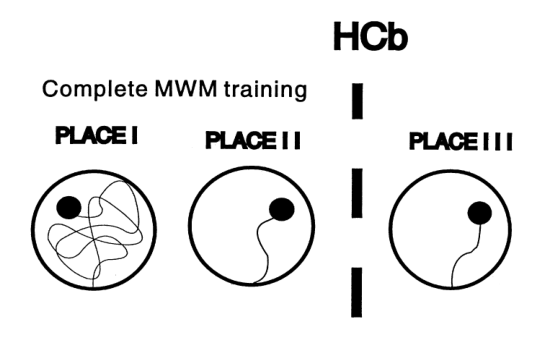
图 10 · 非空间预训练的三组比较
原文图注:Fig. 10. Mean successful ®ndings, behavioural scores and escape latencies obtained by control, HCbed and non-spatially pre-trained HCbed animals in MWM paradigm. Vertical bars indicate standard errors (from Leggio et al., submitted).
三组的成功次数、行为评分与潜伏期:普通 HCbed、非空间预训练后的 HCbed、以及(预训练的)对照。读图要点:预训练 HCbed 找台成功率显著高于未预训练 HCbed,甚至与同样经过预训练的未损伤动物无显著差异;但其评分偏高、潜伏期偏长,反映他们用的是"仔细扫描全池"而非对照依地图的直达策略。此图是结果 5 的核心证据。
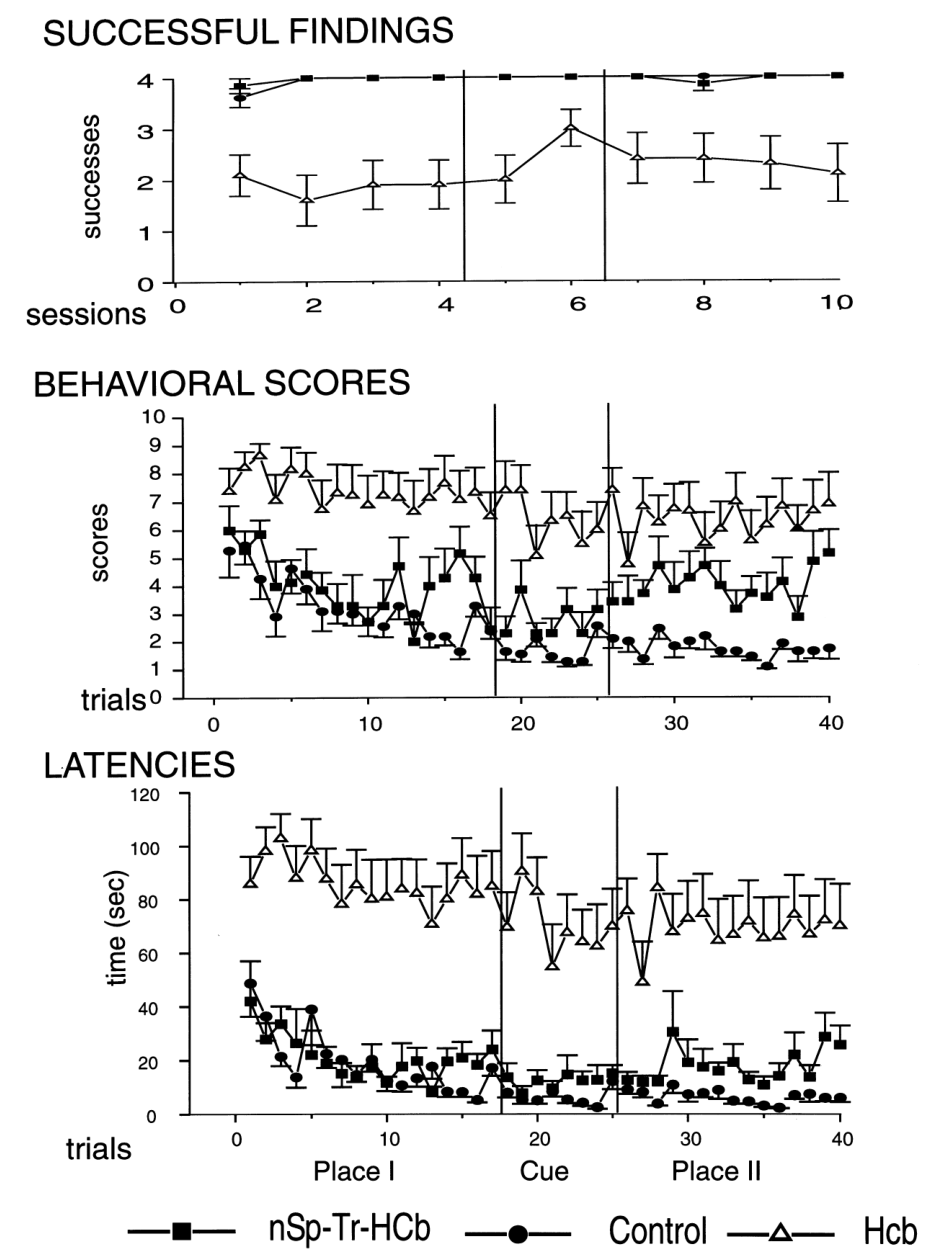
图 11 · 扫描策略的习得与保持
原文图注:Fig. 11. Swimming trajectories of a naive animal during the non-spatial pretraining paradigm. The ani- mal was pre-operatively and post-operatively tested, vertical dashed bar indicates hemicerebellectomy. Note the development of a whole pool scanning procedure during the non-spatial training and its main- tenance after the HCb in the MWM paradigm (from Leggio et al., submitted).
一只从未接触过水迷宫的动物(naive animal)在非空间预训练中的轨迹演进:黑幕消除一切定位线索后,动物逐渐形成"扫描全池"的周遍搜索程序;竖直虚线为 HCb 时刻,其后在水迷宫范式里该扫描程序原样保留。图 10+11 合读的要点是:策略可以在小脑在场时习得、在失去小脑后执行,但小脑缺失的动物没有能力在环境提供外线索后另起更有效的地形图策略——灵活性缺乏的另一证据。
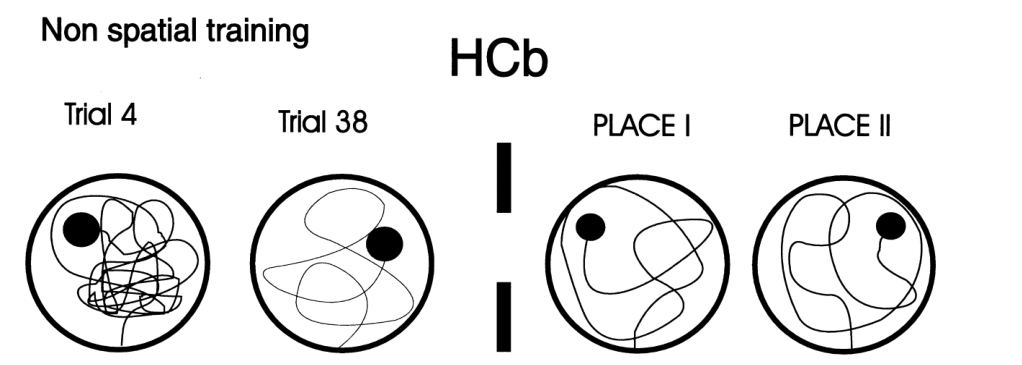
图 12 · 主动回避:加不加空间要求
原文图注:Fig. 12. (A) Mean avoidances responses of control animals in the active avoidance task with and without spatial requests. (B) Mean correct avoidances responses of control and HCbed animals in the active avoidance task with spatial requests. (C) Mean correct responses (avoidances + escapes) in control and HCbed animals in the active avoidance task with spatial requests. Vertical bars indicates standard errors [from Molinari et al. (1997a)].
(A) 对照组在"有空间要求"与"无空间要求"两版任务中的平均回避反应,用于标定增加空间要求本身带来的难度;(B) 两组在有空间要求版中的正确回避次数;(C) 两组的正确反应总数(回避+逃避)。读图顺序 A→B→C 正是作者论证的次序:HCbed 在标准版中与对照无异(联想学习完好),加入左/右门判别后正确回避显著低于对照,而通过练习可被克服——缺陷并不是简单的回避能力下降,由此导向结果 6。
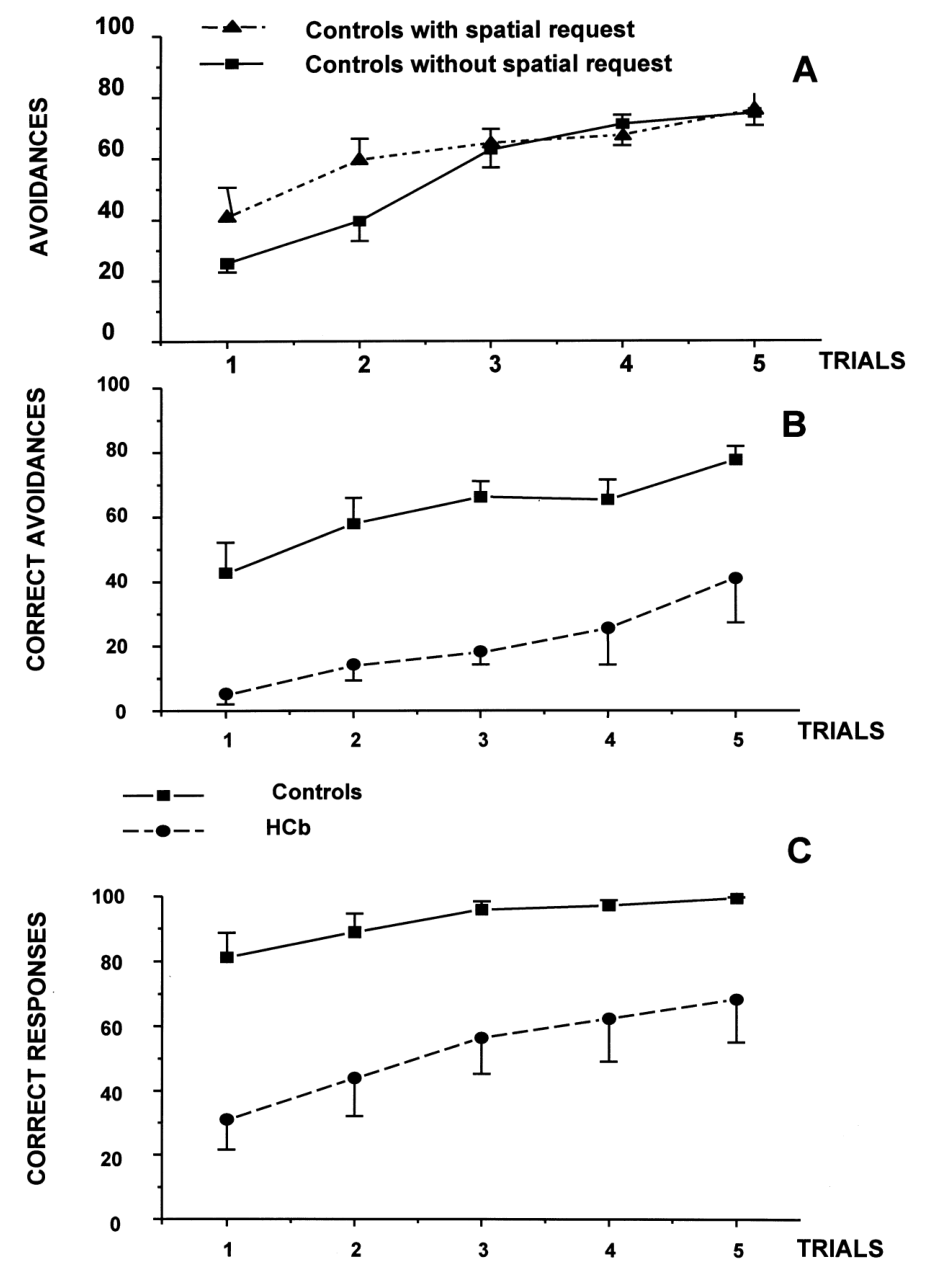
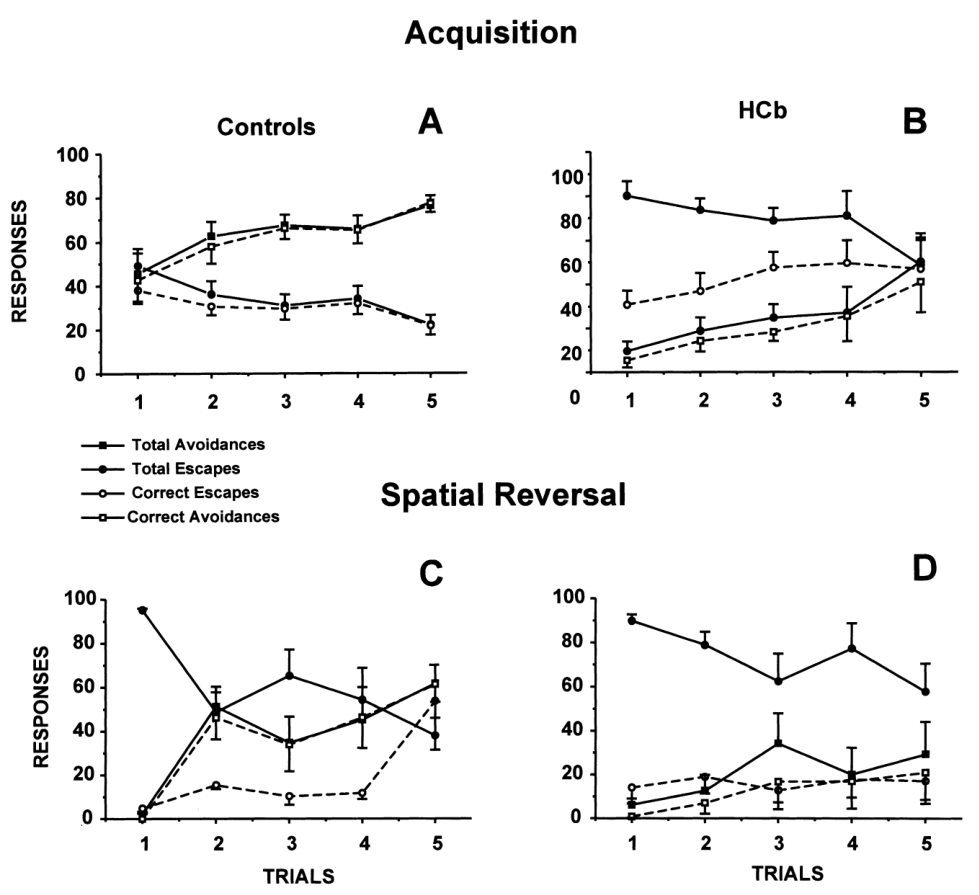
图 13 · 获取与反转中的反应结构
原文图注:Fig. 13. Mean responses of control (A and C) and HCbed (B and D) animals in the active avoidance task with spatial requests during acquisition (A and B) and spatial reversal learning (C and D). Vertical bars indicates standard errors [from Molinari et al. (1997a).]
四面板 2×2 设计:对照(A、C)与 HCbed(B、D)在获取期(A、B)与空间反转期(C、D)的表现。细致读法是看反应的结构而非总量:HCbed 在获取期的特点是错误回避极少、错误逃避居多——这种模式在反转期的对照动物身上同样出现,说明空间门分辨是回避学习的前置条件;两个动物群在同一空间分辨障碍上"殊途同归"。同时,对照组在反转期最终重新学会,HCbed 曲线持平,再次显示"情境变了换不动行为"是损伤的标志。
讨论
作者用两个层面收拢全部结果。第一层是记忆分类学:按 Squire 的显性/程序二分与 Schenk & Morris 的定义,place(地形图)功能构成陈述性空间记忆,praxic 与 taxic 构成程序性空间记忆;海马损伤打击陈述性成分、保留程序性成分——大量证据包括海马"位置细胞"、海马损伤动物隐平台版 MWM 严重受损而可见平台版完好;小脑损伤恰好相反,保留陈述性成分而打击程序性成分:探索策略近乎缺失、习得最受累、更依赖程序成分的 T 迷宫比 MWM 受损更重。有趣的对称是:无论海马还是小脑,一旦空间记忆痕迹已形成,损伤都不影响其后存储——两路系统都把新习得的空间信息送到别处(推测为新皮层)长期存放。第二层是系统解剖学:小脑应被纳入一个包含额叶、后顶叶、下颞皮层、海马与基底节的大系统;顶叶建立放置已识别对象的坐标系、下颞识别对象、海马定位对象及其关系、额叶承担空间与对象信息的时间记忆——这些构成 allocentric 空间系统;而"如何到达对象、如何探索新环境、如何相对自身定向获取空间知识"由小脑(可能加上基底节)主导的 egocentric 导航控制系统处理,两系统互相嵌接。作者并引 Schmahmann 的猕猴新发现——皮层-脑桥投射存在"空间(where)/对象(what)"二分——支持小脑-皮层反馈也按类似方式组织。
作者同时坦承局限(limitation):HCbed 大鼠成绩从不与对照等同,陈述性成分轻度受损的可能无法排除;且程序环节是任何环境地图化的前提,很难彻底剥离"用不好程序"与"空间加工本身失灵";多数空间任务(尤以 MWM 为甚)程序成分重,对海马研究无关痛痒、对小脑研究却是混淆源——这正是他们设计主动回避协议的动因。解释层面存在两种候选:动作刚性可能是计划/意图性策略受损(呼应小脑病人启动/固着与认知计划问题的临床报告,被视为"额样"认知缺损),也可能是"新策略习得"特异性受损;作者倾向后者,并借 Thach (1996) 的话——小脑"把行为情境与运动反应联结起来"——勾勒分工:小脑习得并输送情境最优策略,前额叶在已存备选间做灵活挑选。绕圈行为则被重释为发育早期遗存策略的重现(正常大鼠在出生后 17–24 天也有贴壁绕圈,Paylor & Rudy 1990),损伤让成熟策略退场、把新手程序请回来,与小脑损伤后步态以旧代新的既有报告一致。
一句话总结
依我的判断,这篇综述最大的贡献是把"小脑=运动协调"的传统框架打了一个精确的缺口:小脑不参与"哪里",而参与"怎么去"——策略的获取、新动作程序的搭建以及左/右的自我参照判别。三个变式(延长 cue、预训练保留、反转回避)的设计尤其值得学;但要挑剔的话,"co-star"结论的分量最终押在手术损伤的干净程度上,而且空间程序与非空间程序的分离仍靠行为推断、缺一个独立的程序性对照任务,这是我对该框架保留的地方。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[] - Fig10: 提取质量
good,对齐度full,识别面板[] - Fig11: 提取质量
good,对齐度full,识别面板[] - Fig12: 提取质量
good,对齐度full,识别面板[A, B, C] - Fig13: 提取质量
good,对齐度full,识别面板[A, B, C, D] - Fig2: 提取质量
good,对齐度full,识别面板[] - Fig3: 提取质量
good,对齐度full,识别面板[] - Fig4: 提取质量
good,对齐度full,识别面板[] - Fig5: 提取质量
good,对齐度full,识别面板[] - Fig6: 提取质量
good,对齐度full,识别面板[] - Fig7: 提取质量
good,对齐度full,识别面板[A, B] - Fig8: 提取质量
good,对齐度full,识别面板[] - Fig9: 提取质量
good,对齐度full,识别面板[]
关键事实与局限性声明
- 审校纠偏: {'claim': '认知成分与运动成分被异常干净地切割', 'classification': 'OVERCLAIM', 'reason': '原文明确保留程序和运动混淆。'} -> 评注:
- 审校纠偏: {'claim': 'HCbed 大鼠确实形成了认知地图', 'classification': 'INTERPRETATION', 'reason': '行为偏向支持但不直接测量认知地图。'} -> 评注:
- 审校纠偏: {'claim': '损伤只影响习得而不影响储存或提取', 'classification': 'OVERCLAIM', 'reason': '依据是未检测到显著术后下降,而非等效性或机制检验。'} -> 评注:
- 审校纠偏: {'claim': '小脑缺失使动物无法形成新策略', 'classification': 'INTERPRETATION', 'reason': '原文还提出策略切换障碍这一竞争解释。'} -> 评注:
- 审校纠偏: {'claim': '小脑不参与“哪里”', 'classification': 'OVERCLAIM', 'reason': '原文承认不能排除较轻的陈述性空间缺陷,并发现左右判别受损。'} -> 评注:
- 审校纠偏: {'claim': '小脑和海马把新习得信息送往新皮层长期存储', 'classification': 'INTERPRETATION', 'reason': '这是作者提出的系统模型,存储位置并未被本研究直接验证。'} -> 评注:
- 补充要点: : (第 页)
- 补充要点: : (第 页)
- 补充要点: : (第 页)
- 补充要点: : (第 页)