IT Literature Intelligence 终审版本 (VERIFIED) 论文编号:
217| 原始基线:V0_ZCODE_BASELINE| 语义审核:pass| 图表审核:passAstra裁决:keep_baseline(pass)
Unsupervised natural experience rapidly alters invariant object representation in visual cortex
Li · Science (New York, N.Y.) · 2008 · Zotero itemID=2054
一句话定位:这篇 Science 论文用一个巧妙的"偷天换日"范式直接检验了时间连续性假说——视觉系统靠"短时间内视网膜上相继出现的图像大概率属于同一物体"来构建不变性表征。作者在猴子自由观看时用实时眼动追踪,在眼跳落点的瞬间偷偷把物体 A 换成物体 B,仅仅一两个小时这种被篡改的自然经验就系统性地改变了成年猴下颞叶皮层(IT, inferior temporal cortex)神经元的位置容忍性(position tolerance)。它把"腹侧流如何造出不变性"这个大问题第一次拉到了单神经元、小时尺度的可测量层面。
研究背景
物体识别在计算上之所以困难,是因为同一个物体在视网膜上可以产生无数张不同的像:位置、尺度、姿态一变,像就全变。灵长类却能在 200 ms 内、无需注意线索地认出物体,这一能力一般认为由腹侧视觉流(ventral visual stream)最高层的 IT 神经元承载——它们对不同物体有选择性(selectivity),同时对物体的位置、尺度、姿态变化保持容忍(tolerance,即"不变性" invariance)。问题在于:这种神经层面的容忍性是如何被大脑构建出来的?理论工作(如 Foldiak 1991、Wallis & Rolls 1997、Wiskott & Sejnowski 2002)与此前的人类知觉实验(Cox et al., 2005,即本文参考文献 10,也是本系列第三篇 Cox 2008 的前身)提示一种可能:自然观看中,物体往往连续存在数秒,而眼跳等运动会在数百毫秒尺度上快速改变它的视网膜像——腹侧流或许正是利用了"时间上相邻的视网膜像属于同一物体"这一统计规律,以无监督(unsupervised)方式学到容忍性。缺口在于:这条假设此前只有理论与行为层面的间接证据,没有人能在成年个体的高级视觉皮层上直接制造并测量它的学习指纹。
研究思路
作者选择了视觉系统所能达到的最简单一种容忍性——位置容忍——作为突破口,并设计了一个强版本的"在线"检验:不让动物离开实验,而是让它在被篡改的视觉世界里自由探索长达两小时,期间反复抽测 IT 神经元的位置容忍性,寻找正在发生的变化。操纵的核心是利用眼跳期间的知觉盲区(saccadic masking):物体先出现在注视点上/下方 3° 的外周位置,猴子的自发性眼跳会把它的像带到视网膜中央;在"正常暴露"中物体身份不变(符合真实世界的统计),而在关键的"交换暴露"(swap exposure)中,物体恰好在猴子眼跳到位的一瞬被替换成另一个物体。这样,"外周位置上的物体 A"与"中央位置上的物体 B"就被人为地绑定成了时间上连续的同一物体。预测很具体:偏好物体 P 而不偏好物体 N 的 IT 神经元,其"P−N"物体选择性应当主要在交换位置上随暴露量下降(极端情况下甚至翻转偏好),而在对照的非交换位置几乎不变。考虑到单个 IT 神经元最多只能稳定记录约一小时,作者预先采用了"汇合神经元即被试"的设计——研究的神经元越多,检验假设的功效越强。
方法
两只成年猴(各贡献 50 与 51 个 IT 单神经元,共 n=101)。每次隔离到一个视觉反应神经元后,先从 100 个物体的集合里挑出引起强反应的偏好物体 P 和中等反应的非偏好物体 N,再交替进行两类相位。测试相位(Test Phase,约 5 分钟):把 P、N(部分神经元还加两个从未暴露的对照物体)在中央、上 3°、下 3° 三个位置完全随机地短暂呈现,猴子同时做一个与刺激无关的任务,以此保证所有神经数据都来自无注意线索、随机化的测试条件。暴露相位(Exposure Phase,约 15 分钟):猴子自由观看显示器上间歇出现的物体,实时眼动追踪(DiCarlo & Maunsell 2000 的技术)保证视网膜上的像被精确控制;每个暴露相位含 100 次正常暴露(P→P、N→N 各 50)与 100 次交换暴露(P→N、N→P 各 50),猴子的眼跳潜伏期平均 108 ms、眼跳历时平均 23 ms,替换就发生在眼跳期间。交换位置按神经元逐一平衡(一半神经元取上 3°,另一半取下 3°)。物体选择性定义为 P−N 反应差(用对比指标复核结果一致);暴露时长不同的神经元用"首次与末次测试相位之差"Δ(P−N) 汇总。另在一只猴上做了 10 个点多单元活动(MUA, multi-unit activity)记录,让动物连续暴露 2 小时以上,以考察更长时程的学习。统计用单尾配对 t 检验、bootstrap 与置换检验多重确认。
主要结果
- 位置特异性学习:跨 101 个单神经元,Δ(P−N) 在交换位置显著为负(朝偏好翻转方向),交换与非交换位置直接比较显著(p=0.005,单尾配对 t 检验),"位置 × 暴露量"交互显著(bootstrap p=0.009;置换检验 p=0.007);而同一批神经元在非交换位置平均几乎不变(Fig. 2、Fig. 3A)。
- 形状特异性:88 个神经元同时监测了两个从未在暴露相位出现的对照物体,它们在交换位置的选择性没有显著变化,且交换物体的变化显著大于对照物体(n=88, p=0.009,Fig. 3B)——学习绑定的是被暴露的那对物体,不是位置本身的一般性效应。
- 量与时间进程:交换位置的选择性变化约每 400 次交换暴露(约 1 小时)变化 5 spikes/s(最佳线性拟合斜率 −5.6 spikes/s/400 次;非交换位置仅 0.6),随暴露量单调增大(Fig. 3C)。单神经元层面因 Poisson 放电变异性,短记录下效应微弱,但在持续暴露的 MUA 上清晰可见且继续增长,2 小时后甚至出现轻微的偏好反转(N>P,Fig. 4D)。
- 方向分解与普适性:交换位置的变化由对 P 的反应下降(每 400 次暴露约 −3.0 spikes/s)与对 N 的反应上升(约 +2.3 spikes/s)大致均等地构成(Fig. 4B);两只猴各自显著(p=0.019 与 p=0.0192),变化出现在 IT 最早约 100 ms 的放电里,提示改变发生在腹侧流的前馈响应特性上;测试任务与刺激无关,说明学习不依赖任务。作者明确论证了疲劳适应与注意无法解释这些结果:两位置暴露量相等、测试刺激随机化、N 的反应是上升而非下降、且有形状特异性。
- 效应量参照:每小时约 5 spikes/s 的变化与已报道的注意效应量级相当,是此前 IT 学习研究(长时训练)效应的两倍以上;作者据此推测,人一生中约 10^8 次眼跳带来的无监督时间连续经验,可能正是腹侧流构建并维持容忍表征的机制。
图注解读
图 1 · 实验设计与预测
原文图注:Fig. 1. Experimental design and predictions. (A) For each visually responsive neuron encountered, a preferred object (P) and less-preferred object (N) were chosen from a set of 100 objects. We then alternated between a Test Phase and Exposure Phase for as long as we could record from the neuron. In the Test Phase, the neuron's response to P and N was measured with fully randomized images while each monkey performed a task unrelated to the object images (see (14)). In the Exposure Phase, free viewing monkeys spontaneously saccaded to objects that initially appeared either 3° above or below the center of gaze. ……
这张总设计图分三栏:A 展示测试相位与暴露相位的交替流程,及正常暴露与交换暴露的差别——外周物体随眼跳进入视网膜中央,交换暴露时它恰在眼跳中被换成另一个物体(每个暴露相位为 100 次正常 + 100 次交换,物体尺寸 1.5°);B 逐神经元展示暴露设计,红色交叉箭头表示交换位置上被人为篡改的"眼跳诱导时间连续性",黑色不交叉箭头是真实世界典型的统计结构;C 给出预测:交换位置(红点)的物体选择性随暴露量下降、极端情况下翻转,而非交换位置几乎不变。读懂此图,后文所有统计检验的对象(在哪测、跟谁比、预期方向)就全部明确了。
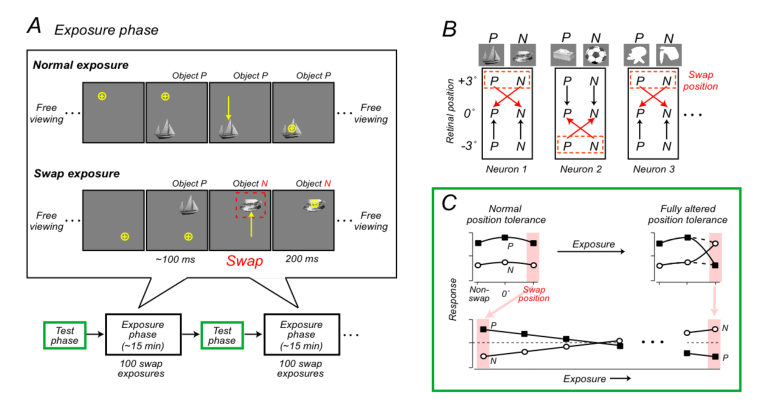
图 2 · 群体物体选择性的变化
原文图注:Fig. 2. Change in the population object selectivity. (A) Mean population object selectivity at the swap and non-swap position, and for the control objects at the swap position. The control objects were never shown to the animals during the Exposure Phase. Neuronal responses to all objects and positions were obtained during fully-randomized testing in the Test Phase (see Fig. 1). Each row of plots show neurons held for different amount of time, (e.g. the top row shows all neurons held for over 100 swap exposures -- including the neurons from the lower rows; the second row shows the neurons held for over 200 exposures; etc). ……
A 栏按暴露量分层(>100、>200 次交换暴露……逐行嵌套)展示群体在交换位置与非交换位置的 P−N 选择性:随暴露量增加,交换位置的选择性逐行塌向零,非交换位置不动;同一栏里还画了从未暴露的对照物体,它们在交换位置不随暴露变化。B 栏是 10 个 MUA 记录点的同格式结果,形态与单神经元一致。C、D 栏给出 Δ(P−N) 的分布直方图(箭头为均值),可见交换位置分布整体左移、非交换位置均值近乎为零(−0.01 至 −0.9 spikes/s 不等)。这张图支撑主要结果第 1、2 条:学习是位置特异的、形状特异的、随暴露量递增的。
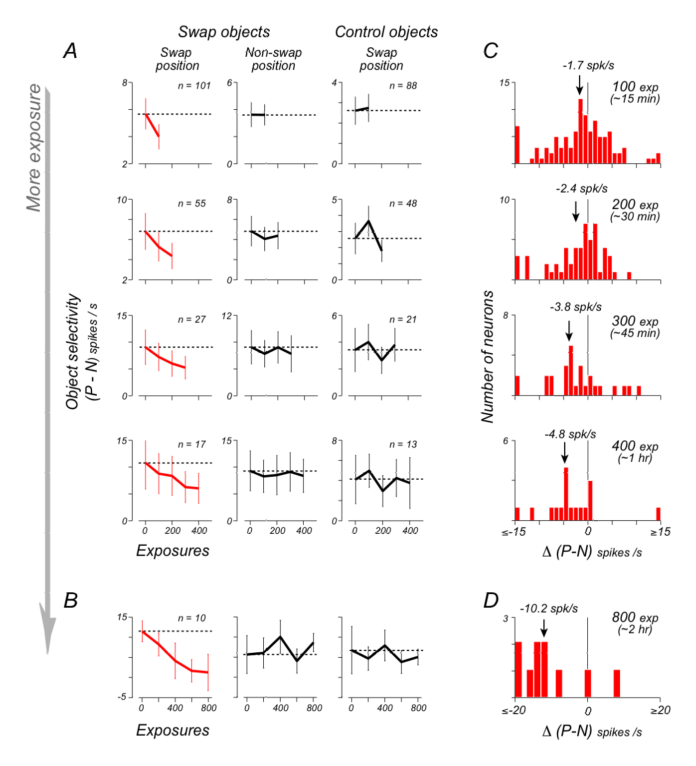
图 3 · 位置特异性、物体特异性与时间进程
原文图注:Fig. 3. Position-, object-specificity and time course. (A) Mean object selectivity change, Δ(P-N), at the swap, non-swap, and central (0°) retinal position; data from all neurons are included (by using each neuron's last available Test Phase, mean ~200 swap exposures). Δ(P-N) was computed as in Fig. 2c. The insets show the same analysis performed separately for each monkey. (B) Mean object selectivity change for the (exposed) swap objects and (non-exposed) control objects at the swap position. ……
A 栏把三个视网膜位置(交换、非交换、中央 0°)的 Δ(P−N) 并排比较,并嵌入两只猴各自的分图——只有交换位置显著为负,且效应在两只动物中都能单独复现。B 栏对比被暴露的物体对与从未暴露的对照物体在交换位置的变化,只有前者显著(p<0.05,单尾 t 检验)。C 栏是全文最关键的时间进程曲线:Δ(P−N) 对交换暴露次数作图,单神经元(n=101)与 MUA(n=10)几乎重合,零截距线性拟合斜率为 −5.6 spikes/s 每 400 次暴露(非交换位置仅 0.6),说明变化速率稳定、随经验线性累积。此图支撑主要结果第 1、3、4 条。
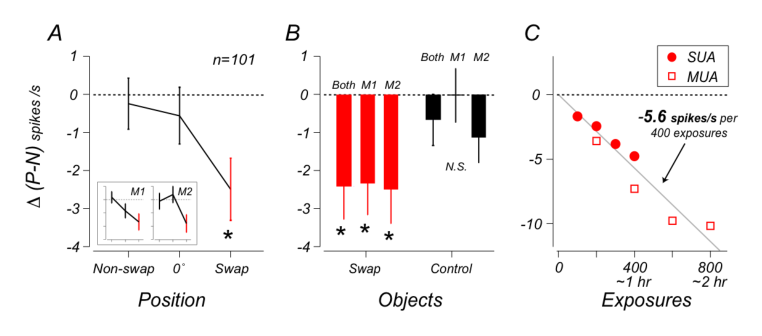
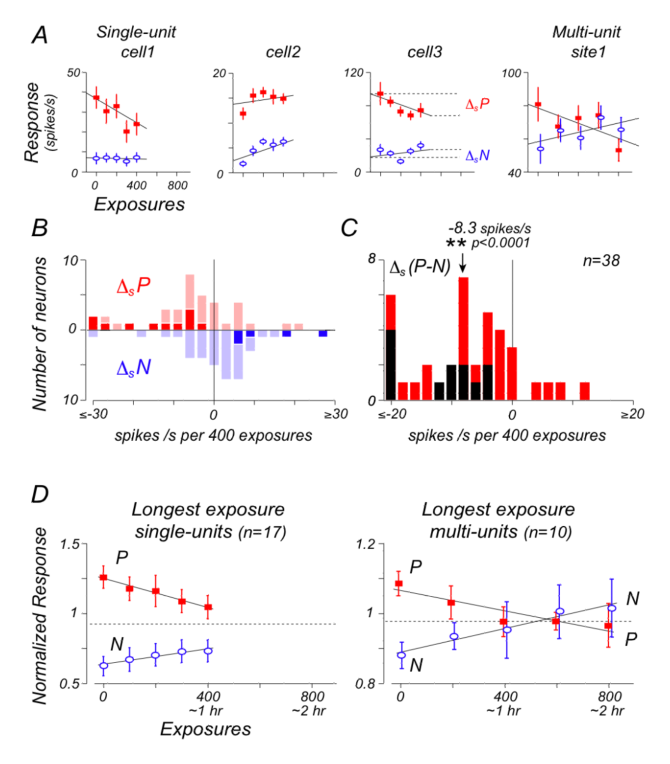
图 4 · 对物体 P 与 N 的反应分别如何改变
原文图注:Fig. 4. Responses to objects P and N. (A) Response data to object P and N at the swap position for three example neurons and one multi-unit sites as a function of exposure time. The solid line is the best-fit linear regression. The slope of each line (ΔP and ΔN) provided a measure of the change in response to object P and N for each neuron. Some neurons showed a response decrease to P, some showed a response enhancement to N, while others showed both (see examples). ……
A 栏给出三个示例神经元和一个 MUA 点对 P、N 的反应随暴露时间的散点与回归线,直观展示效应的个体差异:有的对 P 反应下降、有的对 N 上升、有的两者兼有。B 栏是 ΔP 与 ΔN 斜率的直方图(每 400 次暴露约 −3.0 与 +2.3 spikes/s,深色柱为置换检验显著者),说明群体水平的选择性变化由"降 P"与"升 N"两半构成——这一点是排除单纯适应/疲劳解释的关键证据。C 栏给出选择性斜率分布(32%,12/38 的记录达到显著;非交换位置均值 −1.7 spikes/s 且 p=0.38 不显著)。D 栏是暴露时间最长的神经元/位点的归一化反应曲线,可见两小时后选择性被推过零点、出现轻微反转。此图支撑主要结果第 3、4 条。
讨论
作者把这一效应命名为无监督时间容忍学习(UTL, unsupervised temporal tolerance learning),因为容忍性的改变取决于视网膜图像之间的时间连续性。他们先花了不少力气排除两类平凡解释——疲劳性适应与注意(主要结果第 4 条所列的四点论证),然后讨论 UTL 与既有 IT 学习文献的关系:已知 IT 神经元可以在奖励驱动下学会对"配对联结"(paired associates)形状给出相似反应(如 Sakai & Miyashita 1991),UTL 可能共享同一套可塑性机制,但有三点质的区别:变化是位置特异的、完全无需外部监督(奖励只用于驱动探索)、且工作在自然观看约 200 ms 的短时尺度上。作者也坦承边界:现有数据不能排除眼动产生机制(或相关注意机制)参与其中——比如内部信号标记"何时学"与眼跳方向可能让学习更高效——尤其此前的同类人类知觉实验提示,仅有时间连续性并不充分;且数据不约束可塑性的位点,腹侧流多个层级都可能参与。机制层面,时间连续性模型可以用类 Hebb 规则实现,与峰电位时序依赖可塑性(STDP, spike-timing-dependent plasticity)相容。最后作者给出两个判读谨慎但分量很重的判断:一、同样的经验操纵已被证明能改变人类物体知觉的位置容忍性(Cox et al., 2005),因此 UTL 不太可能是猴子特异的实验室现象;二、考虑到动物已有一生的视觉经验,每小时 5 spikes/s 的可塑量是"substantial"的——成年腹侧流的"基岩性质"(位置容忍的物体选择性)依然在快速被经验改写。
一句话总结
我认为这篇论文的漂亮之处在于把一个长期停留在理论和行为层面的假说做成了"可以被证伪的实时测量":他们不是训练动物学会什么,而是让自然经验本身说谎,然后看大脑跟着错。单神经元小时尺度上 5 spikes/s 的位移放在皮层可塑性文献里是相当惊人的速度,它第一次让"不变性是学出来的"从格言变成了带斜率的曲线;剩下的问题——时间连续性是否充分、可塑性发生在哪一层——作者自己也留得很诚实。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[A] - Fig2: 提取质量
good,对齐度full,识别面板[A] - Fig3: 提取质量
good,对齐度full,识别面板[A, B, C] - Fig4: 提取质量
good,对齐度full,识别面板[A, B, C]