IT Literature Intelligence 终审版本 (VERIFIED) 论文编号:
213| 原始基线:V0_ZCODE_BASELINE| 语义审核:pass| 图表审核:pass
Triphasic Dynamics of Stimulus-Dependent Information Flow between Single Neurons in Macaque Inferior Temporal Cortex
Hirabayashi · The Journal of Neuroscience · 2010 · Zotero itemID=1998
这篇文章第一次把格兰杰因果(Granger causality)分析直接用到行为中猕猴下颞叶(inferior temporal, IT)皮层单神经元对的放电序列上,发现 gamma 频段(30–80 Hz)的信息流并非恒定单向,而是呈"早期前向→中段慢发育后向→晚期前向回返"的三相动态,且这种动态只对构型合理的"面部样物体"出现、与放电率动态脱钩。它值得读在于用单细胞尺度的证据动摇了"交叉相关图位移峰=固定单向串联连接"的经典解读,把 IT 局部回路描绘成一个方向随时翻转的动态网络。
研究背景
经典的功能连接分析以交叉相关图(cross-correlogram, CCG)为核心:中心峰(center peak)提示共同输入或循环连接,位移峰(displaced peak)提示少突触串联连接(pauci-synaptic serial connection;Perkel et al., 1967; Moore et al., 1970)。这种框架把"谁流向谁"当成相对固定的解剖性质,尽管已有工作显示耦合强度会随行为情境与刺激改变(Engel et al., 2001; Kohn & Smith, 2005; Hirabayashi & Miyashita, 2005)。频域的相干(coherence)分析虽能刻画 gamma 频段的相互作用,但只给出净强度,不区分方向。
另一条线是因果分析:部分定向相干、定向传递函数、格兰杰因果等方法在 LFP、EEG、fMRI 等宏观信号上已揭示方向流并非同时发生,而是前后交错——例如注意任务中前额叶的自上而下信号先于反方向信号出现(Pesaran et al., 2008; Gregoriou et al., 2009)。但这些工作都在区域之间;皮层局部回路内部、单神经元对之间有没有这种有向流的"前进-回流"动态,当时完全未知。作者前作已证明 IT 内尖峰时序相关的强度依赖物体的特征构型(Hirabayashi & Miyashita, 2005),这里的缺口是:方向本身是否也动态变化、是否也依赖刺激。
研究思路
作者的策略是"先分类、再定量、再检验":先用 CCG 的峰形把记录到的细胞对分成位移峰与中心峰两类,对应经典框架里"串联连接"与"共同输入/循环连接";再对位移峰对施加非参数格兰杰因果分析——该方法绕开多变量自回归建模,直接适用于点过程的放电序列(Dhamala et al., 2008; Nedungadi et al., 2009)——配合"试验平移"(trial shifting)对照剥离刺激锁定共调制的贡献;然后用 ±125 ms 滑窗做时间分辨分析,把 cue 期 1 秒内的因果流展开成动态;最后用同一组面部特征部件、不同空间构型的 pFO/pNFO 两种刺激做对照,检验因果动态是否随刺激构型而变。所有结果再由参数法、中心峰对、微眼跳(microsaccade)控制分析三重对照夹击,确保三相模式不是方法伪影。
方法
两只日本猕猴(Macaca fuscata)在注视窗口 1.0–1.4 度内完成视觉物体判别任务:注视后呈现整体物体 1 秒(cue 期),延迟 500 ms 后出现 go 信号,需在 1 秒内按左右键报告呈现的是面部样物体(face-like object, FO)还是非面部样物体(nonface-like object, NFO)。记录期间正确率 99.7±0.4%。刺激由 4 个面部特征样部件(眼样、鼻样、嘴样部件共 120 个)在半径 3 度范围内按面部构型(FO)或随机构型(NFO)摆放,外有 7.8 度×6.1 度的轮廓;部件可组合出 40×64,000 个整体物体,猴子事先用延迟匹配任务熟悉各部件。用四极管(tetrode)在 2 只猴的 3 个半球记录多单单位,离线以 Klustakwik 加独立成分分析(ICSort)分选尖峰;对每对在线分选的神经元用 minimax 算法选出两者共同最优的 pFO 与 pNFO(同一组部件、不同构型)。
共 92 个 cue 期有足够放电的细胞构成 61 对,其中 21 对(猴 1 十二对、猴 2 九对)CCG 有显著位移峰(峰 z 分数 5.0±0.88,峰滞后 3.6±0.47 ms,不对称指数 AI=0.90±0.04)。CCG 以 cue 出现后 80 ms 起 1 秒内的放电构建,分辨率 1 ms、滞后范围 ±100 ms,要求每刺激至少 55 试次、1900 个以上尖峰;减去移位预测器(shift predictor)得到 SSCC,z 阈值 2.81(p<0.05 单侧、10 ms 内多重比较校正);AI=(R−L)/(R+L),|AI|≥0.5 判为位移峰,其余为中心峰。谱估计用多锥谱(multitaper method,Chronux 包):时间平均分析取 1 秒、9 个 Slepian 锥、约 5 Hz 分辨率;时间分辨分析取 ±125 ms 窗、25 ms 步进、5 个锥、约 12 Hz 分辨率。格兰杰因果用非参数谱矩阵分解法(Geweke 分解)计算,另用参数法(BSMART,模型阶数 7)交叉验证;显著性用置换检验(1000 次,取 gamma 频段最大值构造零分布,跨频率校正;方向性用双侧阈值),群体时间进程再做跨时间点校正。
主要结果
- 时间平均:位移峰对在 cue 期表现出前向主导的 gamma 因果。群体 gamma 相干峰在 51 Hz,显著大于试验平移对照与 cue 前基线(p<0.001);前向格兰杰因果(峰 47 Hz)显著大于试验平移对照(p<0.01)与后向(p<0.02),后向也大于对照(p<0.04);前向/后向之比在两猴分别达 3.01±0.87 与 2.94±0.89。因果方向与 CCG 位移峰所指方向一致,方向性指数与 CCG 的 AI 相关(r=0.652, p<0.001)、与相干相位相关(r=0.577, p<0.002)(图 1–3)。基线期两个方向都不显著(p≥0.07)。
- 时间分辨:gamma 因果呈三相动态,且快于相干与放电率。gamma 相干在 cue 期持续升高(峰 275 ms,p<0.001);前向因果却只出现两个分离的显著峰(150 与 550 ms,p<0.001 / p<0.03),其半高全宽 193±24 ms 显著短于相干的 402±54 ms(p<0.001);后向因果(30–65 Hz)在早期前向衰减后单一慢发育,峰在 400 ms(p<0.004),半高峰潜伏期 360±50 ms 显著长于前向的 239±45 ms(p<0.04)。时间-频谱面上,早期前向成分峰约 74 Hz、潜伏期 100 ms,先于两群神经元 250 ms 的放电率峰(图 4、5)。
- 三个成分的峰频率不同:早期前向 58.5±3.8 Hz 显著高于中段后向 47.8±3.2 Hz(p<0.006),晚期前向 52.2±3.5 Hz 与两者均无显著差异(图 6)。
- 三相模式特异且稳健:中心峰对(n=14)只有早期成分、前向与后向几乎对称(都在 150 ms 达峰),方向性从不显著(p≥0.08);改用因果本身定义方向、或只取 AI=1.0 的位移峰对(n=15),慢发育后向成分依然显著;微眼跳触发的放电率调制(最大 2.8 Hz)远小于视觉反应(20–30 Hz),其对 gamma 相干与因果的调制均不显著——三相动态不能归因于微眼跳(图 5 与补充图 4–8)。
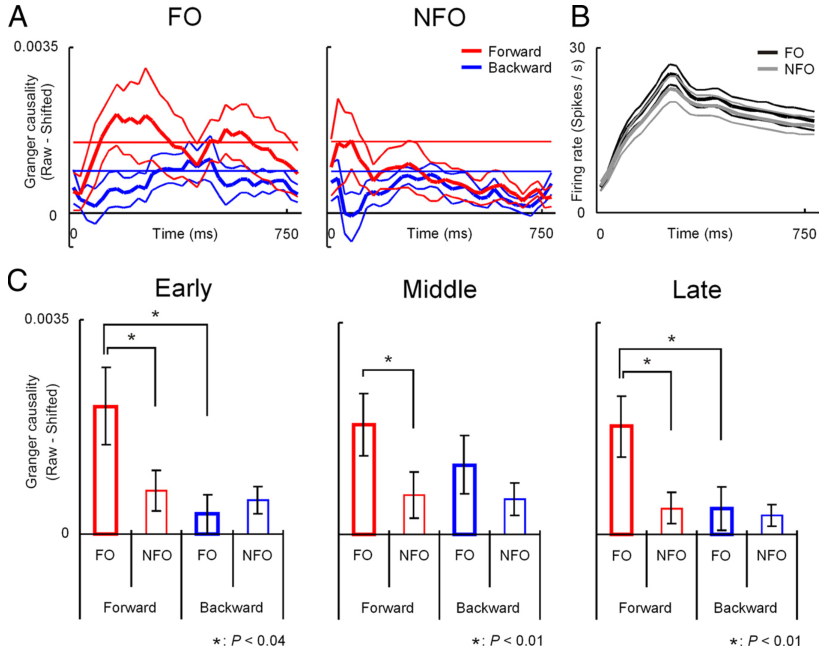
- 因果动态依赖刺激构型:pFO 诱发完整三相(前向峰 150 与 525 ms,p<0.002 / p<0.02;后向峰 475 ms,p<0.005),而同组部件随机摆放的 pNFO 只诱发早期瞬时前向成分(峰 75 ms,p<0.03);各时间点群体放电率在 pFO 与 pNFO 间无显著差异(早期 18.3±1.4 对 16.5±1.9 Hz,p≥0.06),说明该刺激依赖性不是放电率差异的反映(图 7、8)。
图注解读
图 1 · 单细胞对的示范数据:从 CCG 到因果
原文图注:Figure 1. Functional connectivity between a pair of IT neurons. A, Responses of a pair of single IT neurons to their optimal stimulus. The horizontal bar below the histogram indicates 1 s duration of stimulus presentation (cue period). B, CCG between the spike trains during the cue period. Left, Raw CCG (black) and shift predictor (gray). Abscissa, Spike time of unit 1 relative to that of unit 2. Bin width, 1 ms. Right, SSCC of the cell pair. Horizontal gray lines, Confidence limit (p < 0.05, corrected for multiple comparisons). C, Coherence between raw spike trains (orange) and between trial-shifted spike trains (kahki). Horizontal orange line, Confidence limit (p < 0.05, corrected for multiple comparisons). D, Granger causality between raw spike trains (red, unit 1 to unit 2; blue, unit 2 to unit 1) and between trial-shifted spike trains (magenta, unit 1 to unit 2; cyan, unit 2 to unit 1). Red and blue horizontal lines, Confidence limit for unit 1 to unit 2 (red) and unit 2 to unit 1 (blue). E, Directionality of the Granger causality (unit 1 to unit 2 minus unit 2 to unit 1) for raw (black) and trial-shifted (gray) spike trains. Horizontal black line, Confidence limit.
解读:这是全文方法的图解。A 给出这对神经元各自对最优刺激的 PSTH(cue 期 1 秒)。B 左是原始 CCG(黑)与移位预测器(灰),右是减去移位预测器后的 SSCC——该对在零滞后左侧有一个显著位移峰(峰 z=3.9,AI=−1.0,峰滞后 −1.5 ms),按约定指示"unit 1 流向 unit 2"的功能连接。C 显示 cue 期放电序列之间在 gamma 频段(峰 41 Hz,p<0.001)有强相干,而试验平移后几乎消失,说明相干不是刺激锁定放电的产物。D 中红色(u1→u2)与蓝色(u2→u1)都是 gamma 峰,但红色更高,方向性与 CCG 一致(38 Hz 处 p<0.001)。E 是方向性曲线,平移后消失。这张图支撑结果 1 的"示范数据"部分。
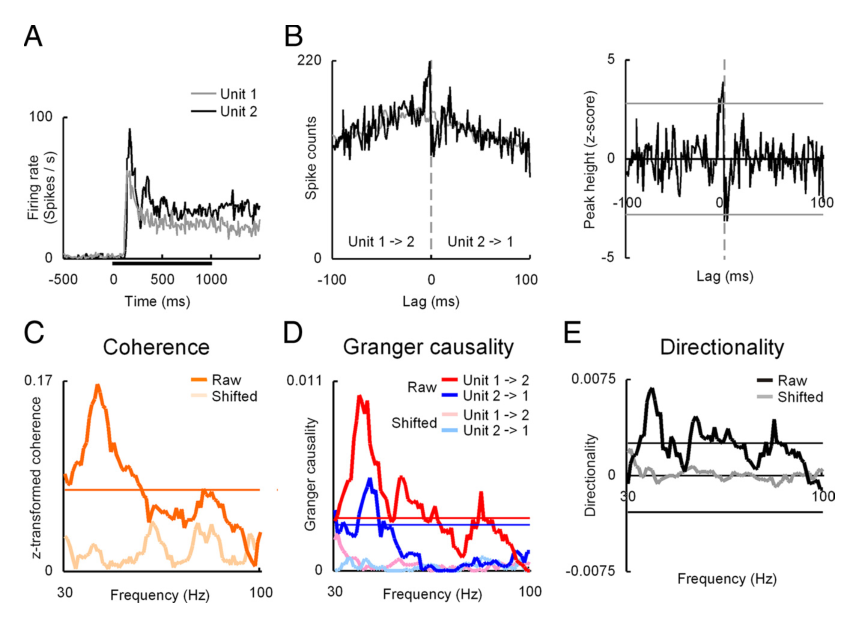
图 2 · 群体水平:cue 期前向主导、基线期无因果
原文图注:Figure 2. Population data of coherence and Granger causality for cell pairs with a displaced CCG peak. A–C, Coherence and Granger causality in the cue period. A, Coherence for raw (orange) and trial-shifted (kahki) spike trains (n = 21). Thick and thin traces depict the mean and mean±SEM, respectively. B, Granger causality for raw (red and blue) and trial-shifted (magenta and cyan) spike trains. The direction of causality was defined as forward and backward according to the CCG peak (see Results). C, Directionality of Granger causality for raw (black) and trial-shifted (gray) spike trains. The directionality was defined as the signed difference between the forward and backward components of Granger causality. D–F, Same analyses as in A–C, but for spike trains during the baseline period (1000–0 ms before cue onset). G, H, Average gamma (30–80 Hz) components of coherence (G) and Granger causality (H) for the population. Error bars represent SEM. Asterisks indicate statistical significance assessed by two-way ANOVA followed by LSD.
解读:横轴均为频率(0–100 Hz),纵轴为相干或因果强度。A–C 是 cue 期:橙色相干峰在 51 Hz,红色前向因果峰 47 Hz 高于蓝色后向,黑色方向性峰 48 Hz 明显为正。D–F 是 cue 前基线期(−1000–0 ms):两方向的因果都降到与平移对照不可区分。G、H 把 30–80 Hz 平均后做统计:cue 期相干与因果显著大于对照与基线(p<0.001),前向显著大于后向(p<0.02)。这张图支撑结果 1:位移峰对的功能连接在刺激出现时才启动、且方向偏向 CCG 所指的"前向"。
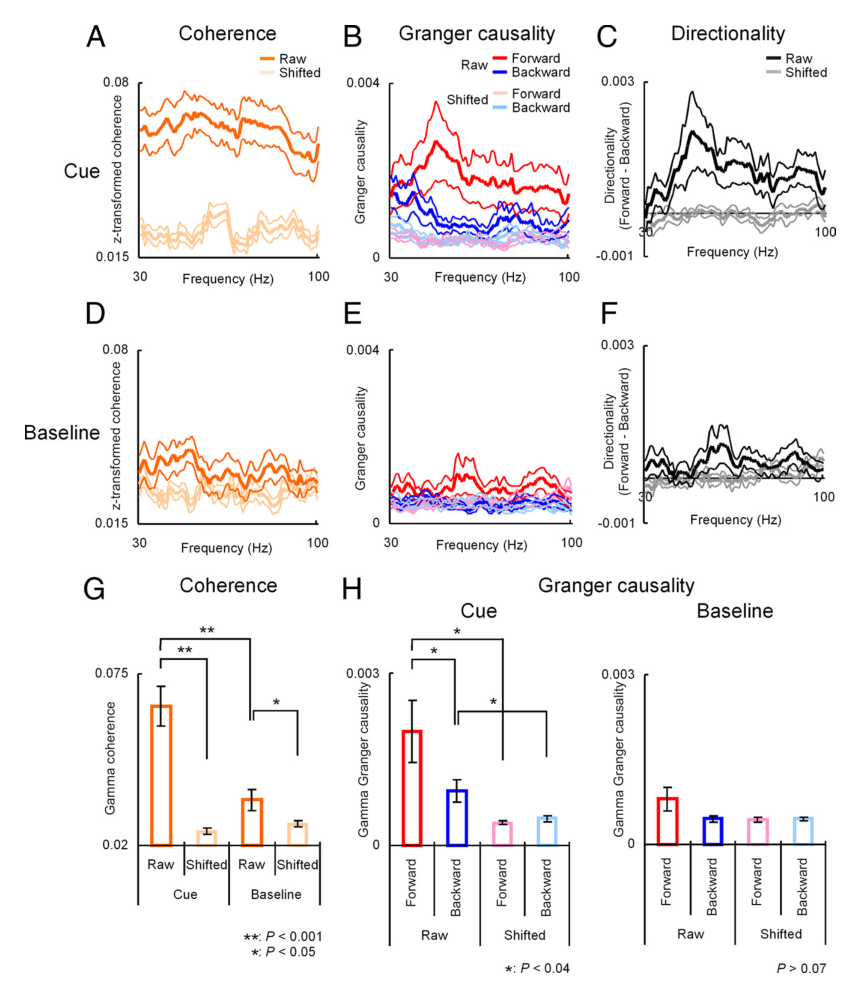
图 3 · 因果方向性与相干相位的对应
原文图注:Figure 3. Phase of coherence and its relationship with the directionality of Granger causality. A, B, Superposed phase spectra of coherence for individual cell pairs with a displaced CCG peak. Phase spectra of coherence were calculated using raw (A) and trial-shifted (B) spike trains. Different colors correspond to different cell pairs. Phase of coherence was calculated for frequencies in which the amplitude of coherence was significant for raw spike trains and the mean phase within the calculated frequencies was subtracted. Note that 0 Hz depicts the lowest frequency at which coherence of a given cell pair was significant. C, D, Relationship between the phase of coherence and the directionality index of Granger causality. Granger causality was calculated using raw (C) and trial-shifted (D) spike trains. E, Relationship between the phase of coherence and the directionality index of Granger causality calculated for individual frequencies. Horizontal line, Confidence limit (p < 0.05, corrected for multiple comparisons).
解读:A、B 把 21 对的相位谱逐对叠加,原始数据的相位在各频率间更稳定(方差更小,p<0.001),试验平移后相位散乱——稳定的相位意味着两列脉冲之间存在系统性时间滞后。C、D 是散点:相位与因果方向性指数相关(r=0.577, p<0.002),平移后相关性消失(r=−0.215)。E 把该相关按频率逐点计算,只有 40–50 Hz 与 50–60 Hz 显著——恰是相干与因果最强的频段。这张图支撑结果 1 的可靠性检验:三种独立指标(CCG 不对称性、相干相位、因果方向性)给出一致的方向判定。
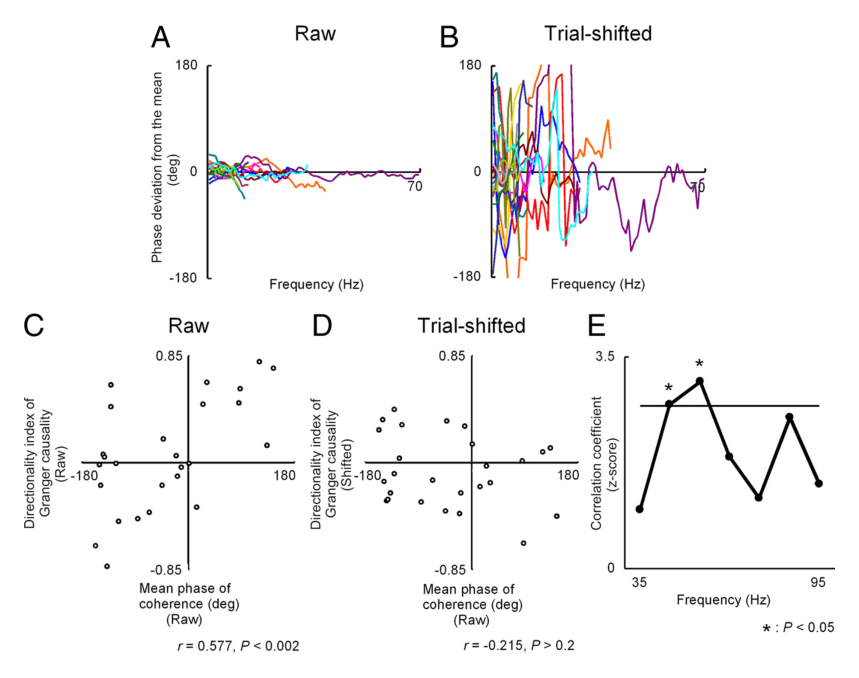
图 4 · 三相动态的时间-频谱展开
原文图注:Figure 4. Temporal dynamics of coherence and Granger causality. A–E, Data from a pair of neurons. A, Temporal dynamics of coherence calculated by sliding a ±125 ms window in 25 ms steps. Time 0 depicts the window in which spikes from −125 to 125 ms from cue onset were included. Data obtained using trial-shifted spike trains were subtracted. B, C, Temporal dynamics of Granger causality in the forward (B) and backward (C) directions. D, Temporal dynamics of directionality. E, Firing rates of the two neurons. Note that the peak firing rates were different between the units (see the left and right of the color bar for units 1 and 2, respectively). F–J, Same analyses as in A–E, but for the population of cell pairs with a displaced CCG peak (n = 21). Pre-units and post-units in J were defined from the CCG peak (see Results).
解读:横轴为相对 cue 出现的时间,纵轴为频率,颜色深浅为强度(均已减去试验平移对照)。A–E 是示范对:相干在整个 cue 期持续(峰 46 Hz、225 ms),前向因果(B)却只两次瞬时增强(250 ms 与 550 ms),后向因果(C)弱且慢,方向性(D)出现两次前向主导。F–J 是群体:F 相干持续升高;G 前向因果早期成分峰 74 Hz、100 ms,快速消退,晚期在 58 Hz、600 ms 回返;H 后向因果仅在低频段缓慢增强;I 方向性有强早峰(78 Hz、125 ms)与弱晚峰(58 Hz、600 ms);J 前/后单元的放电率几乎同形、都在 250 ms 达峰。对比 F–H 与 J 就能看出关键点:因果的快速起伏在放电率上没有对应物。这张图支撑结果 2。
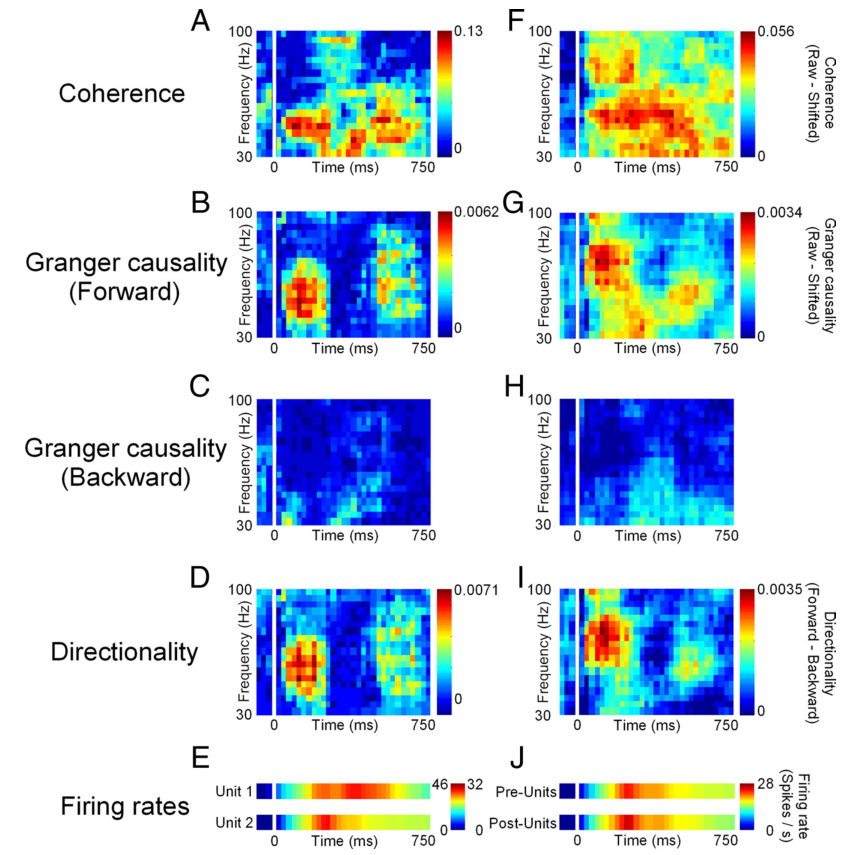
图 5 · gamma 频段的统计检验:三相格局成形
原文图注:Figure 5. Statistical analysis of coherence and Granger causality dynamics in the gamma range. A, Time course of gamma coherence (n = 21). Thick and thin traces are mean and mean±SEM, respectively. Horizontal orange line, Confidence limit (p < 0.05, corrected for multiple comparisons). B, Time course of gamma Granger causality. Horizontal red and blue lines, Confidence limit for the forward and backward directions, respectively. C, Time course of directionality. Horizontal black line, Confidence limit. D, Time course of firing rates for the pre-units and post-units.
解读:把 30–80 Hz 平均后按时间展开(−300 至 1000 ms 左右)。A:gamma 相干在 cue 期持续超阈(峰 275 ms,p<0.001)。B:红色前向曲线两次超阈(150 与 550 ms,p<0.001 / p<0.03),蓝色后向曲线在两者之间缓慢爬升、400 ms 超阈(p<0.004)——"前向—后向—前向"的三相格局在统计上正式确立。C:方向性只有第一个峰显著(150 ms,p<0.02)。D:前/后单元放电率单峰、彼此几乎重合,且没有与前向因果两个峰对应的起伏。这张图是结果 2 与 4(稳健性)的主证:同样的曲线在只用 AI=1.0 的对或换方向定义后仍然成立。
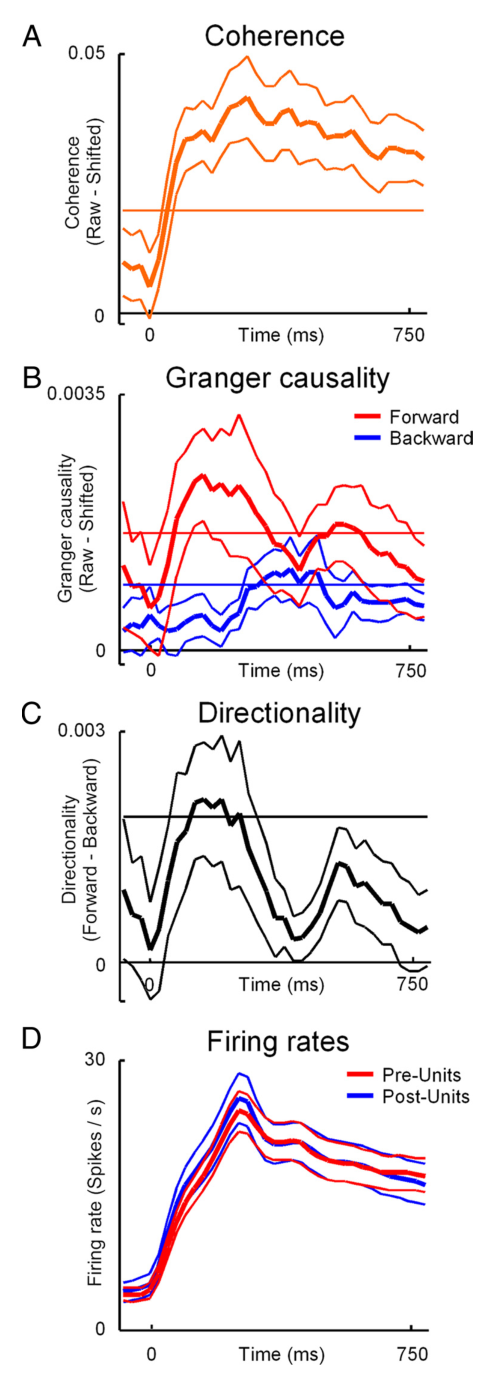
图 6 · 三个成分的峰频率彼此不同
原文图注:Figure 6. Peak frequency of Granger causality. Three significant components (early forward, middle backward, and late forward) were derived from the time course of gamma Granger causality. Each histogram represents the population average (n = 21) of the peak frequency for each component of Granger causality. Error bars represent SEM. The asterisk indicates statistical significance assessed by the paired t test, corrected for multiple comparisons.
解读:三根柱分别给出早期前向、中段后向、晚期前向成分的峰频率(58.5±3.8、47.8±3.2、52.2±3.5 Hz),配对 t 检验(多重比较校正)只有早期前向与中段后向之间的差异显著(p<0.006)。这张图支撑结果 3:三相不只是"同一振荡在时间上拉长",三个成分占据不同的频段,提示它们背后是不同的回路机制——前向快而高频,后向慢而低频。
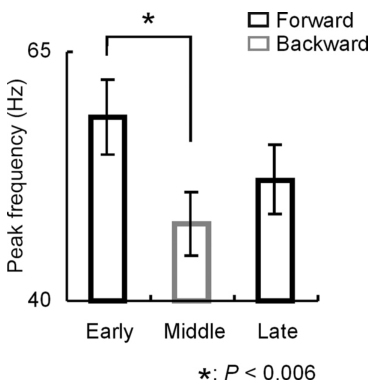
图 7 · 因果动态的刺激依赖:pFO 对 pNFO
原文图注:Figure 7. Stimulus dependence of Granger causality dynamics. Each panel represents population average (n = 21) of Granger causality dynamics in each direction in response to optimal FOs or NFOs. Optimal FO and NFO for a given cell pair were composed of the same set of facial feature-like parts that were arranged in a face-like pattern and in a random pattern, respectively.
解读:四个小面板为 pFO(左列)与 pNFO(右列)诱发的前向(上排)与后向(下排)因果动态的时间-频率图。左列基本复制了图 4 的完整三相格局;右列则只剩刺激出现后不久的早期瞬时前向成分,中段后向与晚期前向回返都消失。由于 pFO 与 pNFO 用的是完全相同的一组部件、只改变空间构型,这一对比把"三相动态"牢牢绑在"特征构型合理"上,支撑结果 5。
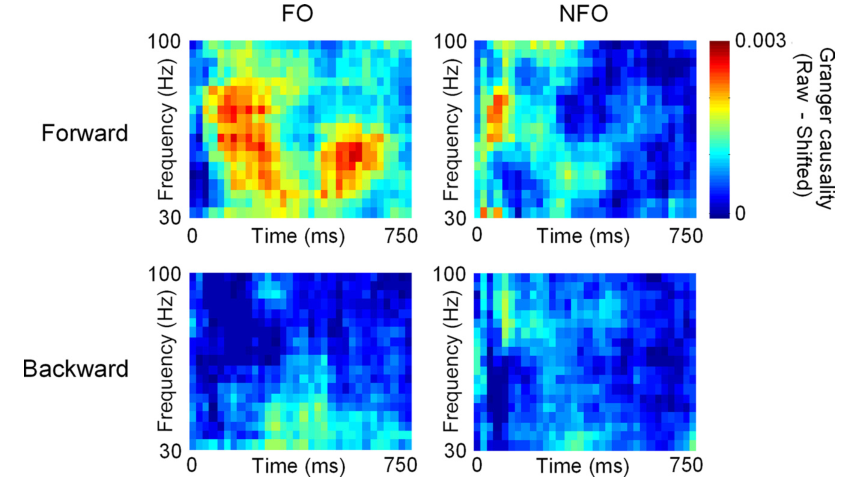
图 8 · 刺激依赖的定量统计
原文图注:Figure 8. Statistical analysis of stimulus-dependent Granger causality dynamics. A, Population average time courses of gamma Granger causality elicited by optimal FOs and NFOs (n = 21). Thin traces are mean±SEM. Red and blue horizontal lines, Confidence limit for forward and backward directions, respectively (p < 0.05, corrected for multiple comparisons). B, Dynamics of population mean firing rate for optimal FOs and NFOs. Thin traces are mean±SEM. C, Population averages of gamma Granger causality at the time point when FO-evoked causality was the maximum in each epoch. Each epoch was defined as that in which FO-derived gamma Granger causality in either direction was significant (see Results). Error bars represent SEM. Asterisks indicate statistical significance assessed by two-way ANOVA followed by LSD.
解读:A 左是 pFO 诱发的前向(红)与后向(蓝)gamma 因果时间进程,右是 pNFO 的对应曲线——pNFO 只有 75 ms 附近一个早期前向峰(p<0.03)。B 显示 pFO 与 pNFO 的群体放电率曲线几乎重叠。C 在三个 epoch 的峰值时刻(150、475、525 ms)做双向方差分析比较:早期与晚期,pFO 前向显著大于 pNFO 前向与 pFO 后向(p<0.04 / p<0.01);中段,pFO 前向大于 pNFO 前向(p<0.01)而后向在两种刺激间无差异(p≥0.2)。B 与 C 的放电率数据(早期 18.3±1.4 对 16.5±1.9 Hz 等,均不显著)共同支撑结果 5 的"非放电率解释"。
讨论
作者把结果放回经典框架:CCG 位移峰对应的前向因果在早期即出现(甚至先于放电率峰),与"少突触串联连接"的解读相容,且非参数格兰杰因果已被证明能忠实还原解剖学确认的单向连接(Nedungadi et al., 2009);但慢发育的后向成分(潜伏期 360±50 ms)意味着其底层路径远长于前向,作者借 Zhou 等(2008)对 V1 gamma 相干慢发育"归因于周边网络活动"和 Samonds 等(2009)"早期/晚期交互分别对应局部与远距回路"的思路,提出后向成分可能反映记录对与周边网络的交互,即局部回路含有一个介于单纯前馈与完全循环之间的闭环结构(Ahissar & Kleinfeld 2003);他们不排除更远处的自上而下信号参与(Tomita et al., 1999; Naya et al., 2001; Takeda et al., 2005),并引 Briggs & Usrey(2008)指出反馈可能增强信息传递。功能层面,作者把早、晚两个前向成分与 ERP 文献中结构性加工(约 170 ms)与语义性加工(400–600 ms)的分期对应(Bentin & Deouell 2000; Eimer 2000; Bruce & Young 1986),并强调三相可能只是更一般的"多相动态"在特定任务/刺激下的一个样例。对方法质疑,作者给出多重回应:中心峰对的因果动态截然不同、早期前向与后向之间的时间差超过 100 ms(远超共同输入传导延迟之差)、只用 AI=1.0 的对结果不变,甚至示范对的 CCG 在 475 ms 时段出现了对应后向成分的次级位移峰(补充图 9);相干只能给出净强度,而格兰杰因果把它分解成更快、更有方向性的成分。作者也坦承:单个神经元的放电率是大量输入的汇,本分析没有观察到与因果瞬时峰时间锁定的放电率调制,SUA 层面的相干也弱于 LFP/MUA 层面(Zeitler et al., 2006; Gregoriou et al., 2009),弱的单对交互如何汇成网络层面的行为效应仍是开放问题。
一句话总结
在我看来,这篇文章真正的贡献不是"发现了振荡",而是证明了"连接方向"本身是一个随时间展开的过程变量:同一对细胞在 150 ms、400 ms、550 ms 三个时刻扮演不同的信息流角色,而这一切只在构型合理时发生。当然,格兰杰因果在单对噪声放电序列上的解释力有限(作者自己也没找到放电率后果),三相更可能是回路的缩影而非两个细胞间的真通信——这是我的判断,不是文中的结论。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[A, B, C, D] - Fig2: 提取质量
good,对齐度full,识别面板[A, B, C, F, G] - Fig3: 提取质量
good,对齐度full,识别面板[A, B, C, D, E] - Fig4: 提取质量
good,对齐度full,识别面板[A, B, C, D, E] - Fig5: 提取质量
good,对齐度full,识别面板[A, B, C, D] - Fig6: 提取质量
good,对齐度full,识别面板[] - Fig7: 提取质量
good,对齐度full,识别面板[] - Fig8: 提取质量
good,对齐度full,识别面板[A, B, C]