IT Literature Intelligence 终审版本 (VERIFIED) 论文编号:
188| 原始基线:V0_ZCODE_BASELINE| 语义审核:minor_revision| 图表审核:pass
Role of temporal processing stages by inferior temporal neurons in facial recognition
Sugase-Miyamoto · Frontiers in Psychology · 2011 · Zotero itemID=1729
这是一篇综述,梳理"下颞叶(inferior temporal, IT)皮层神经元反应的时间阶段如何分阶段编码面孔信息"。作者团队(Sugase、Matsumoto、Kawano)自己就是这条证据链的源头——1999 年 Nature 论文发现 IT 神经元的早期瞬态反应编码"这是不是脸"这类全局类别、反应后段才编码表情和身份这类细节。本文把这批猴子单细胞证据与人类 MEG/ERP/颅内记录、行为测速的结果对齐,指出"检测/分类在先、个体识别在后"的行为时间动态可以在神经反应的时间结构里找到对应物。对想理解"面孔识别为什么需要几百毫秒、这几百毫秒里发生了什么"的读者,本文是很好的入门综述。
研究背景
面孔识别是灵长类社会生活的核心能力,而这一能力主要依赖腹侧视觉通路(ventral visual pathway)——信息依次经过 V1、V2、V4 到达下颞叶皮层(IT)。到 2011 年前后,两条证据线已经清楚:一是电生理传统,从 Gross、Bruce、Perrett 等人在猕猴颞叶记录到面孔反应神经元开始,已知 IT 神经元对面孔的反应强度可达对物体反应的两倍左右,面孔信息由稀疏的神经元群体编码,且对这些神经元的反应与动物的知觉体验(Sheinberg 与 Logothetis 的双眼竞争实验)乃至面孔构型任务表现(Sigala 与 Logothetis)相关;二是后来的 fMRI 线索,Tsao 等人在猕猴颞叶鉴定出六个功能特化的"面孔补丁"(face patches),人与猴的面孔加工系统结构相似。也就是说,"哪里"加工面孔已有相当清楚的图景。
当时的缺口在于"何时"与"怎么编码":行为层面早已知道快速分类(这只鸟/这是张脸)明显快于个体识别(这是哪只鸟/是谁的脸),比如基本类别分类比类别内识别约快 65 ms(Grill-Spector 与 Kanwisher 2005),但协调这种分级加工的神经机制并不清楚。作者点出的核心问题是:如果 IT 神经元在不同时间段的放电携带不同尺度的信息——早期瞬态携带粗粒度的类别信息、后段携带精细的身份/表情信息——那么"识别的时间动态"就有了直接的神经对应物;而当时关于 IT 反应时间结构(Optican 与 Richmond 的信息论分析、Tovee 等 1993 年"刺激后 100–200 ms 携带最大信息"的发现)还停留在"时间模式重要"的层面,缺少与行为分阶段的系统对应。
研究思路
作者的策略是"以自家数据为锚,向外辐射对照"。具体说,先把 Sugase 等(1999)与 Matsumoto 等(2005b)在猕猴前部 IT 的记录结果作为核心事实——用滑动时间窗计算信息传递率,展示全局与细节别信息在时间上的先后分离——再问这个"时间分阶段"模式是不是视觉通路的普遍性质:于是依次引 V2/V4(光栅与轮廓刺激)、后部 IT(形状部件与构型)、前部 IT(自然物体照片)中同类"早期粗、晚期细"的发现。第三步是找因果与行为对应:Afraz 等(2006)的电刺激实验把早期反应跟面孔知觉"是否为脸"绑定起来,Tsao/Freiwald 在各面孔补丁的时间动态则把"身份"信息定位到更后段;最后用人类 MEG/ERP/颅内 EEG/快速行为实验的毫秒级时间轴,与猴子 IT 的时间轴逐点比对。这样把回头式综述写成了一条"时间轴上的证据链",逻辑上从编码到机制到行为逐层收紧。
值得注意的是,作者并没有回避竞争假说——Hung 等(2005)用支持向量机在反应最初 12.5 ms 窗口就能从 IT 群体活动读出物体类别与身份,支持"纯前馈、晚期冗余"的观点。作者的处理方式是指出该研究未针对面孔反应神经元、未报告精细身份/表情信息的时间进程,把分歧保留为"待检验",这种写法让综述的结论不至于过度断言。
方法
作为综述,本文的方法要点来自其被引的核心实验(主要是作者自己的)。被试为猕猴,在注视任务下记录前部 IT 脑回与前上颞沟(sts)的单细胞活动(记录位置见其图 1A);视觉刺激包括几何形状、猴脸与人脸(含多种表情),改为“刺激呈现时段由图1B的虚线标出;按图示约持续至刺激后500 ms”,或删除未经正文明确说明的具体时长。分析上使用 50 ms 滑动分析窗,对每个神经元分别计算"全局类别"(人 vs. 猴 vs. 形状)和"细节别"(猴表情、猴身份、人表情、人身份)的信息传输率(information transmission rate, Ic),非显著信息段被剔除;群体层面把各刺激下的群体活动向量做主成分分析(PCA),投影到二维空间观察类别是否分离、何时分离。文中还提到他们此后用包含兴奋性与抑制性神经元的吸引子网络模型(Matsumoto 等 2005a)检验"IT 区内递归连接是否足以产生晚期反应"。
对照文献的方法细节以行文方式给出:各面孔补丁的界定靠 fMRI 面孔选择性(色标为 P 值负对数),视角不变身份选择性用 200 ms 滑动反应窗计算并做打乱(shuffle)对照;人类研究则涵盖 MEG(M100/M170)、ERP(N170)、颅内/皮层脑电(face-N200、P290、N700)与 fMRI 空间频率操纵(75/150/300 ms 呈现时长下的低/高频成分对比)等。
主要结果
- IT 神经元反应分两个信息阶段:初始瞬态反应表征全局类别(人脸 vs. 猴脸 vs. 简单形状),反应后段表征细节别(表情和/或身份),且后段刺激选择性更锐。以 50 ms 滑窗的中点计时,全局信息潜伏期约 91 ms、峰值约 152 ms,细节别信息潜伏期约 142 ms、峰值约 179 ms(均自刺激起始)(图 1B)。
- 群体层面先后可分:45 个面孔反应神经元的活动向量在 [90, 140] ms 窗口内红(人)蓝(猴)绿(形状)分群最开,而猴表情与人身份的分离在 [140, 190] ms 窗口才最大化(图 1C),支持"群体水平的全局分类先于精细分类"。
- "早粗晚细"是腹侧通路各阶段的共同模式:V2 在 40–80 ms、V4 在 80–100 ms 就能分光栅与轮廓两大组,个体刺激的区分在初始段之后(Hegde 与 Van Essen);后部 IT 中单个轮廓片段信息在 122 ms 即达 90% 峰值,多部件构型信息则在 184 ms(Brincat 与 Connor 2006);前部 IT 对自然物体的选择性在 240 ms 之后比 130 ms 时更锐(Tamura 与 Tanaka)。
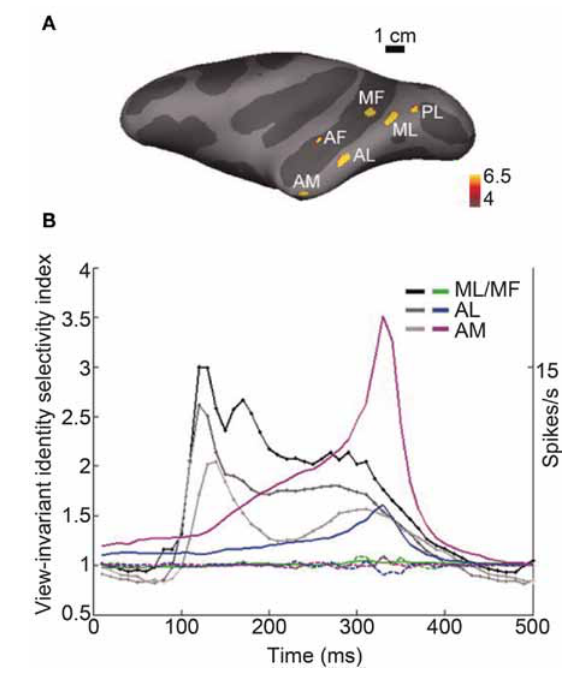
- 面孔补丁系统的时间层级:在上颞沟内的 ML/MF(中间面孔补丁),神经元编码类别(脸/身体/水果等)的时间(133 ms)早于编码个体身份的时间(192 ms)(Tsao 等 2006);而位于前部 IT 脑回的 AM 补丁中,跨视角不变的面孔身份信息逐渐出现、约在刺激后 300 ms 达峰——比该补丁平均反应峰明显更晚(Freiwald 与 Tsao 2010)(图 2B)。
- 神经时间轴与行为/人类时间轴吻合:早期反应有因果证据——刺激后 [50, 100] ms 在面孔选择性位点做微刺激会使猴子把判断偏向"脸"(Afraz 等 2006);行为上人脸检测比视角判断、身份判断分别早 24 与 31 ms(Or 与 Wilson 2010);人类 MEG 中 M100(平均峰 105 ms,范围 84.5–130.5 ms)对应面孔检测/分类、M170(约 160 ms)兼含个体辨认,两者峰值与猴 IT 全局(152±57 ms)、细(179±49 ms)信息峰值基本重叠;fMRI 显示 FFA 先加工低空间频率的粗结构(75 ms 呈现时低频反应更强)、150–300 ms 后转向高频细节(Goffaux 等 2010);颅内记录中 face-N200 不受语义启动与注意影响,而 P290/N700 等晚成分随认知需求变化(Puce 等 1999;Engell 与 McCarthy 2010)。
图注解读
图 1 · IT 皮层两类面孔信息的时程分离
原文图注:Figure 1 | Time course of two different scales of facial information in the IT cortex. (A) Areas of brain examined in Sugase et al. (1999) (yellow). AP0 represents the position of the external auditory meatus; A14, A19, A22, and A24 represent anterior 14, 19, 22, and 24 mm, respectively. amts, anterior middle temporal sulcus; sts, superior temporal sulcus. (B) Information transmission rate (Ic) of face-responsive neurons. Summation of Ic curves for global (red, human faces vs. monkey faces vs. shapes) and fine categories (black; monkey facial expression, monkey identity, human facial expression, or human identity) from 32 neurons aligned at the stimulus onset. Ic was calculated over a 50-ms sliding analysis window, and plotted at the middle of the time window. Non-significant information was excluded from the analysis. The 32 neurons represent information about both global and fine categories. In the time axis (abscissa), the time of stimulus onset is 0 ms and the duration of stimulus presentation is indicated as a dashed line. (C) Population activity vectors in two-dimensional space rearranged using PCA in the [90, 140] and [140, 190]-ms windows. The horizontal axis represents the first principal component, while the vertical axis represents the second principal component. The points indicate the population activity vectors of 45 face-responsive neurons for the individual stimuli. The colors of the points represent the global category: the vectors for human faces, monkey faces, and shapes are shown in red, blue, and green, respectively. The red, blue, and green ellipses indicate the distributions of the population activity vectors for the fine categories human identity, monkey expression, and shape-form, respectively.
这张图分三联:(A) 是猕猴颞叶腹侧的解剖定位图,黄色区域标出 1999 年记录的位置(A14–A24 指外耳道前 14–24 mm,amts 为前中颞沟,sts 为上颞沟);(B) 是本文的"主证据图"——横轴为刺激起始后的时间(0 ms 为放刺激时刻,虚线标刺激持续),纵轴为信息传输率 Ic,红线是 32 个神经元汇总的全局类别信息曲线,黑线是细节别(猴表情、猴身份、人表情、人身份)信息曲线;读到曲线上就是红线整体左移——先起跳、先达峰,黑线滞后约 50–60 ms,这正是结果 1 的直观形式;(C) 把 45 个神经元的群体活动向量经 PCA 投到二维平面(横轴第一主成分、纵轴第二主成分),[90, 140] ms 窗口里同色点聚成一团、不同色彼此分离,而 [140, 190] ms 窗口里各色椭圆(人身份、猴表情、形状构型等细节别分布)才相互错开,对应结果 2 的群体层面先后分离。注意 (C) 用的是 45 个神经元、(B) 用的是 32 个(同时携带两类信息的神经元),数字不同是有意筛选的结果。
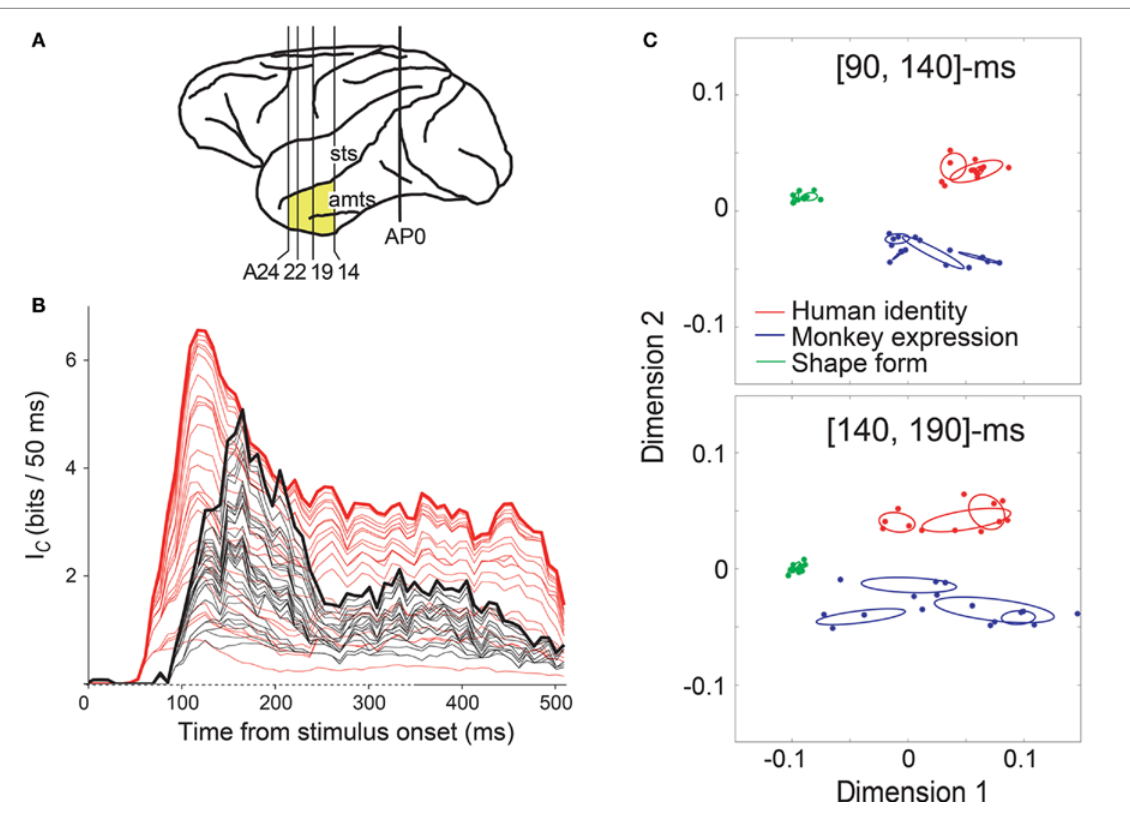
图 2 · 面孔补丁中视角不变身份信息的晚出现
原文图注:Figure 2 | Time course of information about facial identity across different facial views in face patches. (A) Face selectivity in different parts of the macaque temporal lobe. Inflated macaque left hemisphere (dark gray areas mark sulci, light gray–dark gray boundaries mark the middle of the bank within a sulcus) showing six regions, i.e., face patches, in the temporal lobe that responded significantly more to faces than to objects in fMRI experiments. Color scale indicates negative common logarithm of the P value. The six patches are indicated as PL, posterior lateral; ML, middle lateral; MF, middle fundus; AF, anterior fundus; AL, anterior lateral; and AM, anterior medial patch. (B) Emergence of view-invariant identity-selectivity over time. View-invariant identity-selectivity index, computed over a 200-ms sliding response window beginning at the indicated time point, plotted for AM, AL, and ML/MF (solid curves in magenta, blue, and green, respectively). The dotted curves show the mean view-invariant identity-selectivity index over time computed after the relationships between the face view and the face identity are shuffled. The grayscale traces show the time course of the mean response across the population in each face patch. There is the substantial delay between the peak of the mean response to the stimuli and the peak of the view-invariant identity-selectivity index. Figures adapted from Freiwald and Tsao (2010) with permission.)
(A) 是充气展开的猕猴左侧半球皮层,六个深灰斑块即 fMRI 发现的面孔选择性区域,按前后位置从 PL(后外)经 ML/MF(中段)、AF/AL(前段)到 AM(前内)排列,色标为 P 值的负对数,即颜色越亮选择性越显著。(B) 是本文引 Freiwald 与 Tsao(2010)的关键时间动态图:品红(AM)、蓝(AL)、绿(ML/MF)实线为视角不变身份选择性指数(用 200 ms 滑动窗、从图上标注的时间点起算),灰色迹线为各补丁群体平均反应的时程,虚线是把"视角-身份"关系打乱后的零对照。读图要点有二:一是实线明显高于打乱后的虚线才说明有真实的身份信息;二是灰线(反应强度峰)与彩线(身份指数峰)之间存在明显的时间差——反应先冲高、可读出的"这是谁"要再等一段时间才逐渐出现,AM 最后到达约 300 ms 的高位。这张图支撑结果 4:视角不变的身份计算需要额外加工时间,与"检测快、认人慢"的行为时间结构相呼应。
讨论
作者把"早粗晚细"的机制归为三种可能:其一,初始瞬态经大细胞通路(magnocellular pathway)传递无色/低高频信息、后段经小细胞通路(parvocellular pathway)传递彩色/高频细节——但他们引 Edwards 等(2003)指出彩色图像在 IT 面孔神经元反应的最早段反而诱发更大反应,故此解释"未必成立",只保留为开放问题(文中承认 magno/parvo 与粗细信息的对应关系在单细胞层面尚未解决);其二,先表征各面部部件、再整合为多部件构型(后部 IT 的 122/184 ms 数据支持此序);其三,从全局到局部的多尺度加工——Navon 图(大"N"由小"H"组成)实验中全局形式在初始反应即被表征、局部形式晚约 30 ms,行为上全局辨别也比局部辨别早 20–30 ms。细胞机制上,作者揣测细节别信号或来自区内递归连接(其吸引子模型能复现反应的时间动态)或杏仁核的反馈投射,并指出眶额-颞区的自上而下促进(Kveraga 等 2007)也与此相容。对手观点"纯前馈假说"(Hung 等 2005 在 125 ms 起的 12.5 ms 窗口即可读出分类与识别信息)被如实引述,作者以"该研究未聚焦面孔神经元"保留分歧。
局限方面作者说得比较直白:晚期反应与面孔识别(尤其身份辨认)之间的因果关系仍待证明——Afraz 的微刺激只证明了早期反应对"是否为脸"的因果作用;人类晚成分(M400/300–500 ms 负波/P290/N700)与猴细类别信息、还是与 Freiwald-Tsao 的视角不变身份信号对应,作者认为"尚不清楚",并明确提出未来应在非人灵长类单细胞层面检验面孔熟悉度的作用、以及"时间分阶段"是否为面孔特异还是视觉系统的一般性质。
一句话总结
依我看,这篇综述真正的贡献是把"识别是个分阶段过程"从行为学口号变成了有毫秒数字的神经时间表:IT 皮层先用约 90–150 ms 回答"是不是脸",再用之后的慢段时间回答"是谁、什么表情",而且从 V2 到 AM 补丁这条"晚一步"模式层层递进。不过文中晚期反应的因果证据确实还没有(作者自己也承认),所以"两阶段编码"目前更强地是一个描述性规律而非机制证明;我倾向于把它理解为"读出时间窗"问题——早期读全局够用,晚期读细节才够用,这未必意味着早期与后段在功能上互不相干。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[A, B] - Fig2: 提取质量
good,对齐度full,识别面板[A, B]
关键事实与局限性声明
- 审校纠偏: {'current_text': '神经时间轴与行为/人类时间轴吻合', 'classification': 'OVERCLAIM', 'reason': '只能支持跨研究的时间重叠和相关性,不能支持精确同源或因果对应。'} -> 评注:
- 审校纠偏: {'current_text': '“早粗晚细”是腹侧通路各阶段的共同模式', 'classification': 'INTERPRETATION', 'reason': '这是异质研究的综合趋势,尚非统一实验验证的普遍规律。'} -> 评注:
- 审校纠偏: {'current_text': '视角不变的身份计算需要额外加工时间', 'classification': 'INTERPRETATION', 'reason': '晚出现是事实,额外计算过程是作者推论。'} -> 评注:
- 补充要点: : (第 3 页)
- 补充要点: : (第 5 页)
- 补充要点: : (第 5 页)
- 补充要点: : (第 5 页)