IT Literature Intelligence 终审版本 (VERIFIED) 论文编号:
149| 原始基线:V0_ZCODE_BASELINE| 语义审核:needs_revision| 图表审核:pass
Tuning and spontaneous spike time synchrony share a common structure in macaque inferior temporal cortex
Lin · Journal of Neurophysiology · 2014 · Zotero itemID=1467
这篇论文用 64 通道电极阵列同时记录猕猴颞下皮层(inferior temporal cortex, IT)的神经元群体,回答一个很"电生理"的问题:没有视觉刺激时,哪些神经元之间会同步放电,这跟它们对物体的调谐(tuning,即刺激偏好)有多相似是不是一回事。作者发现调谐相似性与自发放电同步性共享同一套空间结构,而且这套结构跨刺激集稳定,只凭几个维度就能让线性分类器泛化到没见过的物体——把"局部相关结构如何服务于物体编码"这条推理链补齐了。
研究背景
要理解视觉物体识别的算法,就必须弄清单个神经元的活动如何联结成群体活动,这在腹侧视觉皮层尤其如此。此前的研究以两两配对的方式考察过 IT 神经元的调谐相关性(两神经元刺激偏好有多相似)与尖峰时间相关性,因为相关结构被认为会影响群体编码的冗余度与表征容量;而窄时间窗内的尖峰同步(spike time synchrony)又被假定能让下游神经元做重合检测(coincidence detection)、并借由尖峰时序依赖可塑性(spike timing-dependent plasticity, STDP)支持学习。问题在于"调谐与同步是否挂钩"此前结论互相矛盾:Tamura 等报告调谐相似的神经元也同步,Aggelopoulos、Gawne 与 Richmond、Gochin 等却没有发现关联。
作者提出一种可能的调和方案:调谐与同步可能共享一种功能结构——大多数邻近神经元在两个维度上都只是弱相关,但有一小撮神经元调谐更相似、同步也更强。当时已知 IT 存在特征柱(feature column):同一穿刺道上的神经元偏好相似但略有差异的特征(Fujita、Sato、Tanaka 等的工作)。真正的缺口有三个:这种关联的空间结构由什么决定(皮层距离还是调谐相似性)?它跨刺激(包括动/非动物类别)是否稳定?以及这种结构对物体编码到底有什么用——此前已知同步强度随刺激与情境动态变化,这暗示一致性可能很差,从而限制泛化。
研究思路
作者把问题拆成三段递进的检验。第一步,用 64 位点阵列同时覆盖柱内(垂直)与跨柱(水平)方向最多 1.4 mm 的皮层,把"位点间调谐相关"和"自发放电同步强度"这两个空间模式直接放在一起比;为了剔除"距离近所以同步强"的解释,专门构造了一个广义线性模型(general linear model, GLM),把调谐相关与皮层距离同时作为因子并做细胞级交叉验证。第二步,在配对分析之上上升到"中间抽象层次"——作者引用了一个比喻:理解飞行需要空气动力学而不只是羽毛——对 64 个位点的调谐响应做 k 均值聚类(k-means clustering),用杰卡德系数(Jaccard index)量化聚类模式跨刺激集、跨动物/非动物类别的稳定性,再检验同步连线是否落在同一聚类之内。第三步,用线性分类器检验这套结构的编码能力:按聚类平均的响应能否用很少的维度把没见过的物体读出类别,并与随机分组、穿刺道平均、深度平均等替代结构对比。整条逻辑链的巧妙处在于"自发放电"这个设计:在没有刺激时测得的同步,无法用视觉诱发响应的共同波动来解释,若它仍与调谐结构对齐,说明这是皮层的内生骨架。
方法
实验动物为四只成年台湾猕猴(Macaca cyclopis),在轻度神经安定麻醉(fentanyl 静脉输注、70%:30% N2O/O2、droperidol、0.3–0.5% isoflurane)加肌肉松弛(rocuronium)下进行记录,以消除眼动相关同步的干扰。在右前 IT(AIT,AP16)外侧面平坦区(距上颞沟至少 3 mm)插入 8×8、64 位点阵列(NeuroNexus,位点间距 0.2 mm,总跨度 1.4 mm),四次猴共五次插入(5 个 array/记录session),共记录 250 位点、359 个神经元。刺激分两套:集合 1 为 240 个灰阶渲染三维物体(动物 19、面孔 16、植物 18、食物 14、工具 14、车辆 13、电器 13、家具 21 等 8 类),集合 2 为 113 张彩色/灰阶/剪影实物照片,以 94 ms 显示、106 ms 空屏的 5 Hz 伪随机序列各呈现 10 遍,注视点处 0.2° 窗口内逐帧抖动以弥补缺乏微扫视。分析上,调谐取刺激后 [100:200] ms 的基线校正、跨刺激 z 标准化的平均多单元活动(multiunit activity, MUA,单单元结果类似);自发放电同步用白屏下连续 10 分钟的自发活动,对每侧最活跃单单元(SUA)做互相关直方图(cross-correlogram),以 25 ms 尖峰抖动(spike jitter)校正构造零分布,在 ±5.5 ms 重合窗内取显著性(分两段各超阈,等效 P = 0.0025,约每阵列仅 5 个假阳性),同步强度定义为扣除抖动预测器中位数后的峰高。结构层面用 k 均值对 64 位点 × 240 刺激的调谐矩阵聚类(BIC 选择 k),跨集合一致性用 J(0–1 的匹配位点比例)并配合穿刺道内垂直打乱、全阵列打乱等对照;编码层面用线性支持向量机(SVM)做 8 类二分类读出,每轮 64 训练/40 测试物体、共 20 轮,测试集物体不参与聚类,避免循环分析。
主要结果
- IT 反应强而可靠:各位点奇偶试次的调谐相关性很高(每阵列最优位点 r = 0.80–0.96,全体位点两集合平均 r = 0.57,显著性阈约 r = 0.16),反应潜伏期多为 100–120 ms,每阵列最活跃五个位点对偏好刺激的平均反应达 45–124 spikes/s;调谐宽度(稀疏度 sparseness)在阵列间差异明显,阵列 4、5 更窄(图 2)。
- 显著同步很少见,但一出现就与调谐相似性定量挂钩:阵列 1–3 共检验 6340 个位点对,仅 391 对(6%)有显著自发同步;这些显著对的调谐相关与同步强度相关达 r_sig = 0.62、0.47、0.33(阵列 1–3,P = 0.0015 至 <0.001),而全体对的关联弱得多(r_all = 0.27–0.47)——这正好解释了此前阴性结果(图 3、图 4)。
- 不是距离的功劳:GLM 中调谐相关单独解释同步强度方差的 7–18%(显著对内为 7.6–38.1%),而各种皮层距离(对角/水平/垂直)单因子最多解释 0.8–2.3%,在联合模型和显著对分析中均不显著——在 1.4 mm 尺度上,同步跟着"调谐的细微差异"走而不是跟着拓扑地图走(表 1、表 2;图 4D–E 显示强相关成组出现、组间交叉点反而弱)。
- 结构跨刺激、跨语义类别高度一致,且是形状性的:位点聚类模式跨两个刺激集的 Jaccard 系数最高达 0.80–0.82(阵列 1–3),跨动物/非动物类别也有 0.6–0.7 上下,垂直与全阵列打乱对照下大多 P ≤ 0.001,且一致性维持到 k = 8;各聚类的偏好并非按语义类别分化(与 Kiani 等 2007 相左,与 Baldassi 等 2013 相合)(图 5)。同时,显著同步对落入同一调谐聚类的概率在 k = 8 时平均约 50%,远超 12.5% 的机会水平,且垂直/水平打乱都解释不了;不同步对则停在机会水平(图 6)。
- 极少维度即可泛化读出:按 k 均值聚类平均后送入线性分类器,每阵列仅 2 个聚类(全场 10 维输入)就达到 40% 正确率(8 类机会 12.5%),几乎追平用全部 250 位点不聚类的 43%;同等 k 下随机聚类、穿刺道平均、深度平均只有 27–31%;每阵列仅取 4 个与聚类平均调谐最相似的单点("合唱队员")即可达 42.4% 的平台,而相关性居中的"独唱者"位点表现差得多(图 7)。
图注解读
图 1 · 阵列记录与刺激布置
原文图注:Fig. 1. Array recording of inferior temporal (IT) object responses. A, top: rasters show examples of reliable object-selective spiking responses at 16 sites of the 8 × 8 electrode array (right). Objects were serially presented (94 ms ON, 106 ms OFF with blank screen) in pseudorandom order for 10 repetitions. Two stimulus sets (set 1: 240 rendered grayscale objects, set 2: 113 color, gray, and silhouette photographed objects) were presented as separate blocks. The 10° bar next to the right-most image shows the relative size of the stimuli. B: we inserted arrays in the right anterior IT cortex (AIT, AP16), in a flat region of the lateral surface at least 3 mm from the superior temporal sulcus (sts).
这是一张方法总览图。A 部分用栅格图(raster)展示 8×8 阵列中 16 个位点对物体序列的放电:每行是一个刺激试次的尖峰,黑色条带标记 94 ms 的刺激显示期,可见响应集中且随刺激变化;右侧给出阵列示意与 10° 标尺,说明刺激相对大小。B 部分是解剖定位:阵列插在右侧前 IT 外侧面的平坦区,避开上颞沟(sts),同时标注了前中颞沟(amts)与外侧沟(ls)。这张图确立的是后文所有分析的物理前提——64 个位点同时覆盖垂直深度与水平距离,且记录对象确实是物体敏感的 IT 皮层,对应方法部分的布置描述。
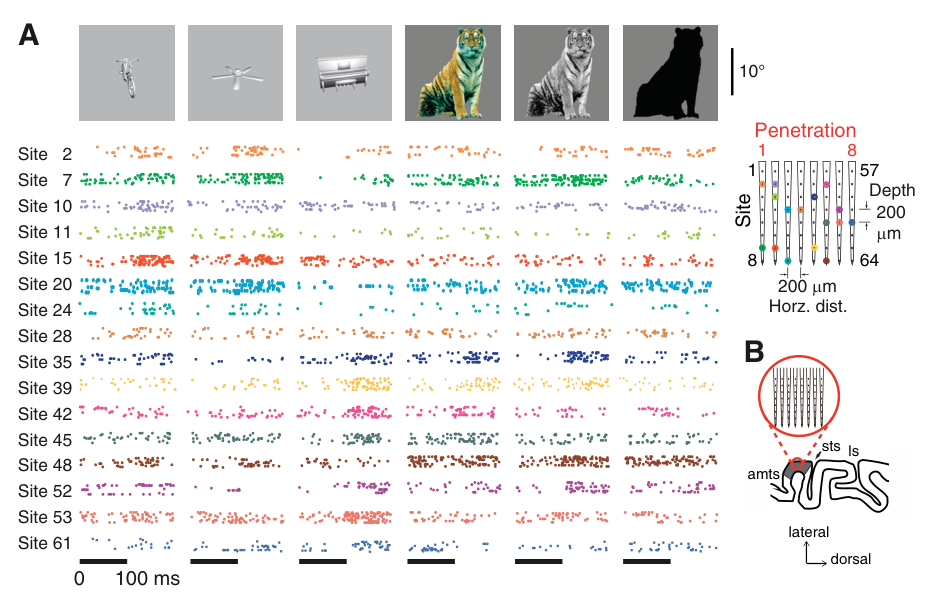
图 2 · 调谐可靠性与调谐宽度
原文图注:Fig. 2. Tuning reliability and tuning widths across 5 arrays. Response statistics across 5 array locations (5 recording sessions) in 4 monkeys are shown. A: tuning correlation between even and odd trials for all sites in each array, based on both stimulus sets. Tuning is based on evoked (baseline-subtracted) trial-averaged spiking activity measured in the [100:200) ms period, z-normalized for each site across stimuli. B: distribution of sparseness (tuning width) across arrays and stimulus sets. Sites in arrays 4 and 5 were more sparse (more narrowly tuned). C: comparison of sparseness across the two stimulus sets for all 250 sites, r = 0.72, P < 10^-39, color-coded by array.
A 的五个 64×64 矩阵分别对应五个阵列,每个像素是一个位点的奇偶试次调谐相关(对角线为自身为 1),黑色为失效通道;几乎所有活性位点的相关都超过约 0.16 的虚线阈值,说明物体调谐不是噪声。B 把各阵列位点的稀疏度(调谐宽度)画成分布:阵列 4、5 的位点调谐更窄,作者引用 Zoccolan 等的观点指出高稀疏伴随更差的容忍度,可解释它们后续一致性偏弱。C 是全部 250 位点在两套刺激集间稀疏度的相关(r = 0.72),说明调谐宽度本身也是稳定属性。这张图支撑主要结果第 1 条,也为阵列 4、5 被排除出同步分析埋下伏笔。
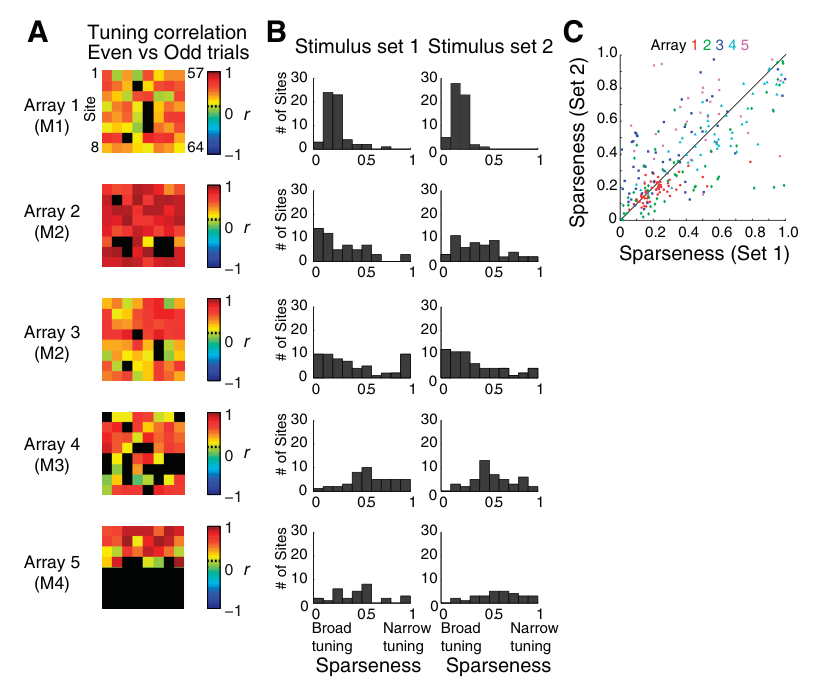
图 3 · 一对 IT 神经元之间的重合放电
原文图注:Fig. 3. Coincident spiking between a pair of IT neurons. A and B: interspike interval histograms for two units recorded from deep and superficial layers, respectively (1.6 and 0.6 mm from cortical surface; 1-ms bins). Both units were well-isolated, with ≤5% of interspike intervals in the 2.5-ms refractory period. C: cross-correlogram histogram ("Raw", blue) based on cells A and B, showing spike time intervals between the two spike trains (abscissa) and each interval's percentage of all spike pairs (ordinate). Trains were a continuous (10 min) block of spontaneous activity (no stimuli). We defined coincident firing (synchrony) as a significant peak near 0 ms.
这张图示范"同步"到底是什么。A、B 是两个分属深层(距皮层表面 1.6 mm)与浅层(0.6 mm)单元的峰间期直方图:2.5 ms 不应期内尖峰占比 ≤5%,说明分选干净、不是同一个神经元被重复检出;右侧小插图给出波形示例。C 是核心:横轴为两列尖峰的时间差(-150 到 +150 ms),纵轴为该间隔尖峰对占总数的百分比,蓝色原始直方图在 0 ms 附近隆起——若任何一处的峰超过由 220 次抖动随机化定出的显著性红线(±5.5 ms 窗、25 ms 抖动窗、经两段检验共 P = 0.0025),该对即判为"同步";同步强度取原始曲线减去抖动预测器中位数后的 0 ms 附近峰高。它支撑主要结果第 2 条的方法基础:同步是在完全没有刺激的 10 分钟自发活动中定义的。
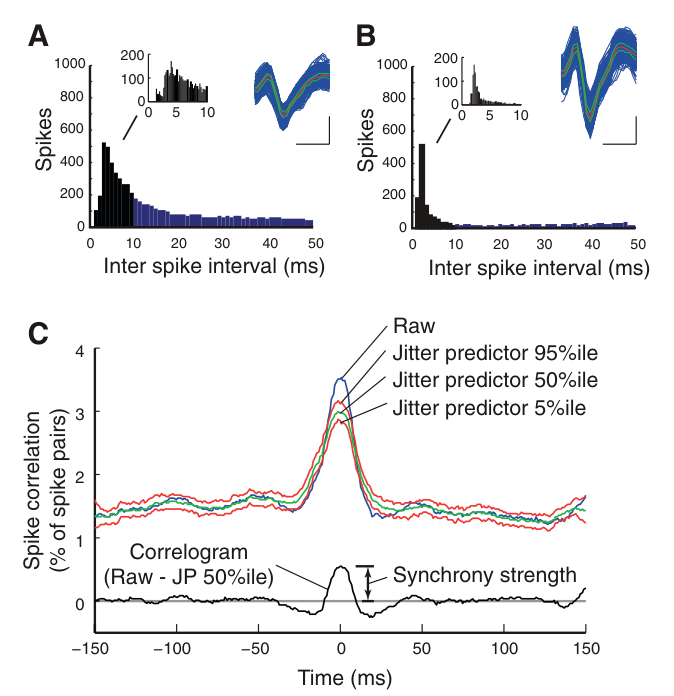
图 4 · 调谐相关与同步强度的定量联结
原文图注:Fig. 4. Quantitative link between site-to-site tuning correlations and spontaneous synchrony strength. A–C: tuning correlation vs. synchrony strength among all pairs of sites in arrays 1–3. Pairs with significant synchrony (red dots, black marginals) are rare (6% of all pairs) and show quantitative link (r_sig, Pearson r) between tuning similarity and synchrony strength. D: site-to-site tuning correlations for array 1, set 1. Stronger correlations (orange and yellow, r ≥ 0.3) were rare, even for sites along the same penetration (green boxes), and appeared to belong loosely to groups of sites (marked by circles, triangles, and squares). E: site-to-site synchrony strengths, marked as in D.
A–C 是本文最核心的散点图:横轴为位点对的调谐相关(-1 到 1),纵轴为同步强度(对数刻度,占尖峰对的百分比),红点为显著同步对。三个阵列的显著对中 r_sig 分别为 0.62、0.47、0.33——调谐越相似,自发同步越强;而把灰色弱同步对一并计入时 r_all 降到 0.27–0.47,边缘分布(黑/白边际直方图)显示大多数位点对调谐弱相关、同步也弱。D、E 把同一阵列 1 的 64×64 调谐相关矩阵(D)与同步强度矩阵(E)并排放:沿对角线的绿色框是同一穿刺道内的位点对,其中 80% 调谐相关低于 0.3,只有 8% 超过 0.5;用圆圈、三角、方块目测标出的"强相关位点群"在 D 和 E 里位置对应,而群与群的交叉点(箭头处)调谐与同步都弱。这组图支撑主要结果第 2、3 条,并首次暗示"成组"的空间结构。
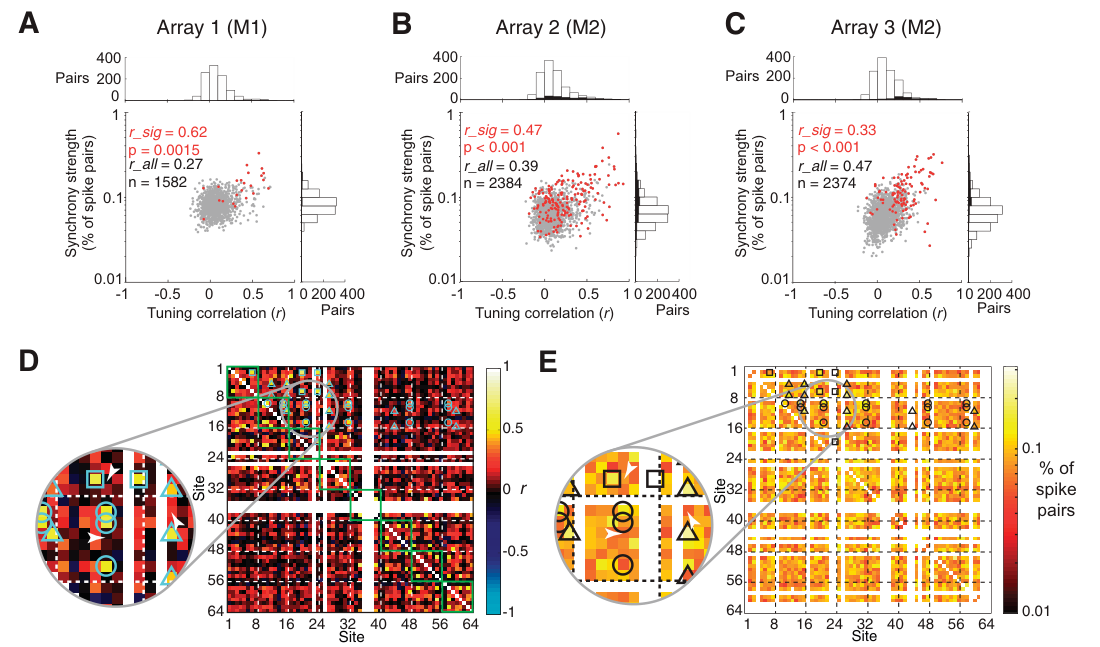
图 5 · 聚类模式跨刺激集与跨语义类别的一致性
原文图注:Fig. 5. Consistency of site clustering patterns across stimuli. A: consistency of clustering patterns across stimulus sets, shown for k = 2 to 5 clusters based on Bayesian information criterion (BIC) of each array. Colors indicate sites belonging to different clusters. Black indicates broken or inactive sites. Jaccard coefficient (J) indicates proportion of sites whose cluster label were unchanged ("matched") when reanalyzed with the other stimulus set. Match significance was determined by vertical within-penetration shuffling (pv) and by full array shuffling (pf) of cluster labels, based on 1,000 shuffles (**P ≤ 0.001). B: clustering consistency between animate (left) vs. inanimate (right) categories. C: dependence of J on k. D and E: clustering consistency at k = 8.
A、B 各列画出按 BIC 选出的 k 下,用两套刺激集(A)或动物/非动物刺激(B)分别聚类得到的阵列"彩色地图":每个小格是一个位点,同色即同聚类,旁边标注换用另一套刺激重跑后的 J 值与打乱检验的显著性。阵列 1–3 的 J 普遍在 0.6–0.82,且 pv、pf 大多为双星号(P ≤ 0.001);阵列 4、5 因通道损坏与调谐过窄而较弱,个别对照不显著。C 把 J 画成 k 的函数,红蓝虚线为两种打乱的 0.05 显著阈,三角形标记 BIC 选出的最优 k,可见显著一致性覆盖 k = 2–8 的宽范围;D、E 进一步展示 k = 8 时依然成立。这张图支撑主要结果第 4 条前半:同一批位点的"分组身份"不随刺激集更换而变,也不随动/非动物语义类别而变——而且聚类偏好本身不是按语义范畴组织的。
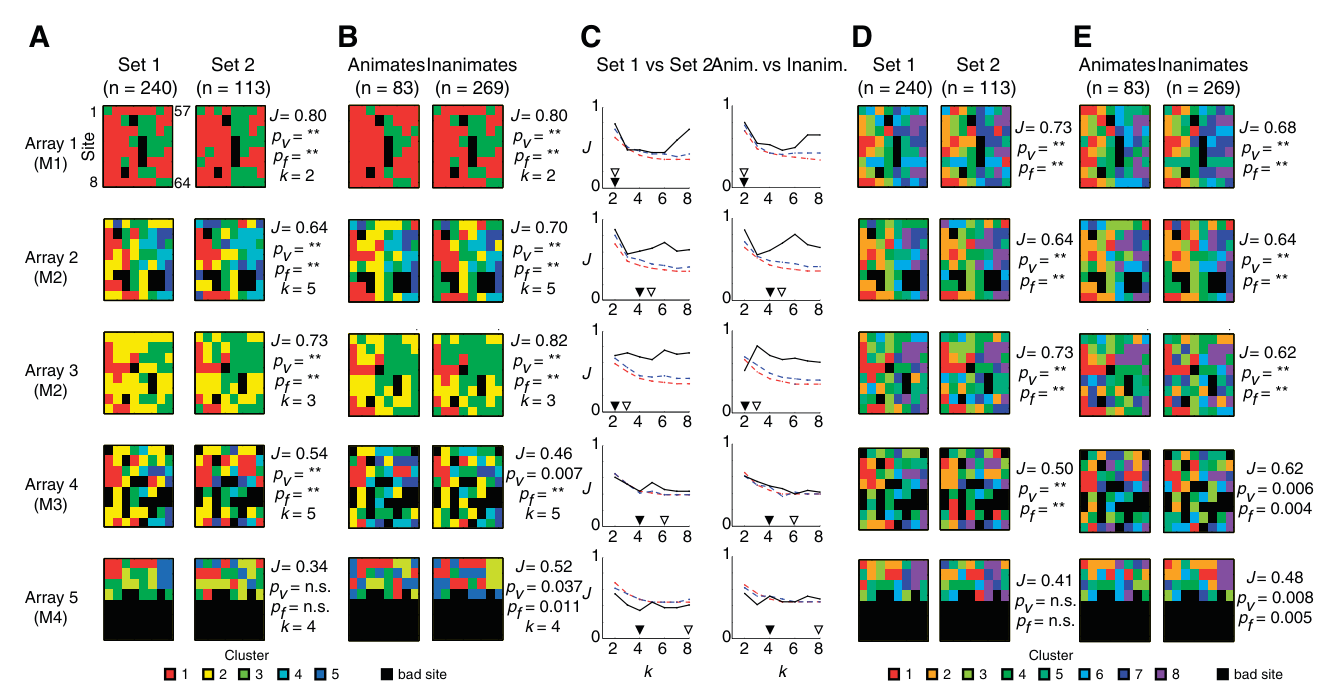
图 6 · 同步连线与调谐聚类的空间特异性
原文图注:Fig. 6. Spatial specificity of match between spike synchrony and tuning. A: example overlays of spontaneous spike synchrony and tuning-based clusters. Lines indicate examples of pairs with significant spike synchrony ("functionally connected") during spontaneous activity. White and black lines show synchrony within each of two k-means clusters in the same cortical column. Blue dashed line between sites 7 and 16, array 2, shows example of synchrony across different clusters ("unmatched"). B: method of comparing spontaneous synchrony vs. clustering. We grouped pairs into four types "a" to "d" depending on synchrony significance (synchronized vs. asynchronized) and whether both sites in a pair had the same cluster ID (matched vs. unmatched). C: clustering match probability for actual data, vertical, and horizontal within-depth shuffling, with k = 8 clusters. *P ≤ 0.001 for group and all individual comparisons. D: dependence of clustering match probability on number of clusters k.
A 把抽象的统计落到地图上:在阵列的聚类着色图上叠加同步连线,黑线连接红色聚类内部、白线连接橙色聚类内部的显著同步对,而蓝色虚线给出一个跨聚类的反例(位点 7–16,"unmatched")。值得注意的是同一穿刺道内部不同同步组彼此交错(interdigitated),呼应 GLM 里距离不显著的结论。B 定义匹配概率:把位点对按"同步与否 × 同聚类与否"分成 a–d 四类,同步对的匹配概率为 b/(a+b),不同步对的为 d/(c+d)。C 是 k = 8 时的柱状比较:真实数据中同步对匹配概率平均约 50%,机会水平 12.5%,而垂直、水平打乱都到不了真实值(组与逐项比较均 P ≤ 0.001);不同步对的匹配概率停在机会水平。D 显示这一联结在 k = 2–8 全程成立。这张图支撑主要结果第 4 条后半:同步不只是"和调谐相关有关",而是精确地落在调谐定义的空间群组之内。
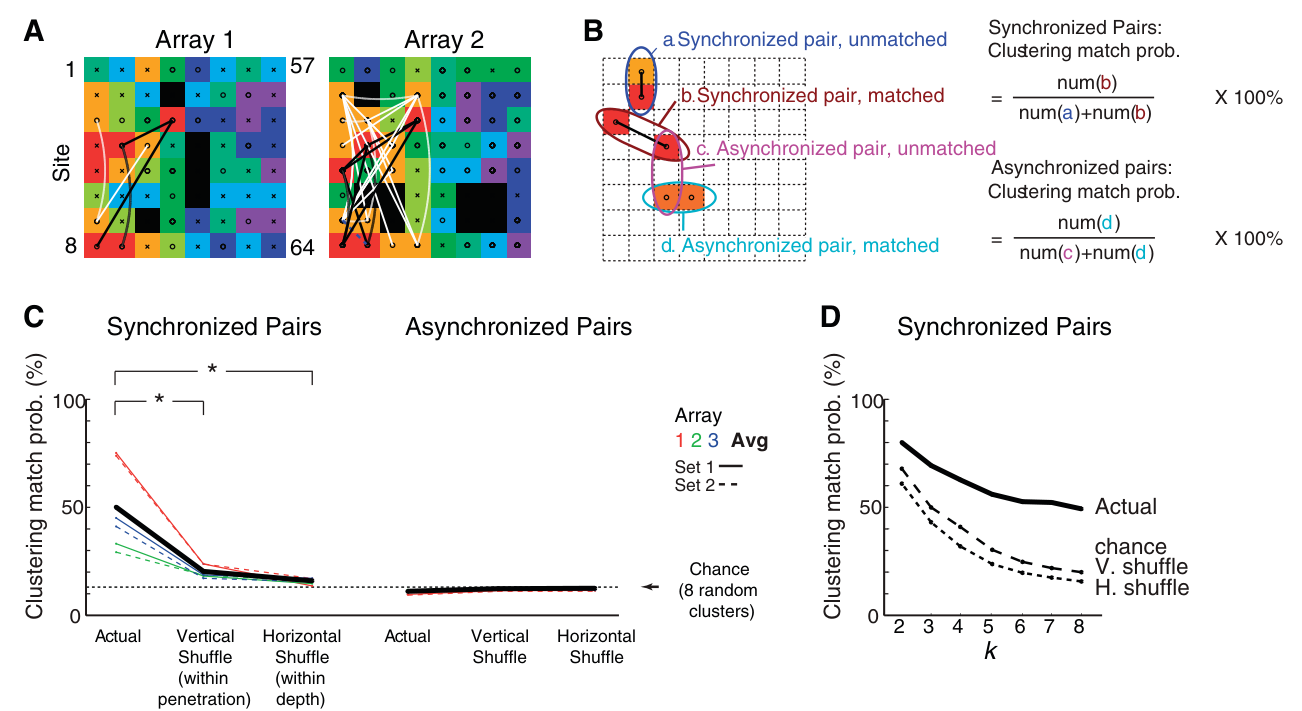
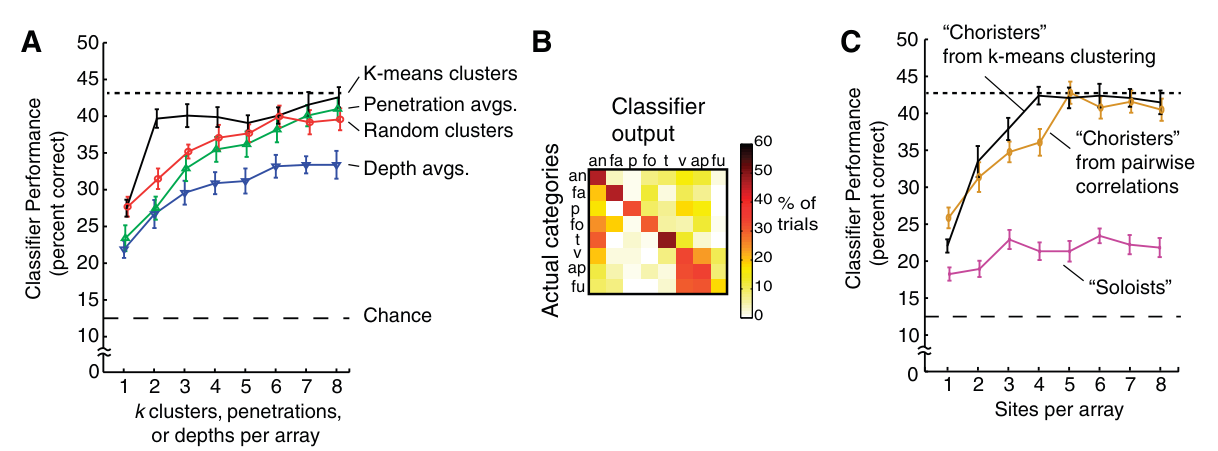
图 7 · 少数维度即可泛化读出类别
原文图注:Fig. 7. Category generalization performance vs. clustering method. A: classifier performance vs. number of clusters for different site clustering methods. Tuning responses were grouped as k-means clusters (black), random clusters (red), within-penetration averages (green), and within-depth averages (blue). Input to the classifier was based on the average response within each cluster. K-means clusters were based on 200 objects in set 1, excluding the test objects in that run. Dotted line indicates performance of classifier trained, tested on all 250 sites without clustering. Dashed line is chance (12.5%). B: confusion matrix showing pattern of mistakes made by the classifier for k = 2 k-means clusters per array. Categories include animals (an), faces (fa), plants (p), foods (fo), tools (t), vehicles (v), appliances (ap), and furniture (fu). C: performance of "choristers" vs. "soloists." "Choristers" are sites whose tuning is most similar to that of each k-means cluster (black), or sites with the highest average pairwise tuning correlation (brown). "Soloists" are sites that have medium correlation with other sites (at the 50th percentile).
A 是主结果图:横轴为每阵列的聚类数/分组数 k,纵轴为分类器正确率。黑色 k 均值曲线在 k = 2 就冲到 40%,几乎贴近虚线点线所示的"全 250 位点不聚类"上限(43%);红(随机分组)、绿(穿刺道平均)、蓝(深度平均)在 k = 2 时只有 27–31%,说明增益来自"按调谐协变分组"这个特定的分法,而不是随便平均。B 是 k = 2 时 8×8 混淆矩阵,对角线深、八类全部高于机会,可见读出并非被某一两类撑起来的。C 比较"合唱队员"(与各聚类平均调谐最相似的单点)与"独唱者"(与其他位点相关性居中的单点):每阵列 4 个合唱队员即达 42.4% 平台,按两两调谐相关挑出的合唱队员在 5 个位点时达 42.8%,而独唱者曲线明显偏低。这张图支撑主要结果第 5 条:沿局部群体低维"流形"取几个代表点,就足以支撑对新物体的类别泛化。
讨论
作者把三块发现拼成一句话:在剔除皮层距离的贡献后,调谐与自发放电同步之间存在定量联结(虽然只出现在 6% 的显著对里),且这种联结嵌套在一套跨刺激、跨语义类别都稳定的空间聚类结构中,而按这套结构加权的群体响应用极少的维度就能完成类别内泛化。至于距离为何不显著,作者给出三点解释:他们测的是短距离(阵列宽仅 1.4 mm),抖动校正与肌松排除了行波和眼动相关的慢相关,而在自发放电中测同步避开了刺激特异的动态成分——同一套方法用在 V1 时距离同样退位(引其课题组 Chu 等 2014)。在语义与形状之争上,作者采取了一个与以往不同的切入点:不问"反应如何聚类"而问"哪些位点被聚在一起",结果明确支持形状编码(与 Baldassi 等 2013 一致,与 Kiani 等 2007 的语义观点相左)。作者也承认局限:记录在轻麻醉下进行,清醒猕猴 IT 的同步是动态且分层特异的,他们数据虽提示第 4 层到 2/3 层的前馈迹象但未做解剖学验证;不过清醒记录中眼动会锁定 LFP 与同步,麻醉加肌松反而把眼动贡献剥离出来单独考虑。讨论还延伸到微刺激的精度(30 μm 推进即激活不重叠网络)、人类影像学中局部体素相关(ReHo)与疾病(如自闭症面孔辨别)的关联,以及对 STDP 型无监督泛化学习的启示——本文显示这种调谐—时序关联在无关类别刺激甚至无刺激时依然维持,并留下"自发模式是否在睡眠中持续以支持离线学习"的悬念。
一句话总结
我的理解是:这篇论文最漂亮的地方在于用"自发放电"这个巧劲绕开了刺激驱动的混杂——静息状态下谁跟谁同步,竟然就预示了它们看到物体时怎么一起变化;6% 的稀疏联结配上 50% 对 12.5% 的聚类命中率,说明局部相关不是噪声地板而是骨架本身。要说保留意见,就是轻麻醉与"合唱队员"的事后挑选仍让泛化的神经真实性打一点折扣,但这不妨碍它把特征柱尺度的相关结构第一次和读出性能接上了头。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[A, B] - Fig2: 提取质量
good,对齐度full,识别面板[A, B] - Fig3: 提取质量
good,对齐度full,识别面板[A, B, C] - Fig4: 提取质量
good,对齐度full,识别面板[C, D] - Fig5: 提取质量
good,对齐度full,识别面板[A] - Fig6: 提取质量
good,对齐度full,识别面板[A, B] - Fig7: 提取质量
good,对齐度full,识别面板[A]
关键事实与局限性声明
- 审校纠偏: {'overclaim_id': 'OVERCLAIM_001', 'label': 'OVERCLAIM', 'severity': 'major', 'md_section': '研究思路/一句话总结', 'current_text': '说明这是皮层的内生骨架;局部相关不是噪声地板而是骨架本身', 'problem': '自发活动中的关联排除了视觉诱发共同波动这一特定解释,但研究没有进行连接操纵或解剖验证,不能证明该模式是固定、因果性的“内生骨架”。共同输入、麻醉状态和其他网络因素仍可能产生相关。', 'source_page': 12, 'recommended_fix': '改为:结果提示存在一种在无视觉刺激时仍可观察到的内在功能结构,但其解剖基础和因果作用尚未验证。'} -> 评注:
- 审校纠偏: {'overclaim_id': 'OVERCLAIM_002', 'label': 'OVERCLAIM', 'severity': 'minor', 'md_section': '主要结果', 'current_text': '这正好解释了此前阴性结果', 'problem': '原文只说显著同步稀少以及全体配对关联较弱“与此前未发现关联的报告一致”,没有证明此前阴性结果由此造成。', 'source_page': 6, 'recommended_fix': '改为:这一稀疏性和较弱的全配对效应可能与此前阴性结果相容。'} -> 评注:
- 审校纠偏: {'overclaim_id': 'OVERCLAIM_003', 'label': 'INTERPRETATION_PRESENTED_AS_FACT', 'severity': 'major', 'md_section': '主要结果/讨论', 'current_text': '结构……且是形状性的;结果明确支持形状编码', 'problem': '相同位点聚类跨动/非动物类别以及跨颜色、纹理条件保持稳定,是事实;由此认定结构“基于形状而非语义”是作者推论。实验没有正交操纵形状和语义,二者仍存在混杂,因此不能作为已经证明的事实。', 'source_page': 12, 'recommended_fix': '改为:结果不支持聚类主要由语义类别、颜色或纹理决定,并与形状主导的解释一致,但没有直接分离形状与语义贡献。'} -> 评注:
- 审校纠偏: {'overclaim_id': 'OVERCLAIM_004', 'label': 'OVERCLAIM', 'severity': 'major', 'md_section': '图注解读—图6', 'current_text': '同步……精确地落在调谐定义的空间群组之内', 'problem': 'k=8时同步配对属于同一聚类的概率平均约50%,虽明显高于12.5%的机会水平,但仍有约一半同步配对跨聚类,不能称为“精确地落在”。', 'source_page': 9, 'recommended_fix': '改为:同步配对显著富集于同一调谐聚类,但匹配并非一一对应。'} -> 评注:
- 审校纠偏: {'overclaim_id': 'OVERCLAIM_005', 'label': 'OVERCLAIM', 'severity': 'minor', 'md_section': '一句话总结', 'current_text': '第一次把特征柱尺度的相关结构和读出性能接上了头', 'problem': '原文使用“to our knowledge”,并将优先权限定为显式检验相邻柱内及柱间相关响应、再联系自发同步空间模式。V0删除了知识限定和具体范围。', 'source_page': 10, 'recommended_fix': '改为:据作者所知,这是首次在相邻IT柱内及柱间显式检验相关调谐结构的泛化能力,并将其联系到自发尖峰同步模式。'} -> 评注:
- 补充要点: : (第 3 页)
- 补充要点: : (第 5 页)
- 补充要点: : (第 11 页)
- 补充要点: : (第 8 页)
- 补充要点: : (第 2 页)
- 补充要点: : (第 8 页)