IT Literature Intelligence 终审版本 (VERIFIED) 论文编号:
137| 原始基线:V0_ZCODE_BASELINE| 语义审核:needs_revision| 图表审核:minor_issue
Effect of silhouetting and inversion on view invariance in the monkey inferotemporal cortex
改为“N. Apurva Ratan Murty & S. P. Arun · Journal of Neurophysiology · 2017”。 · Zotero itemID=1375
这篇电生理研究问了一个很"物理"的问题:猴下颞叶(inferior temporal, IT)皮层神经元的视角不变性(view invariance)到底靠的是什么图像特征——外轮廓还是内部细节,特征的朝向排布还是其本身?作者用剪影化(silhouetting,删掉全部内部细节)和倒置(inversion,保留细节但重排朝向与排布)两种图像操作系统性地拆解视角不变性,发现不变性主要依赖外部轮廓、且不专门依赖物体朝向,并借反应时间进程揭示了一个先轮廓后细节的"由粗到细"(coarse-to-fine)加工序列。
研究背景
我们能在深度旋转后轻松认出同一物体,但大脑靠什么特征实现这种视角不变性,当时了解得很少。系统性的图像操作法曾为动物归类等课题带来许多洞见(如去除颜色、相位噪声等操作),却尚未被用于研究脑内视角不变的物体表征。针对 IT 的已有证据是零散的:一方面,单个神经元对物体与其剪影常表现出相似反应(Kayaert 等 2003;Tsunoda 等 2001;Yamane 等 2006、2008),人群平均亦然(Kovács 等 2003),且该团队前作(Ratan Murty & Arun 2015)已发现剪影的视角不变性更弱——但"同一批神经元在自然图与剪影下是否都表现出视角不变"仍不清楚。另一方面,倒置效应在面孔上研究得很细(面孔倒置后识别显著变慢,IT 面孔选择神经元与面孔加工脑区网络对倒置反应强烈调制),而单个 IT 神经元虽有明显的朝向调谐(Ashbridge 等 2000;Rollenhagen & Olson 2000),倒置对一般物体选择性与视角不变性的影响却从未被系统考察。
这构成两个缺口:其一,视角不变性究竟主要由外轮廓承载还是依赖内部细节/纹理;其二,它是否专门针对直立物体(如动物)的特征朝向与排布。若不变性完全依赖内部细节,剪影应将其消除;若专门为直立特征调谐,倒置应削弱它——两种操作恰好构成一对可分离的检验。
研究思路
设计上的核心权衡是"少视角、多物体、全操作":与其在一个物体上扫多个视角,不如让 24 个物体各取两个差异较大的视角(正面侧写 profile 视角与旋转约 45° 的斜向 oblique 视角),并施以自然/剪影 × 直立/倒置四种处理,共 192 个刺激逐一测试每个神经元。这样四种图像条件各自都能算视角不变性(正面—斜向反应的相关),条件间可以直接比较。两个操作的逻辑分工明确:剪影与原图只共享外轮廓,故"自然图—剪影下视角不变性是否同源"直接检验外轮廓的作用;倒置保留特征但重排其朝向与关系,故"直立—倒置下不变性是否保持"检验对特征朝向排布的依赖。分析链条分三层推进:先看神经元层面视角不变性在四种条件下的相关性(同一细胞是否都对剪影/倒置保持视角不变),再用群体解码问"跨视角解码物体身份"的准确性如何随操作变化,最后用逐 20 ms 的时间进程和解码动力学把结论推向加工序列层面,并以像素模型和 V1 模型作低层基线,排除"结论只是图像统计的平凡后果"的可能。
方法
四个猴(Ka、Sa、Ro、Xa)左侧前腹侧 IT 皮层共记录 126 个视觉反应神经元(单电极或多通道电极,记录位置由结构 MRI 确认)。动物执行注视任务:注视点出现后保持注视(窗口 3°,实际眼位标准差水平约 0.23°、垂直约 0.34°),屏幕上以 200 ms 时长闪现 8 张图片,正确完成获果汁奖励。刺激为 24 个自然物体(12 个动物类、12 个人造物),每物两个视角,经剪影化(阈值化后用 Adobe Illustrator Live Trace 描摹)、倒置(绕水平轴镜像)与倒置剪影处理,最长边标定为 5.5°(斜视角等高以貌似真实的深度旋转);四类刺激分 block 呈现以避免亮度突变,同一物体的两个视角从不同时出现在同一试次内,每个刺激至少重复 8 次。
分析以每个神经元在 50–200 ms 窗口内对 24 个物体的平均放电率在正面与斜向视角间的相关系数为"视角不变性"指标;神经元选择性用响应稀疏度(sparseness)量化;补充“解码基于非同时记录神经元构成的伪群体;准确率应视为同时记录条件下的上界估计”。——跨视角解码(训练于一个视角、测试于另一个,24 类偶然水平 4.1%/4.2%)、视角内解码、跨剪影/倒置解码;解码前把群体反应向量投影到主成分保留 80% 方差(因早期许多神经元无反应导致超平面解不唯一)。低层基线包括 40,000 维像素模型与 1,920,000 维 Gabor 滤波器组 V1 模型(6 个空间频率 × 8 个朝向,含输入/输出除法归一化)。剪影化/倒置不变性定义为正面视角下自然图与剪影(或倒置图)反应的相关;物体逐个的神经不相似性定义为 1 − r(原刺激与其变换刺激在全体神经元反应向量间的相关)。
主要结果
- 约三分之一 IT 神经元表现出显著的视角不变性,且在四种图像条件下都成立。显著细胞内的平均相关为 0.44(自然直立,n=44)、0.58(自然倒置,n=37)、0.54(剪影直立,n=36)、0.54(剪影倒置,n=31);群体层面的反应谱相关达 0.46/0.45/0.47(直立/剪影/倒置,P ≤ 0.00005),不相似性结构的跨视角匹配(Kendall's tau)为 0.27/0.22/0.31(图 1B、1C)。
- 视角不变性被剪影削弱但不被倒置削弱。对自然图视角不变的神经元对剪影同样视角不变(跨细胞相关 r=0.39,剔除稀疏度影响后仍 0.37;两类"视角不变细胞"的重叠 n=23 显著高于独立期望的 12,χ² 检验 P<0.05);倒置亦然(r=0.20,重叠 n=21 vs 期望 12)。但看均值,剪影条件下不变性略低(0.30 vs 0.24,P=0.07 未达显著),倒置下无差异(0.30 vs 0.29,P=0.75)。群体跨视角解码率:直立 25%、剪影 18%、倒置 21%——剪影显著低于直立(P<0.05),倒置与直立无差异(P=0.25)(图 2)。控制分析表明选择性(稀疏度 0.29/0.30/0.26)、放电可靠性(劈半相关约 0.36–0.37)与视角内解码在三种条件下均无差异,排除了"不变性差异只是选择性差异"的平凡解释(图 2E)。
- 对剪影化的不变性强于对倒置的不变性,且两者动力学不同。逐细胞上剪影不变性 0.34 显著高于倒置不变性 0.23(P<0.05);时间进程上剪影匹配在约 110 ms 达峰、倒置匹配在约 150 ms 达峰;群体解码上,用自然直立图训练的分类器在剪影上 100 ms 即达峰、在倒置图上 120 ms 才达峰(bootstrap 检验 P=0.04)。三种条件本身响应潜伏期无差(118/115/119 ms),排除了潜伏期差别的平凡解释(图 4)。
- 这些不变性相互关联,提示"不变"是神经元的内在属性。剪影不变性与视角不变性跨细胞相关 r=0.45,倒置不变性与视角不变性 r=0.20,剪影不变性与倒置不变性之间 r=0.37(均剔除稀疏度后仍显著)(图 3)。
- 低层模型给出相反的预测,物体结构影响操作效应。像素与 V1 模型的视角不变性远低于 IT,且在这两个模型中倒置表征与直立更相似(因为删内部细节造成的图像变化更大)——与 IT 中"剪影先匹配"的格局恰好相反,说明观察到的动力学反映的是 IT 的加工顺序而非输入统计(图 5)。逐物体分析显示:剪影化的影响在斜视角下更大(直立物不相似度正面 0.14 vs 斜向 0.19,P<0.005),鹿(物体 1)剪影后保持三维形状信息而蝇(物体 6)丢失严重;倒置影响对自然图在斜视角更强(0.15 vs 0.18,P<0.05)而对剪影无此差别,且绕水平轴不对称的物体受影响更大(图 6)。另外,动物类与人造物的视角不变性无差异(均 r=0.25),说明在无熟悉化条件下不变性并未专门偏向动物。
图注解读
图 1 · 单个神经元与群体在四种图像条件下的反应谱
原文图注:Fig. 1. Effect of silhouetting and inversion on inferior temporal (IT) neurons. A: responses of an example IT neuron to a subset of four objects in two views, across silhouetting and inversion in the image-on period (200 ms). Ticks indicate single action potentials, and the histogram bars represent the firing rate of the neuron in 10-ms bins. Silhouettes are depicted here as black against white, but in the actual experiment, they were white against a black background. The top left inset depicts the mean waveform shape (thick line) and standard deviation across all detected waveforms (gray shading). B, top: normalized response for each neuron plotted for objects ranked according to its preference in the natural upright profile images. Neurons are sorted by response sparseness calculated(超过 4 句,截断)
A 面板给一个示例神经元:四行分别为自然直立、自然倒置、剪影直立、剪影倒置,每行内再分正面/斜向两个视角,棘刺图与直方图显示该神经元对偏好物体在所有条件下都维持偏好(其视角不变性相关为直立 0.47、倒置 0.43、剪影直立 0.26、剪影倒置 0.26)。B 面板是 126 个神经元的反应热图:每行一个神经元,列是按该神经元对自然直立正面图的偏好排序的 24 个物体,从左到右由亮到暗的单调衰减斜坡本身就说明"偏好排序"跨视角、跨剪影、跨倒置都保持——热图上方的相关系数(0.46/0.45/0.47)是正面与斜向反应图的匹配度,即视角不变性的群体证据。C 面板把每种条件的两两物体不相似矩阵并列,其对角结构在两视角间一致(Kendall's tau 0.27/0.22/0.31)。这张图支撑结果第 1 条,为全文奠定"不变性普遍存在"的基线。
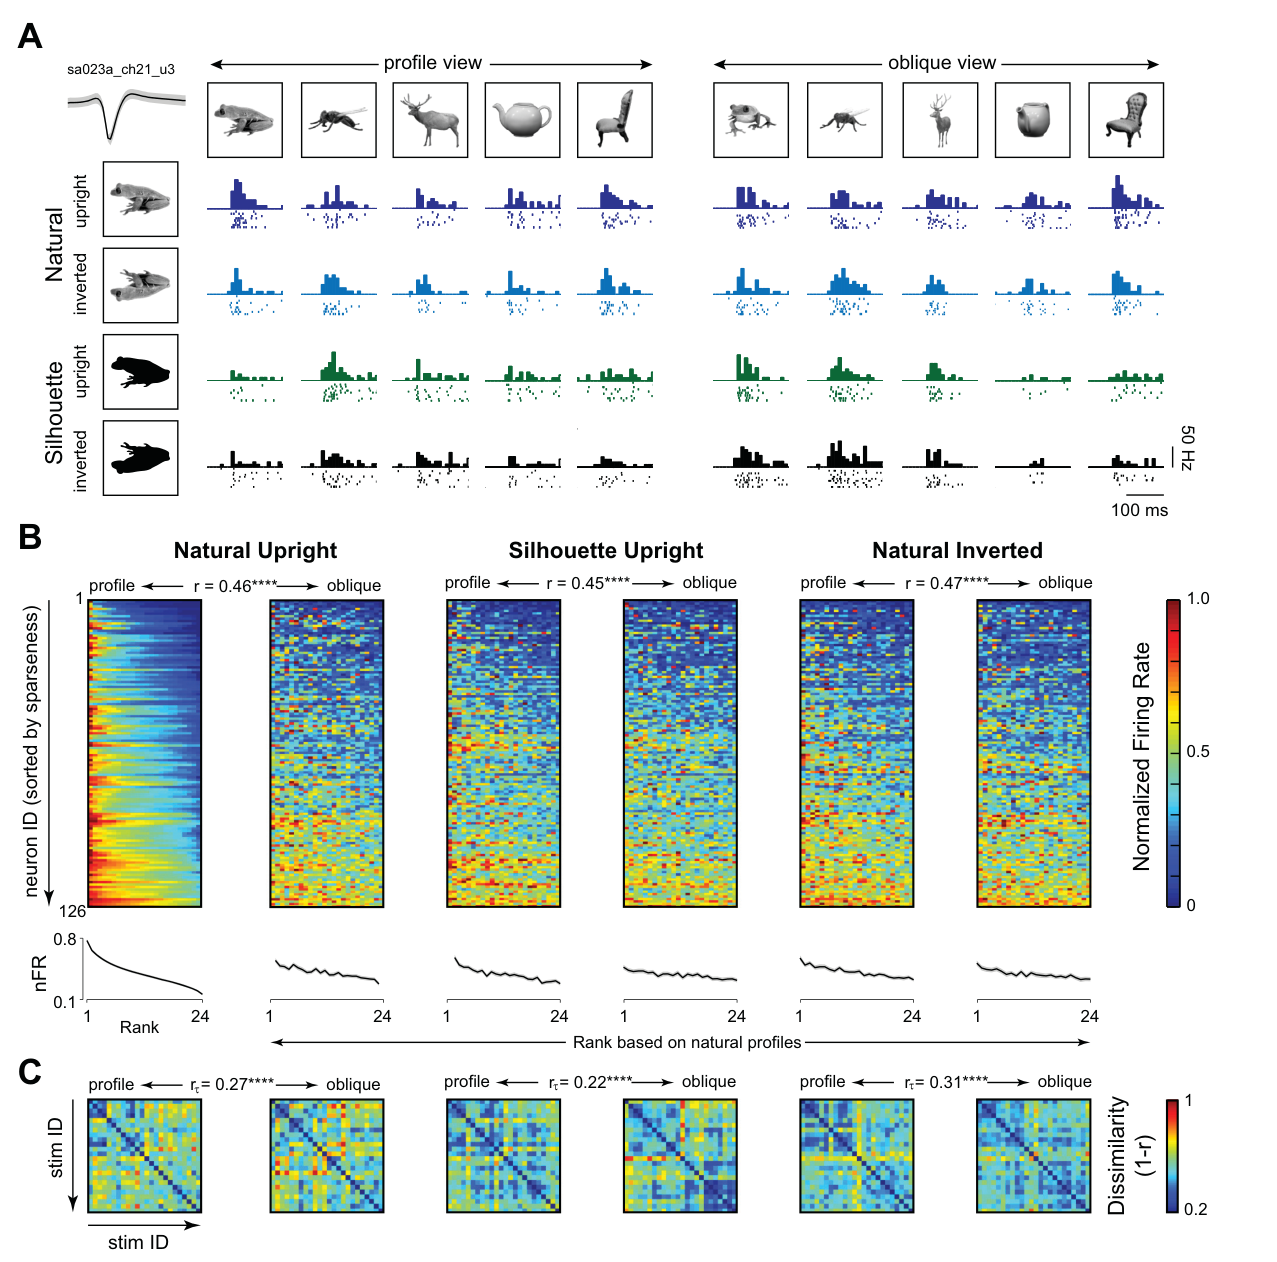
图 2 · 视角不变性:剪影削弱、倒置不变
原文图注:Fig. 2. Effect of silhouetting and inversion on viewpoint invariance. A: scatterplot of view invariance (profile-oblique correlation across 24 objects) for silhouette vs. natural-upright objects across neurons. The dotted line is the y = x line, and the solid line is the best-fitting line. Green circles indicate cells with significant view invariance for silhouettes (profile-oblique correlation, P < 0.05), and blue crosses indicate cells with significant view invariance for upright objects. B: scatterplot of view invariance for inverted vs. upright objects across neurons. Conventions are as in A. C: view invariance for upright, silhouette, and inverted objects. Error bars indicate the SE across neurons. D: view-invariant object decoding accuracy for upright, silhouette, and inverted objects, calculated across 192 trials (24 objects × 8 trials). The dashed line indicates chance performance for the object decoder (1/24 = 4.2%). P < 0.05. **P < 0.0005. n.s., not significant. Error bars indicate the means ± SE of the decoding accuracy across trials. E: view-specific object decoding performance for upright, silhouette, and inverted objects. The dashed line indicates the chance performance for the object decoder (1/24 = 4.2%). Error bars indicate the means ± SE of the decoding accuracy across trials.
A、B 两张散点图以横轴为自然直立条件的视角不变性、纵轴分别为剪影与倒置条件的视角不变性,虚线是 y=x 参考线、实线是最小二乘拟合线,绿圈与蓝叉分别标记在对应条件下显著的细胞。读法看两点:点的整体走向(A 中 r=0.39、B 中 r=0.20 的正相关说明同批细胞跨条件不变)以及散点云相对 y=x 的位置(剪影一图点云略沉于对角线下方,暗示均值略低)。C 的三根柱给出三种条件的平均视角不变性(0.30/0.24/0.29),差异均不显著或临界。D 是群体跨视角解码准确率(虚线为 1/24 偶然水平),剪影柱显著矮于直立柱而倒置不显著。E 的视角内解码三柱等高,是关键的阴性对照——它证明剪影下解码变差不是因为物体本身变得"更难编码"。这张图支撑结果第 2 条的全部关键数字。
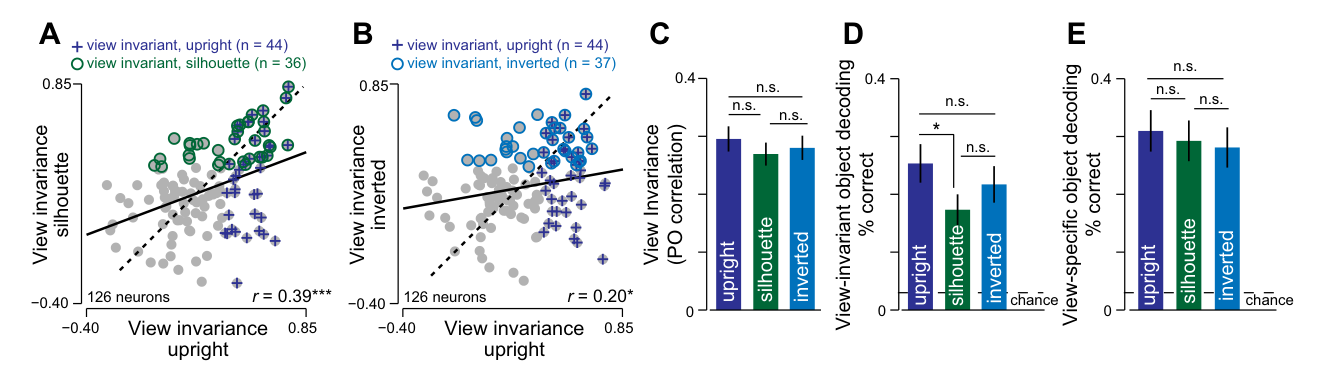
图 3 · 剪影不变性、倒置不变性与视角不变性两两相关
原文图注:Fig. 3. Invariance to silhouetting and inversion. A: silhouetting invariance for each neuron (measured as the response correlation between natural upright images and silhouette upright images in the profile view across 24 objects) plotted against view invariance (response correlation between natural upright profile and oblique views across 24 objects) for each neuron. Conventions are as in Fig. 2A. B: inversion invariance (measured as the response correlation between natural upright and inverted images in the profile view) plotted against view invariance. C: silhouetting invariance plotted against inversion invariance. P < 0.05. P < 0.0005. **P < 0.00005.
三张散点图分别把"对剪影化的不变性""对倒置的不变性"与视角不变性、以及两者互相对画。三个相关系数(0.45、0.20、0.37)层层递进地说明:一个对视角不变的神经元倾向于对剪影化和倒置也不变,而这两种操作不变性本身又彼此相关。这排除了"存在专门处理剪影或倒置的独立神经亚群"的解释,支持结果第 4 条——不变性像是细胞的普遍属性,与该团队引用的"选择性神经元沿多个维度都选择性"(Zhivago & Arun 2016)的观点一致。
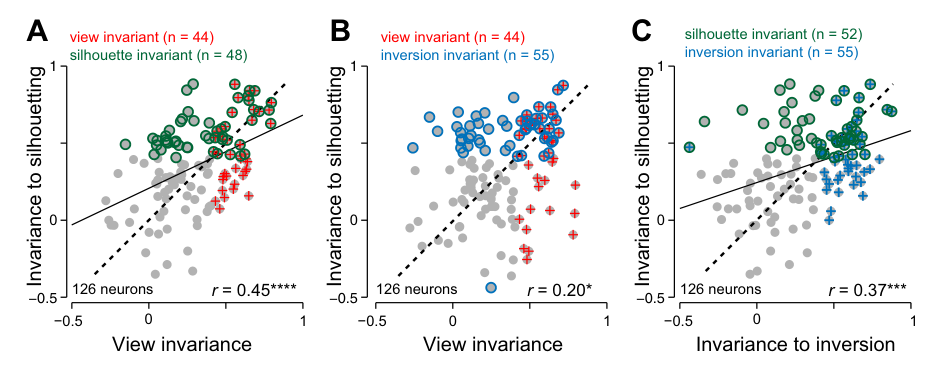
图 4 · 由粗到细:剪影匹配早于倒置匹配
原文图注:Fig. 4. Effect of silhouetting and inversion on object representations in IT. A: tuning correlation between natural upright and their silhouettes in the profile view across 24 objects (green) and between natural upright and inverted in the profile view (blue). *P < 0.05. B: time course of tuning correlation in 20-ms bins between natural and silhouette objects in the profile view (green) and between natural and inverted objects in the profile view (blue). The bold trace indicates the mean, and the shaded regions indicate the means ± SE across neurons. The black dashed line indicates the mean normalized response across all the stimuli overlaid for comparison. C: time course of decoding accuracy of a classifier trained on natural upright objects (profile views) and tested on their silhouettes (green) and inverted versions (blue). The bold trace indicates the mean, and shaded regions represent standard deviation over 100 bootstrap-derived time course estimates obtained by sampling 100 cells with replacement. The dashed line indicates chance performance of object decoding (1/24 = 4.2%), and the triangles below indicate the peak latency.(超过 4 句,截断)
A 面板是整段反应内自然—剪影与自然—倒置调谐相关的均值柱状比较(0.34 vs 0.23,绿显著高于蓝)。B 面板画两条相关的时间曲线:绿色(剪影匹配)先升先落、蓝色(倒置匹配)随后追上,约 110 ms 与 150 ms 达峰,黑色虚线是总体平均归一化反应作参照。C 面板把解码动力学呈现为两条曲线:绿色(在剪影上解码)与蓝色(在倒置图上解码)都由自然直立图训练的分类器给出,三角形标出峰潜伏期 100 ms 与 120 ms,bootstrap 阴影给出重抽样标准差。三联图的共同信息是:群体表征先与"只剩外轮廓"的剪影一致,之后才与"细节重排"的倒置图一致——这正是结果第 3 条"由粗到细"的直接证据。
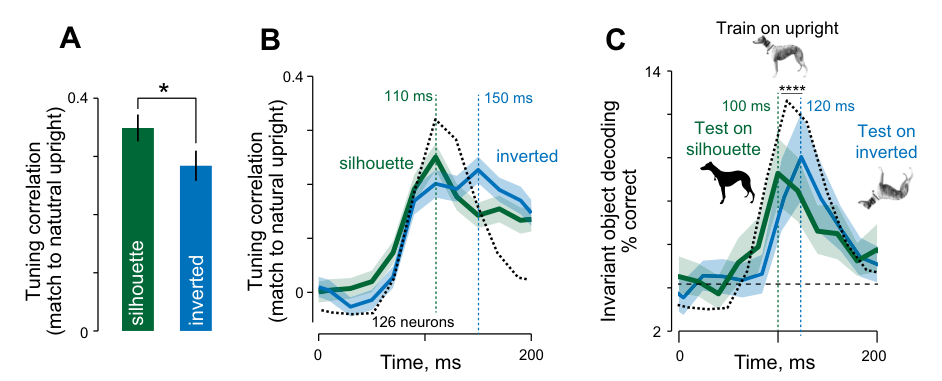
图 5 · 像素与 V1 基线:低层模型预测与 IT 相反
原文图注:Fig. 5. Baseline invariance and effect of silhouetting and inversion on low-level visual representations. A: average tuning correlation between profile and oblique views across pixel, V1, and IT units. Error bars indicate the means ± SE across units. Note that the IT data here are the same as in Fig. 2C. B: to establish a baseline for the effect of silhouetting and inversion on IT neurons, we calculated pairwise distances between natural upright objects in their profile views and compared this with the pairwise distances between their silhouette or inverted versions using the correlation coefficient. This measure has the advantage that it is scale-free and can be used to compare any two representations.(超过 4 句,截断)
A 面板把像素模型、V1 模型与 IT 数据的视角不变性画在同一坐标系:两个低层模型的柱远矮于 IT,说明 IT 的视角不变性不是输入统计的自动结果。B 面板是关键的反向验证:以"与自然直立表征的匹配度"为纵轴,像素与 V1 模型中倒置版更匹配直立版(因为剪影删掉了大量像素变化),而 IT 中剪影版更匹配——低层模型预测的方向与 IT 实际数据恰好相反。这张图支撑结果第 5 条的前半部分,是"由粗到细"论证不可或缺的基线:若 IT 动力学只是追随图像变化量,绿色曲线不可能早于蓝色。
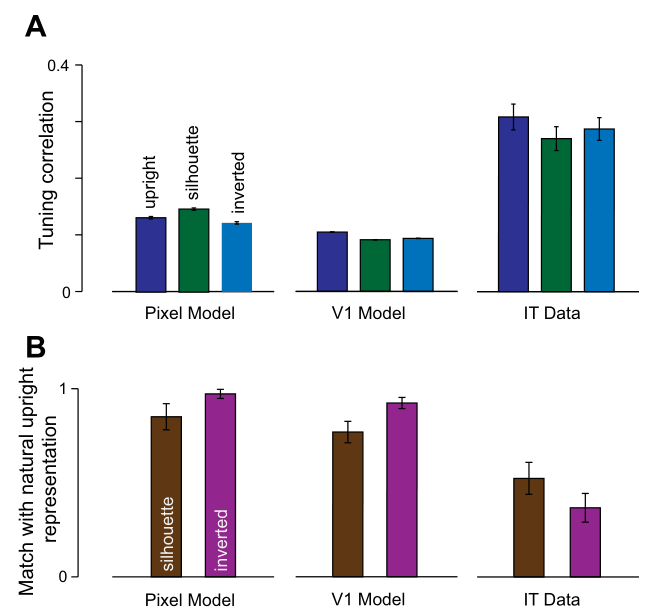
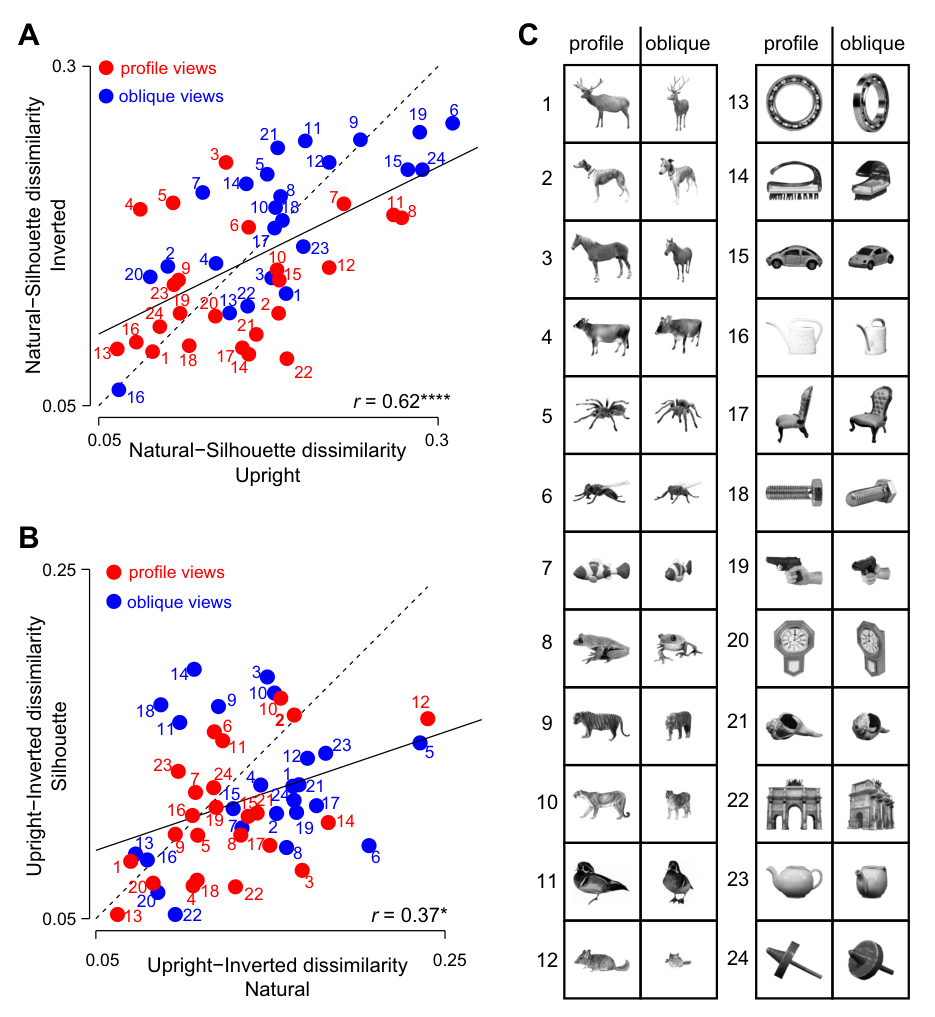
图 6 · 逐物体效应:影响取决于物体结构
原文图注:Fig. 6. Object-wise effects of silhouetting and inversion. A: to calculate the impact of silhouetting for each object, we calculated the neural dissimilarity across neurons between the original and silhouette versions of that image. The neural dissimilarity is calculated as 1 − r, where r is the correlation coefficient between neural response vectors for the original image and its silhouette. We then plotted the natural-silhouette dissimilarity for inverted against upright stimuli for profile (red) and oblique views (blue) of each object. Numbers alongside each plot indicate stimulus identity shown in C. ***P < 0.00005. B: natural-inverted dissimilarity for silhouette against original stimuli for objects in their profile and oblique views, calculated as in A. P < 0.05. C: stimuli used in the experiment, shown for natural upright objects, in both views. Numbers denote the objects shown in A and B.
A、B 两张散点图的每个点代表一个物体:横纵轴分别是该物体在直立与倒置(或剪影与原始)版本下经剪影化(或倒置)造成的神经不相似度,红点为正面视角、蓝点为斜向视角,数字标出物体编号便于回查 C 面板的刺激图。读法上,点云整体正相关(A 中 r=0.62,B 中 r=0.37)说明两种操作的效应跨条件一致、彼此独立;而红点系统性低于蓝点说明斜向视角受剪影化影响更大。C 面板列出全部 24 个物体在两个视角下的原图,读者可以直接目测哪些物体(如鹿与蝇的对比)的剪影保留了更多三维形状信息。这张图支撑结果第 5 条后半部分:剪影化与倒置的效应依赖于物体结构本身,而非均匀作用于所有刺激。
讨论
作者把四条主发现整合为一个模型:IT 的视角不变性主要由剪影中仍保留的外部轮廓驱动,叠加倒置无关的特征加工,且"不变"更像神经元跨越多个属性维度的内在属性而非专门机制。逐物体动力学被解读为两波加工:早期一波先计算外轮廓间的粗匹配,使物体与剪影更相似;随后一波做倒置无关的细特征加工,使直立与倒置图更趋一致——这与"外轮廓传递粗略空间信息"的先行证据(Sripati & Olson 2009;Sugase 等 1999)以及行为上人可凭剪影与倒置图识别大多数物体(Panis 等 2008;Quinn 等 2001;Guyonneau 等 2006;Sekuler 等 2004)相符。作者同时强调这些发现"绝非对精确特征的定论",而是对任何视角不变识别模型的约束条件。局限方面,只测了两个视角,但作者给出三点外推理由:视角变化更小时图像变化不大、只会得到更强的不变性;视角变化更大时镜像混淆反而推高表观不变性(Rollenhagen & Olson 2000);剪影化与倒置对选择性的影响相对小且独立于对视角不变性的影响。文中还与面孔倒置文献对话(Freiwald & Tsao 2010;Taubert 等 2015;Sugase-Miyamoto 等 2014),指出一般物体上倒置对不变性的影响远小于面孔研究中报告的强烈调制。逐物体层面作者坦承难以定量刻画"剪影保留了多少三维形状信息",只给了鹿/蝇的定性观察。
一句话总结
这篇文章的聪明之处在于用将“互斥”改为“互补且可组合的两种图像操作”。(剪影删细节、倒置乱排布)把"视角不变性靠什么"变成一道消融题,而答案出人意料地偏向轮廓、排倒朝向;早期匹配剪影、晚期匹配倒置图的时间线又给了"由粗到细"一个单细胞分辨率的实证注脚。我认为它是那种"约束条件式"的好研究——不宣称找到最终答案,但任何视角不变性模型从今必须先过外轮廓这一关。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[A, B] - Fig2: 提取质量
good,对齐度full,识别面板[A, B, C, D] - Fig3: 提取质量
good,对齐度full,识别面板[A, B, C] - Fig4: 提取质量
good,对齐度full,识别面板[A, B, C] - Fig5: 提取质量
good,对齐度full,识别面板[A, B] - Fig6: 提取质量
good,对齐度full,识别面板[A, B, C]
关键事实与局限性声明
- 审校纠偏: {'overclaim_id': 'OVERCLAIM_001', 'classification': 'INTERPRETATION_PRESENTED_AS_FACT', 'severity': 'major', 'md_section': '一句话定位、讨论', 'current_text': '发现不变性主要依赖外部轮廓;IT的视角不变性主要由外部轮廓驱动', 'problem': '实验事实是剪影化降低跨视角解码但未消除视角不变性,且自然图与剪影反应相关。把这直接等同于“主要由外轮廓驱动”是作者推论;剪影化同时改变内部纹理、亮度结构及其他图像统计,不能精确识别真正的编码特征。原文也明确承认结果并不能确定精确特征。', 'recommended_fix': '改为“结果提示外部轮廓至少部分支持视角不变性;作者据此提出外轮廓可能是重要驱动因素,但精确特征尚未确定”。'} -> 评注:
- 审校纠偏: {'overclaim_id': 'OVERCLAIM_002', 'classification': 'CORRELATION_OVERCLAIM', 'severity': 'major', 'md_section': '图3解读', 'current_text': '这排除了‘存在专门处理剪影或倒置的独立神经亚群’的解释', 'problem': '跨神经元正相关只能说明不同不变性指标存在统计关联,不能排除混合群体、专门亚群或共同混杂因素。作者仅提出两种可能解释,并未宣称排除独立亚群。', 'recommended_fix': '改为“相关结果与同一神经元可跨多个变换保持不变的解释一致,但不能排除功能异质亚群”。'} -> 评注:
- 审校纠偏: {'overclaim_id': 'OVERCLAIM_003', 'classification': 'NULL_RESULT_OVERCLAIM', 'severity': 'moderate', 'md_section': '图2解读', 'current_text': '它证明剪影下解码变差不是因为物体本身变得‘更难编码’', 'problem': '视角内解码、稀疏度和可靠性未检出显著差异,只能削弱这些特定替代解释;非显著结果不是等效性证明,也不能排除未测量的编码难度差异。', 'recommended_fix': '将“证明”改为“表明该差异不容易由已测量的视角内可解码性、稀疏度或可靠性差异解释”。'} -> 评注:
- 审校纠偏: {'overclaim_id': 'OVERCLAIM_004', 'classification': 'MODEL_SCOPE_OVERCLAIM', 'severity': 'moderate', 'md_section': '主要结果、图5解读', 'current_text': '说明观察到的动力学反映的是IT的加工顺序而非输入统计;IT的视角不变性不是输入统计的自动结果', 'problem': '像素模型和一个特定Gabor/V1模型给出相反趋势,只能排除这两个低层基线,不能排除所有低层或中层图像统计解释。', 'recommended_fix': '改为“该动力学不能由本文测试的像素模型和V1模型直接解释,并与作者提出的IT由粗到细加工解释一致”。'} -> 评注:
- 审校纠偏: {'overclaim_id': 'OVERCLAIM_005', 'classification': 'INTERPRETATION_PRESENTED_AS_FACT', 'severity': 'moderate', 'md_section': '主要结果、图4解读、一句话总结', 'current_text': '揭示了先轮廓后细节的由粗到细加工序列;给了由粗到细一个单细胞分辨率的实证注脚', 'problem': '早期自然—剪影匹配和较晚自然—倒置匹配是FACT;把前者指定为轮廓计算、后者指定为内部细节计算属于作者的机制性INTERPRETATION。特别是单神经元峰值潜伏期差异并不显著,显著时间差来自伪群体解码。', 'recommended_fix': '明确标注为作者解释:“时间顺序与由粗到细加工相符,但尚不能直接证明两个独立加工波或其具体特征内容。”'} -> 评注:
- 补充要点: : (第 7 页)
- 补充要点: : (第 8 页)
- 补充要点: : (第 2 页)