IT Literature Intelligence 终审版本 (VERIFIED) 论文编号:
123| 原始基线:V0_ZCODE_BASELINE| 语义审核:minor_revision| 图表审核:passAstra裁决:compromise_revision(revise)
Sources of Adaptation of Inferior Temporal Cortical Responses
Vogels · Cortex: a Journal Devoted to the Study of the Nervous System and Behavior · 2016 · Zotero itemID=1271
"看过的东西再出现,下颞叶神经元为什么会变蔫?"这是作者在这篇综述里正面承认的悬案:猕猴下颞叶皮层(inferior temporal cortex, IT)的重复抑制(repetition suppression, RS)被用作 fMRI 适应解读的黄金参照已近二十年,但 RS 究竟产生于记录神经元的自身疲劳、其突触输入、还是来自更高级区域的自上而下预期,一直缺乏系统裁决。Vogels 把自己实验室十多年的单细胞证据摆上解剖台,逐一检验候选机制,得出一个明确但克制的立场——IT 的适应主要是自下而上、局部网络层面的现象,其功能是把最近看过的刺激"调暗"、放大新出现者的显著性。对任何用 fMRI 适应范式做推理的人,这篇文字是一剂必要的解毒药。
研究背景
IT 是腹侧视觉通路的终点站,重复抑制在其中几乎无处不在:从 Miller 等的工作到 Vogels 团队的一系列记录研究,IT 神经元对重复刺激的反应通常下降[De Baene & Vogels 2010;Kaliukhovich & Vogels 2011, 2012, 2014;Sawamura 等 2006;Miller, Li & Desimone 1991 等等]。这一现象之所以重要,有两重原因。实践层面,fMRI 适应(通过重复刺激引起的 BOLD 减退来推知神经调谐特性)已是人类腹侧通路人手一件的工具,但 Sawamura 等与 Tolias 等早已警告"神经元适应的选择性并不等价于神经元的反应选择性",可直到近期仍有研究继续把适应效应当作调谐的直接读数(作者点名 Glezer 等 2015)。理论层面,刺激历史确实改变知觉,解释适应即是在解释知觉的神经机制。
然而在机制层面,当时的图景远不如现象清晰。候选解释一大把:放电频率依赖的反应疲劳(response fatigue,以长时间的后超极化 [afterhyperpolarization] 为代表)、突触前机制主导的突触压抑(synaptic depression)、来自其它 IT 神经元的输入被削弱(input fatigue)、适应沿前馈通路从早期视觉区继承,以及 Friston 预测编码体系下"重复抑制=预测误差降低"的自上而下假说(Summerfield 等 2008 的 fMRI 证据曾被视作后者的强支持)。这些假说在 IT 上都只有间接或矛盾的证据,没有一个接受过刺激特异性的严格约束,也几乎没有工作同步回答"适应来自哪里"与"适应用来做什么"这两个问题。本综述的缺口正在于此:把机制候选逐一放到单细胞数据面前对照。
研究思路
作者的策略是一条"排除法+对照组"的实验叙事:先确立 IT 适应的现象学边界(指数分布、时间过程、重复次数、间隔依赖),再让每个机制假说与这些现象单挑。判断规则很朴素——一个假说要在 IT 成立,必须同时解释三件事:适应的刺激特异性(两个等效应适配器为何产生不同抑制)、适应出现在反应全程中的特定阶段(峰值后最大随后回落)、以及适应对长间隔的鲁棒性;如果还能顺带解释"无效刺激适应增强复合刺激反应"这种反直觉发现,加分。
论证结构也由此推进:先用放电率相关分析排除"记录神经元自身疲劳"作为主要来源;再用刺激特异性证据引出输入侧机制(突触压抑或网络内其它适应神经元的输入);然后用大间隔、跨位置实验切割"继承自早期区"的可能;最后直面 Summerfield 的预测编码说,以同款重复概率设计在猴 IT 中做决断。注意力因素则单独成节,用"调光任务"把注意水平等化后再问 RS 是否还在。整条思路的功能侧落点是把 IT 定位为一个"新异性放大器"——减少重复刺激的编码、突出变化者。
方法
综述主体来自作者实验室在猕猴前部 IT(TE 区)的单细胞记录,采用短时程适应范式(图 1):先呈现适配器刺激(adapter),经 300–1000 ms 空屏间隔后呈现测试刺激(test),二者相同为重复试验(AA),不同为交替试验(AB);正文将所讨论的短时程范式描述为适配器呈现300–1000 ms、刺激间隔300–1000 ms;图1图注另给出刺激时长250–500 ms、间隔300–500 ms的范围。两处概括并不完全一致,具体参数须按研究区分,例如图5采用300 ms刺激及600或900 ms间隔。,试次间隔长达间隔的一个数量级,猴须保持注视才能拿果汁奖励,注视窗口外侧眼动试验被剔除;各研究所做的眼动分析均未发现眼动与适应效应相关。适配效应以适应指数(adaptation index)量化:将适配器与重复刺激的净反应差除以适配器反应,指数 0.5 表示重复刺激反应减半,负值表示增强;窗口取刺激时长、后延 50 ms 以容纳最短反应潜伏期。基线扣除影响指数大小但不影响正负号。典型数据集两例:Sawamura 等 2006(169 个神经元、两只猴、自然图片)与 De Baene & Vogels 2010(77 个神经元、人工图形),均有独立测试选出的"有效刺激"。
机制检验部分的操作要点:反应疲劳检验靠"等效适配器对比"(两个引发同等反应但形状不同的适配器)与逐试次放电率回归;位置实验让适配器与测试刺激在 IT 感受野内相距 8°(4° 偏心、上下非重叠位置)出现;注意实验用"调光任务"(detect subtle global luminance change,检出率 73%、虚报率 <1%,且测试调光的检出率不依赖其与前一个适配器的形状相似度),再比较非调光试验的适应指数与被动注视条件;重复概率实验(Kaliukhovich & Vogels 2011)完全复刻 Summerfield 等 2008 的时序参数与概率设置,但采用试次唯一的新异刺激(分形与自然图片各一套),同步分析锋电位(spiking activity)与局部场电位(local field potential, LFP)。
主要结果
-
现象学三条边界。其一,IT 神经元平均呈现重复抑制,但个体差异横跨"强抑制"到"轻微增强",且这种变异是真实的神经元差异而非测量噪声:同一神经元用两个不同有效刺激测得的适应指数显著相关(Pearson r = 0.53,p < .00001,n = 169),而适应指数与适配器引发的放电率无关(r = .002,n.s.;图 2)。其二,适应效应在反应过程中非平稳:抑制在峰值之后达到最大、随后回落,重复刺激的反应常在刺激后约 160–220 ms 出现典型的"凹陷"(图 3)。其三,单次重复即可诱发抑制,更多重复会增强抑制但呈非线性、以第一次重复的压制力最强(图 4)。
-
间隔鲁棒性。ISI 为 600 或 900 ms 时,群体 PSTH 仍清晰呈现适配器反应强于测试刺激(图 5),即 RS 至少在 900 ms 间隔下依然存在。这与短时程适应在狝猴 V1 上的表现形成对照——那里 400 ms 刺激引发的适应效应在 100 ms 间隔时即告消失(Patterson 等 2013),暗示 IT 的适应机制与早期区不同源。
-
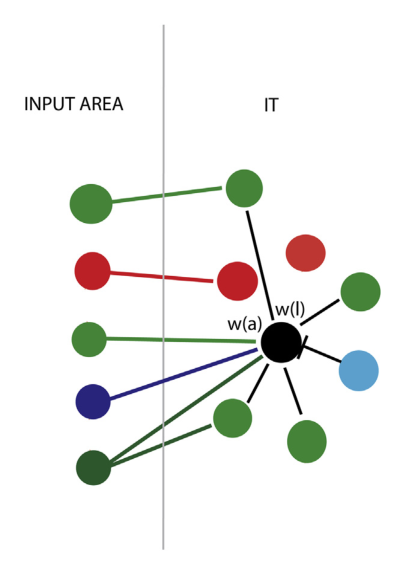
记录神经元自身的放电率疲劳只能解释一小部分。等效适配器产生不同抑制(Sawamura 等 2006)、试次间适应深度与放电数不相关(Liu 等 2009)、若干条件下抑制程度与适配反应甚至负相关(De Baene & Vogels 2010),回归分析估计放电率依赖机制在多数神经元只能解释一小部分测试刺激反应方差。因此刺激特异性必须来自输入侧——突触压抑,或网络中其它 IT 神经元经由未压抑突触传递的已削弱输入(图 6 的路径区分:记录神经元的自体疲劳会产生跨刺激的"交叉适应",与等效适配器证据矛盾)。同一框架下,若受适应的是除法归一化输入(divisive normalizing input),则可顺带解释"适应无效刺激反而增强复合刺激反应"这一反直觉发现(Solomon & Kohn, 2014 的框架)。
-
至少部分适应不是早期视觉区的"遗产"。适配器与测试刺激在 IT 感受野内的不同位置上呈现时,显著抑制依旧存在(中位适应指数 .21,同位置为 .36),且两种情形的时间过程相同(De Baene & Vogels 2010;与 Lueschow 等 1994 的"完全位置不变"结论的分歧被归因于记录区与任务的差异)。不过作者同时提醒:位置依赖的分量完全可以视为"位置特征"的特异性适应,不必解读为继承;且该设计只能排除 V1/V2(推及 LGN 与视网膜)乃至很可能 V4,后部 IT(TEO/PIT)作为输入源仍无法排除——理想的检验应是绕过前馈通路、直接刺激 IT 神经元,文中未详述进展。
-
RS 与注意、预期分道扬镳。调光任务把适配器与测试刺激的注意水平等化后,RS 依然存在(中位 .31),与被动注视条件无显著差异;但任务确实能改写重复效应的符号——与重复相关的"异同判断"任务中,依匹配策略还是非匹配策略会产生增强或抑制(Vogels & Orban 1994 的个体差异;Miller & Desimone 1994),麻醉条件下仍存在RS,并有研究提示其可能更强,说明任务相关因素并非RS产生的必要条件。,说明 RS 并非任务变量的产物。决断性的重复概率实验在猴 IT 得到否定答案:无论 spiking 还是 LFP、三只猴、分形与自然两种刺激、仅取高有效刺激子集,均无重复概率效应,刺激特异适应却仍健在(Kaliukhovich & Vogels 2011)。跨物种分歧的解释是刺激类别而非注意机制:人类 fMRI 的重复概率效应只在高度熟悉的类别(面孔、正置罗马字母)上复现,物体、椅子、伪字均无(Kovacs 等 2013;Grotheer & Kovacs 2014),且不注意时该效应也不出现(Larsson & Smith 2012);更妙的是,多数研究报告的其实是"意外交替试验的 BOLD 升高"——一种惊讶反应——而非预期重复的抑制加深。
图注解读
图 1 · 短时程适应范式的时序
原文图注:Fig. 1 – A typical short-term adaptation protocol. In this example, two stimuli are shown successively, separated by a 300 msec blank field. Two types of trials are presented to the subject: repetition trials (AA) in which the same stimulus is repeated and alternation trials (AB) in which the two stimuli of a sequence differ. The monkey is required to fixate a target (indicated by the red square, for clarity shown larger than in the actual experiments) during the entire trial. ……
解读:这张图是理解全文数据的模板。时序自上而下:500 ms 基线注视 → 适配器刺激(示例 300 ms)→ 300 ms 空屏 → 测试刺激 → 450 ms 注视后程,结束时按注视表现给果汁。重复试验(AA)与交替试验(AB)在一套刺激下交替出现,适配器与测试刺激是独立测试中确认能驱动该神经元的图像——这是后文"适应指数"分母的来源。读图时抓住两个隐藏变量:试次间隔比间隔长一个数量级、且部分研究在间隔里呈现打乱图像以"去适应",伪随机安排使当前试次的适配器不同于上一试次的测试刺激;较长的试次间隔,以及部分研究在试次间隔中插入的图像,有助于降低上一试次适应对当前反应的影响,但不能据此认定残余跨试次适应已完全消除。
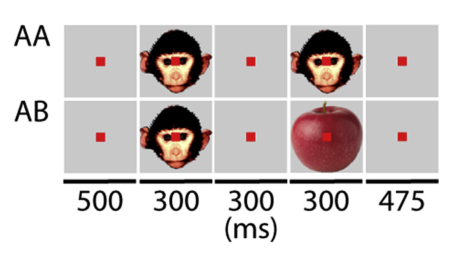
图 2 · IT 神经元适应指数的分布
原文图注:Fig. 2 – Distribution of adaptation indices of IT neurons. A. Adaptation indices computed on net responses for effective stimuli (selected separately for each neuron). Positive indices indicate repetition suppression, negative repetition enhancement. A two fold decrease of the response to a repeated stimulus corresponds to an adaptation index of (2 − 1)/2 = .5. The adaptation indices (169 single IT neurons of two monkeys) were computed from the data obtained by Sawamura et al. (2006). Stimuli were color images of natural stimuli (animals, objects etc.). B. Adaptation indices obtained in the study by De Baene and Vogels (2010), based on net responses (n = 77 neurons of two monkeys). Stimuli were artificial shapes. In both studies the stimulus duration and interstimulus interval was 300 msec.
解读:两个直方图给出"平均抑制、个体从增强到强抑制连续分布"的第一份图形证据。横轴是适应指数(正值=重复抑制,负值=重复增强):A 面板用 Sawamura 数据(自然图片、n = 169)、B 面板用 De Baene & Vogels 数据(人工图形、n = 77),指数按净反应(基线扣除)计算。读图要点:纵轴上大多数神经元集中在正值区,但两图都有一条伸入负值区(增强)的尾巴;指数大于 0.5 的个体并不罕见。这支撑主要结果第 1 条的个体差异证据,还顺带提示方法学:基线扣除会放大指数(分母变小),跨研究比较须谨慎。
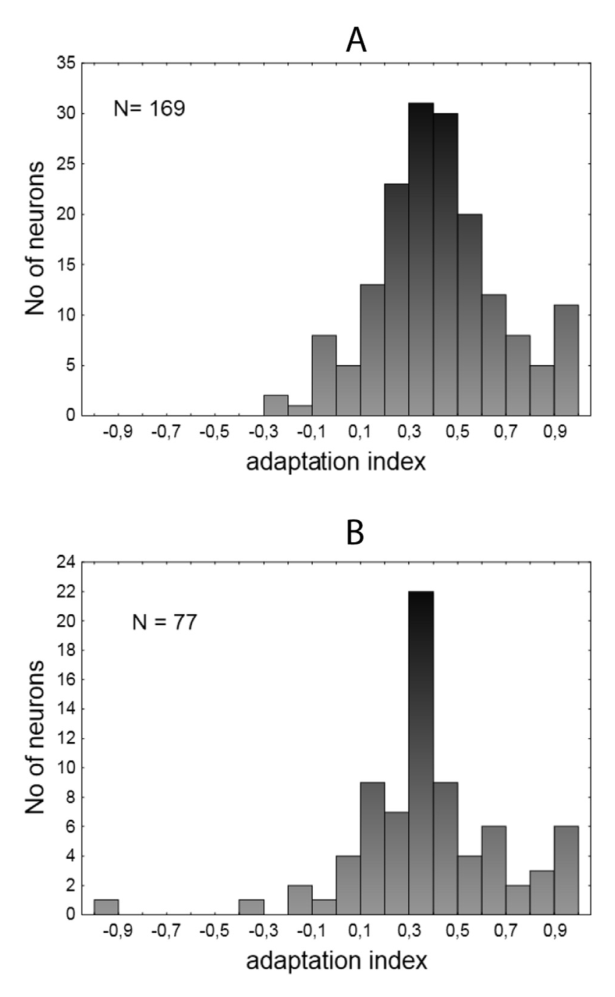
图 3 · 适应效应的时间过程
原文图注:Fig. 3 – Population peristimulus time histograms of IT responses to the adapter and test stimulus. The mean responses to the adapter and test stimulus are shown in full and stippled lines, respectively. A. Responses were first normalized with respect to the peak firing rate and then averaged across neurons (n = 169 neurons of two monkeys). The responses were computed from data of the Sawamura et al. (2006) study. B. Mean firing rate without normalization. Results from the De Baene and Vogels (2010) study (n = 80 neurons of two monkeys). Stimuli were identical to those of the data shown in Fig. 2. 0 corresponds to stimulus onset. No smoothing was applied. Bin width 10 msec. In both studies the stimulus duration and interstimulus interval was 300 msec.
解读:横轴为刺激后时间(0 起始于刺激发生),实线为适配器反应、虚线为重复刺激(test)反应,10 ms bin 无平滑。两面板的读法一致:重复引起的压制并非均匀存在,而是在反应达到峰值之后才拉开差距,随后在反应的后续阶段逐渐回落,test 曲线在刺激后 160–220 ms 附近出现典型凹陷。这个"峰值后才最大"的时间形状是选择机制假说的核心约束——自体疲劳类机制以秒为时间常数,很难解释这种数百毫秒内的动态;它支撑主要结果第 1 条(时间过程)并为第 3 条(输入侧/网络机制)埋下伏笔,因为晚发的效应正符合复发性网络回路的沉淀过程。
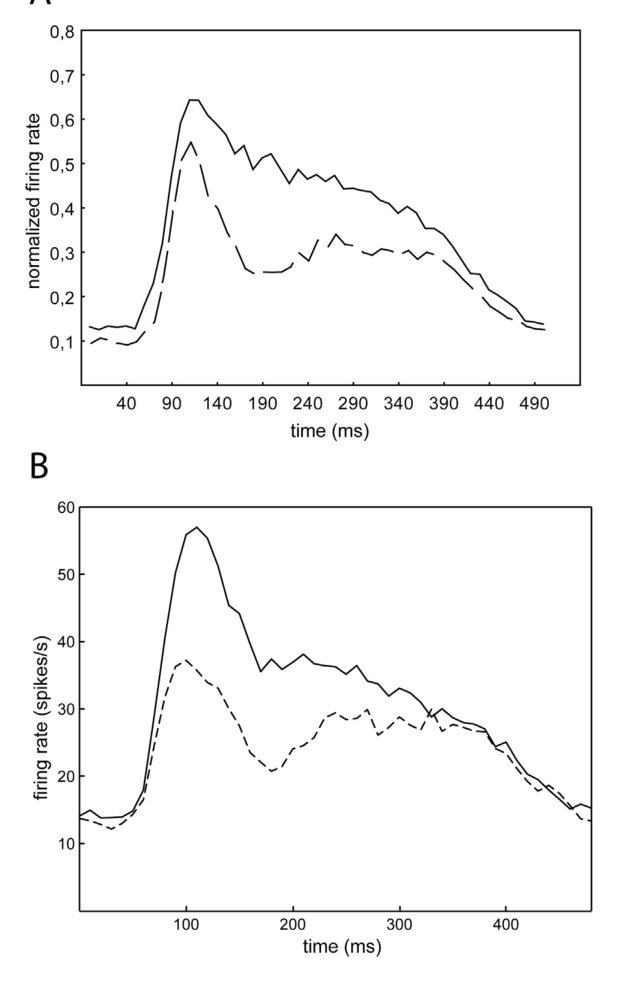
图 4 · 重复次数对抑制的累积
原文图注:Fig. 4 – Effect of presentation number on the adaptation effect of IT neurons. Mean responses as a function of the number of stimulus presentations (maximum = 29 repetitions of the same stimulus). Stimulus duration and interstimulus interval was 300 msec. The number of neurons decreased slightly for the higher stimulus presentations (n = 169 neurons or less). Data from Sawamura et al. (2006). Only responses to the most effective stimuli (out of 30) are shown.
解读:横轴是同一刺激被连续呈现的次数(最多 29 次),纵轴是平均反应(与首次呈现的反应相比逐次递减)。读图重点不是"下降"本身而是形状:第一次重复即引发最大单步降幅,此后每多一次重复的边际压低越来越小——效应随重复次数的缩放是非线性的。对机制假说的含义是:如果是线性累积的疲劳,我们应见更平直的曲线;这种"首效最大"的形状更接近输入侧压抑快速饱和的特性。此图支撑主要结果第 1 条的第三点。
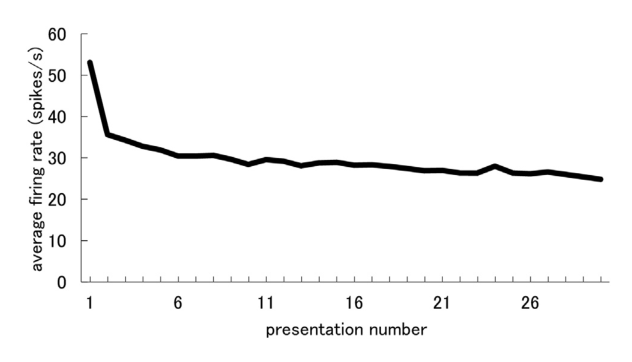
图 5 · 长间隔下的重复抑制
原文图注:Fig. 5 – Population peristimulus time histograms of IT responses to the adapter and test stimulus for an interstimulus interval of 600 (top; N = 22 neurons) and 900 msec (bottom; N = 21). The stimulus durations were 300 msec. The mean responses to the adapter and test stimulus are shown in full and stippled lines, respectively. Responses were first normalized with respect to the peak firing rate and then averaged across neurons. The responses were computed from data of the Sawamura et al. (2006) study. 0 corresponds to stimulus onset. No smoothing was applied. Bin width 10 msec.
解读:上(600 ms ISI,N = 22)下(900 ms ISI,N = 21)两行 PSTH 格式同图 3:实线为适配器、虚线为测试刺激,数据取自 Sawamura 研究的反应(先按峰值归一化再跨神经元平均)。两组实线与虚线之间的持续差距就是"间隔鲁棒"的图形证据——900 ms 时空屏后抑制仍在场,这与 V1 中 100 ms 间隔即适应消失的报告形成跨区域对照。此图支撑主要结果第 2 条,并构成"继承自早期区"假说的第一条裂缝:早期区的快消失特性装不下 IT 的长记忆尾巴。
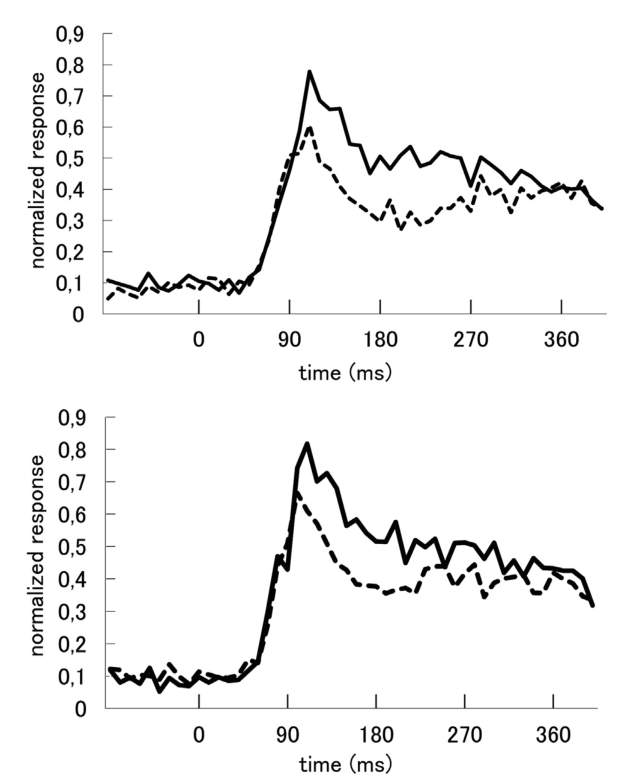
图 6 · 适应来源的示意图
原文图注:Fig. 6 – Schematic and simplified illustration of bottom-up and local network sources of adaptation. Circles represent neurons, left: areas providing input to IT; right: IT. Neurons with different color have different feature tuning. The neuron in black is the one recorded from. It receives direct input from the green colored neurons of the early area as well as lateral input from green colored neurons in IT. In addition, it receives input from a "dark blue" neuron. Connections within IT are bidirectional allowing recurrent interactions. An adaptation effect recorded in the "black" IT neuron can result from firing rate fatigue of that neuron. ……
解读:这张示意图把四种候选机制画进同一个电路,是讨论部分的地图。黑色圆是记录的 IT 神经元,绿色圆是调谐于当前刺激的早期区输入神经元与 IT 内神经元(注意 IT 内连接是双向的、允许复发性相互作用),深蓝色圆调谐于另一特征。逐条读:若适应来自黑神经元自体的放电率疲劳,那么无论其后哪种特征驱动它,反应都该被压制——即发生跨特征"交叉适应",这正是等效适配器实验所证伪的;若适应来自输入突触的压抑(削弱直接输入 w(a) 与间接侧向输入 w(l)),则只有调谐于绿色特征的输入被削弱,换用激发深蓝的特征刺激时抑制不再生效——这正是刺激特异性的来源;"继承适应"路径则指出同一抑制也可发生在上游;最后,若被适应的是示意中的抑制性 IT 神经元(浅蓝),记录神经元反而表现出"去抑制"式的增强。此图为第 3 条结论(疲劳不可、输入侧可行)与增强现象提供了直观解释。
讨论
作者的收束分两步。机制层面,他把现存证据归并为一句话:迄今没有直接的神经生理学证据反对"IT 的重复抑制主要由自下而上或局部网络机制实现"(图 6 左右两侧的输入侧与 IT 内机制),但他拒绝把证据外推到"机制已被证明"——突触压抑与输入网络假说都还缺在体(in vivo)的因果实验(现有证据来自离体记录等间接测量;突触压抑的强度依赖皮层状态与乙酰胆碱等神经调节物,且在灵长类可能弱于啮齿类)。概念层面,他主张以"重复先验(repetition prior)"理解这组现象:局部机制完好地编码了"世界在短时间内保持稳定"这一统计事实,这不同于自上而下的知觉预期/预测编码假说;实验中见到的重复概率效应(仅在面孔、字母等高度熟悉类别、且需注意参与)更可能反映注意性调制与对偏差刺激的惊讶反应,在特定条件下可与预期/惊讶相关的自上而下调制发生交互。功能假说部分引向"显著性调节器":适应选择性地压低重复刺激的编码,单神经元与小群体层面的判别在重复试验中下降、在"测试与最近见过的刺激不同"时反而上升(Kaliukhovich 等 2013),由此新异者"冒出来"(pop out)、获得更深的加工,这对以物体识别为己任的 IT 是既明智又代谢节约的策略。坦承的局限包括:位置实验只能排除 V1 及以内的继承、TEO/PIT 无法排除;注意等化的调光任务只能证明注意并非必要,不能排除选择性注意对适应的调制作业;以及短暂刺激与长时暴露、含间隔干扰的"启动式"研究之间的机制可能有别——本综述的结论只适用于短时程范式。
一句话总结
以我个人的理解,这篇综述的最大价值在于它把 fMRI 适应范式赖以搭起的假设——"适应的选择性=神经元的调谐"——在单细胞事实面前重新检验并大幅拆除:IT 的适应更像一种线路特性的产物,写在输入连接的选择性里,而不是写在该神经元的电池里。把 RS 与"预期/预测误差"脱钩的重复概率实验是我眼中全文最重的一拳;不过我也提醒,这些否定性结论大多建立在"统计不变性+排除法"之上,等直接刺激或电生理—药理联合实验入场,图 6 里那些被作者用图钉钉住的电路位置,恐怕还要再划几笔。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[A] - Fig2: 提取质量
good,对齐度full,识别面板[A, B] - Fig3: 提取质量
good,对齐度full,识别面板[] - Fig4: 提取质量
good,对齐度full,识别面板[] - Fig5: 提取质量
good,对齐度full,识别面板[] - Fig6: 提取质量
good,对齐度full,识别面板[]
关键事实与局限性声明
- 审校纠偏: {'classification': 'OVERCLAIM', 'claim': 'IT适应主要由自下而上或局部网络机制实现。', 'evidence_boundary': '现有数据与该假说一致,但突触压抑、复发网络输入和记录神经元自体疲劳的相对贡献均缺少直接在体因果检验。'} -> 评注:
- 审校纠偏: {'classification': 'OVERCLAIM', 'claim': '适应的功能就是降低旧刺激显著性并放大新异刺激。', 'evidence_boundary': '神经判别和分类分析支持这一功能假说,但原文明确将其称为推测,未直接测量知觉显著性或更深加工。'} -> 评注:
- 审校纠偏: {'classification': 'OVERCLAIM', 'claim': '等效适配器实验证伪了记录神经元自身疲劳。', 'evidence_boundary': '实验只表明纯放电率依赖模型不足,并支持其平均贡献较小;不能排除自体疲劳作为混合机制的一部分。'} -> 评注:
- 审校纠偏: {'classification': 'OVERCLAIM', 'claim': '人猴重复概率结果的差异由刺激类别而非注意造成。', 'evidence_boundary': '刺激熟悉度和注意均是候选因素,而且高度熟悉刺激可能通过自动注意影响效应。'} -> 评注:
- 审校纠偏: {'classification': 'OVERCLAIM', 'claim': '重复概率实验使RS与预测误差理论脱钩。', 'evidence_boundary': '结果仅证明所测试条件下RS不依赖重复概率,不能排除其他形式的预期、惊讶或自上而下调制。'} -> 评注:
- 补充要点: : (第 2 页)
- 补充要点: : (第 6 页)
- 补充要点: : (第 3 页)
- 补充要点: : (第 7 页)
- 补充要点: : (第 4 页)