IT Literature Intelligence 终审版本 (VERIFIED) 论文编号:
102| 原始基线:V0_ZCODE_BASELINE| 语义审核:pass| 图表审核:passAstra裁决:compromise_revision(revise)
Brain mechanisms of visual long-term memory retrieval in primates
Takeda · Neuroscience Research · 2019 · Zotero itemID=1069
这是一篇 Perspective(观点)综述,作者以自己及合作团队在猴颞叶联合记忆上的系列工作为主线,把视觉长时记忆提取的神经机制串成三个尺度:全脑网络、亚区与皮层分层、单神经元微回路。它值得读的原因在于一条清晰的统合性主张:不同尺度的神经元集群用不同频率的通信来对话——近距通信走 gamma 频段,跨区远程信号(尤其从记忆区反馈回视觉区)走低频段,两个方向各司其职。
研究背景
记忆研究的源头是神经心理学:1957 年 Scoville 与 Milner 报告的患者 H.M. 因治疗癫痫而接受双侧内侧颞叶(medial temporal lobe, MTL)切除,术后既不能形成新记忆(顺行性遗忘,anterograde amnesia),也无法提取术前几年获得的记忆(呈时间梯度的逆行性遗忘,retrograde amnesia),而智力保持完好。这确立了"记忆是独立于其他知觉与认知能力的功能",1997 年 Corkin 等又用 MR 成像精确标定了 H.M. 的切除范围(图 1)。此后心理学把记忆按阶段分为编码、存储、提取,按时程分为感觉记忆(不到一秒)、短时记忆(秒级、容量不足十个项目、可经组块 chunking 提升)与长时记忆,按意识参与分为陈述性(declarative,又分语义与情景两类)与非陈述性(procedural 等内隐记忆)。
脑机制层面,海马与内嗅皮层在长时记忆形成与巩固中的作用已被人类功能成像反复确认,MTL 记忆系统中各子区域的分工却争论不休;鼻周皮层(perirhinal cortex)作为腹侧视觉通路进入 MTL 的门户、语义记忆加工最被密集研究的区域之一,其角色是焦点之一。更关键的是,这些机制研究各守一个尺度:要么全脑成像,要么单神经元记录,缺一条把它们连起来的通路。作者认为连通多尺度神经回路的关键变量是"通信频率"——神经元、皮层分层与脑区之间以不同频段的同步来传递信号——并在评述中围绕它组织证据。
研究思路
作为综述,作者的组织策略是横跨四个空间尺度复盘同一套记忆行为。全脑层面:以人类 fMRI 的著名面孔测验与配联记忆学习实验回答"新近 learned 的记忆依赖哪里、远程记忆又依赖哪里"。这是配联记忆(pair-association memory):被试先学会 24 个视觉刺激的两两配对,之后每试次呈现线索(cue),延迟后从两个选项中选出与线索配对的目标(图 2),是语义记忆的一种范式化形式。微尺度(microscale)层面:评述鼻周皮层 36 区(area 36, A36)中"持有线索"与"回忆配对物"两类细胞的发现与其连接方式。更深入一层是分层尺度(laminar scale):把记忆神经元归位到六层结构的哪一层,看表征在层间如何转换。最后是亚区间尺度(inter-area):在 A36(较高级)与 TE 视觉区(lower-order visual area)之间同时记录,看提取时自上而下的信号如何流动。各尺度的证据按此顺序推进,最后汇成一个跨频段通信模型。
方法
这篇文章本身是综述,没有单一实验的"被试与扫描",其"方法"实为所引各研究的手段清单。全脑尺度:人类 fMRI(著名面孔测验;配联任务的远程 vs 新近对比;心理生理交互的多体素模式分析),以及非人灵长类 fMRI 与药理失活(猴元记忆任务里用 fMRI 定位加 muscimol 注射,检验额叶区对"信心评分"的必要性)。微尺度:四探针(tetrode)同时记录 A36 的多单细胞,配合 Granger 因果分析(Granger causality)推断神经元间的定向信号流。分层尺度:电流源密度分析(current source density, CSD)刻画跨层数据;高分辨率 MRI、组织学与电生理三者配准,把记录电极尖端定位到 Nissl 染色的六层结构上。亚区间尺度:A36 尖峰记录与 TE 多触点层状场电位(local field potential, LFP)记录同步进行,作 A36 尖峰—TE LFP 相干分析,并用视觉皮层 ECoG 电极阵列(128 通道皮质脑电图网格)考察跨信号的解码。刺激与分析要点在引文中已经包括: theta/gamma/beta 频段相干、尖峰—低频相位锁定、以及幅度—相位耦合(phase-amplitude coupling, PAC)等跨频耦合度量。
主要结果
-
记忆巩固在大脑网络层面呈时间梯度。著名面孔测验发现海马只支撑学习后数年内的记忆巩固,内嗅皮层则支持多年之后的记忆(Haist 等,2001);用配联任务把八周前与训练前刚学的配对比较,海马对新近记忆激活更强,而前颞叶皮层对远程记忆激活更强——这是颞叶皮层形成稳定长时记忆所需表征的直接证据(Yamashita 等,2009)(图 3)。
-
远程记忆在颞叶内的"分工—协作"结构。Watanabe 等 (2012) 用面孔与场景两类配对刺激发现:提取远程记忆时,不同类别的刺激各自激活后颞叶的类别特异区域,而前颞叶区域与类别无关;多体素心理生理交互分析表明这些后颞叶区域与类别无关的前颞叶区在远程记忆提取时交互。后颞叶负责表征并提取类别特异的远程记忆,前颞叶负责与类别无关的提取。
-
微回路里记忆提取是一条级联。A36 中有一类细胞从线索呈现起持续放电(cue-holding,持线索神经元),另一类随回忆配对物临近而放电渐强(pair-recall,配对回忆神经元,可在需要时动态出现或消失)。四探针记录与 Granger 因果分析显示:延迟期内定向耦合主要在 gamma 频段、从持线索神经元流向回忆神经元,且回忆神经元彼此之间还有单向信号流——记忆细胞组装间存在瀑布式的信号传播(Hirabayashi 等,2013)。理论模型(Mongillo 等,2003)补足了机制:学习使相连的细胞群间突触增强,使" prospective"活动——即对应图像对的细胞群在视觉刺激之前就被激活——其出现概率由训练期配对频率决定。
-
表征从线索到目标在 L5→L6 转换,且 L6 是长距输出。用 MRI—组织学—电生理配准法把 A36 记忆神经元归位后,Koyano 等 (2016) 发现:从呈现的线索对象到待回忆对象的表征转换首先发生在第五层、继而在第六层完成;L5 神经元同时编码线索与目标、代表"整对"物体,而 L6 一个子集只编码被寻找的目标,并锁相到周围场电位——这种协调的细胞组装可能正是把已提取目标做皮层远距输出的载体(图 4)。
-
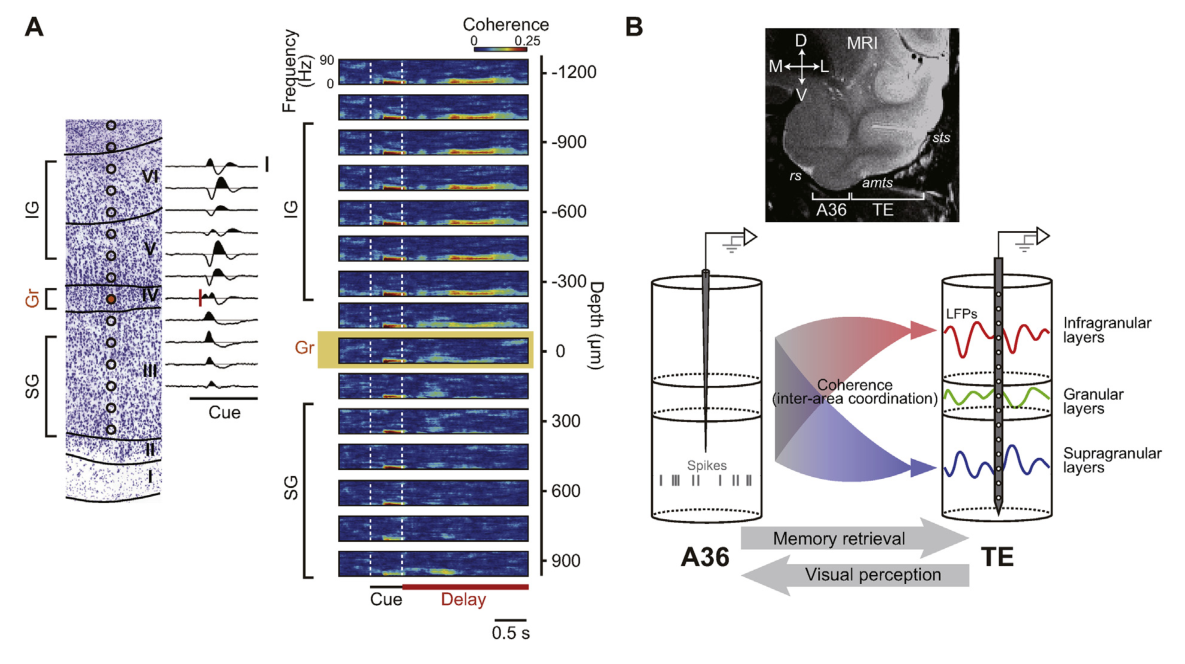
A36 经低频相干向 TE 反馈,且行为相关。Takeda 等 (2015) 在延迟期内同时记录 A36 尖峰与 TE 分层 LFP,发现记忆提取阶段 A36 尖峰与 TE 低频段 LFP 相干、尖峰超前于 TE LFP 波谷,时序符合两区间的传导延迟;A36 神经元分成两股,一股与 TE 颗粒上层(supragranular)LFP 相干、另一股与颗粒下层(infragranular)相干,均绕开颗粒层——这与解剖上反馈投射不终止于颗粒层的模式吻合。功能性上,将“A36 尖峰触发的 gamma 振荡在 TE 薄层最明显”替换为“A36 尖峰触发的 gamma 振荡在 TE 颗粒上层(supragranular layers)最明显”。,与 TE 颗粒下层低频相干的尖峰又与 TE 的 gamma 能量耦合,且该耦合在正确试次显著强于错误试次:从 A36 流向 TE 颗粒下层的信号才可能调制 TE 颗粒上层活动、促成成功提取(图 5)。补充证据:ECoG 阵列显示 TE 到 MTL 的大多数通道在 theta 频段有刺激选择性,且每个配对的两个成员诱发相似的 theta 空间模式,跨试次解码在 A36 与 TE 显著高于机会(Nakahara 等,2016)。
图注解读
图 1 · H.M. 的 MRI Evidence:哪些结构被切除了
原文图注:Fig. 1. MR images of H.M. The series of T1-weighted MR images arranged from rostral (A) to caudal (F) through the temporal lobe of H.M. (left) and a control subject (right) are shown. The control brain illustrates the structures that are likely to have been eliminated in the brain of H.M. at each rostrocaudal level. A, amygdala; EC, entorhinal cortex; cs, collateral sulcus; PR, perirhinal cortex; H, hippocampal formation; f, fimbria; Cer, cerebellum; V, ventricle; MMN, medial mammillary nucleus.
这张图是开篇的"历史桥梁":六个从头端向尾端的 T1 加权 MR 冠状切面,左列为 H.M.、右列为一名 66 岁对照,用对照脑把 H.M. 在每个前后水平上可能被切除的结构一一标示(杏仁核 A、内嗅皮层 EC、鼻周皮层 PR、海马结构 H 等)。它支撑背景段对 H.M. 遗忘症证据的叙述——正是这套结构缺失图谱把"双侧内侧颞叶切除"与记忆丧失固定在了脑区层面(引 Corkin 等 1997)。
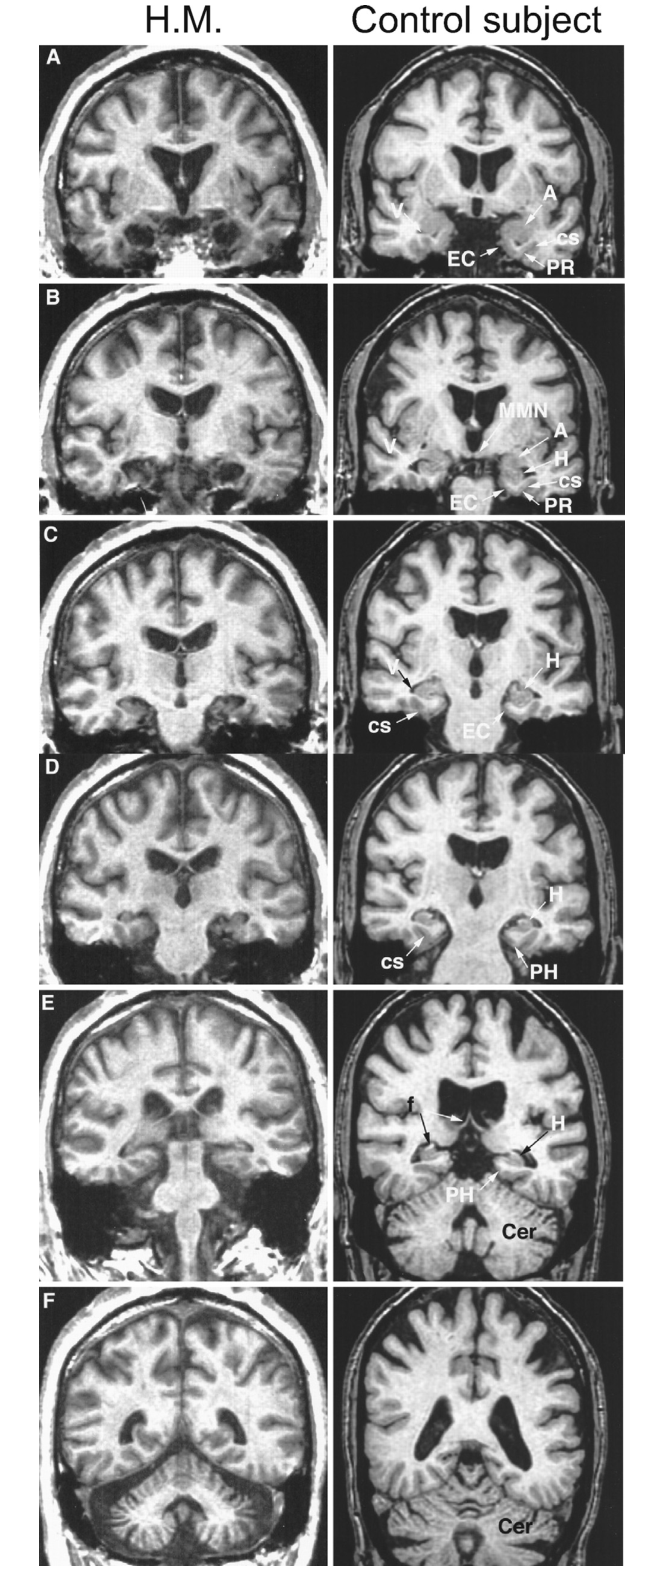
图 2 · 配联记忆任务范式
原文图注:Fig. 2. Shema of the task for pair-association memory. In the task, subjects learn the pairing of visual stimuli (e.g., stimulus 1 and stimulus 1′). In each trial, following the presentation of a fixation point, a cue stimulus (one of the 24 visual stimuli) is presented. After a delay interval, two choice stimuli are presented, one of which is the paired associate of the presented cue stimulus, and the other is a distractor. Subjects are required to correctly select the paired associate. This task, with slight modifications, was used in the studies referenced in Figs. 3–5.
这张任务示意图是全篇的实验主干:注视点出现→呈现线索(24 个视觉刺激之一)→延迟间隔→两个选项中出现配对物与干扰物,被试需选出配对物。读图要抓两点:一个"试次"里既有感知(线索)又有记忆(延迟期内部提取),所以"线索期活动"与"回忆期活动"可以在时间上分开测量;人类 fMRI 研究与猴异时程的神经记录用的都是该范式的微调版(原文注明确说 Figs. 3–5 的研究都基于它)。因此它是理解后面三张图时间结构的必要铺垫。
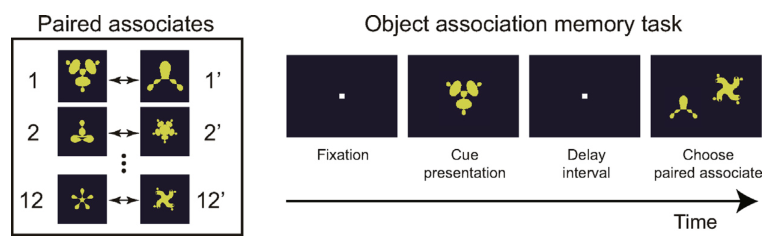
图 3 · 新近 vs 远程记忆提取的激活图
原文图注:Fig. 3. Activation maps for the contrast of recent versus remote trials (top) and remote versus recent trials (bottom) in the pair-association memory task. Significant activation in the right hippocampal region (top, right) and the left anterior temporal region (bottom, left) are indicated by green arrows. Adapted from Yamashita et al. (2009).
这张图上、下两行分别是"新近 > 远程"与"远程 > 新近"的全脑激活对比:前者右侧海马区显著,后者左侧前颞区显著,绿箭头标出。读图要紧的对照是两条时间维度:同样是成功提取,刚学的配对靠海马、八周前学的配对靠前颞皮层。它支撑结果 1——巩固存在时间进程,且不是笼统的"海马管一切",而是海马的经营期让位于皮层网络中的稳定表征(引 Yamashita 等 2009)。
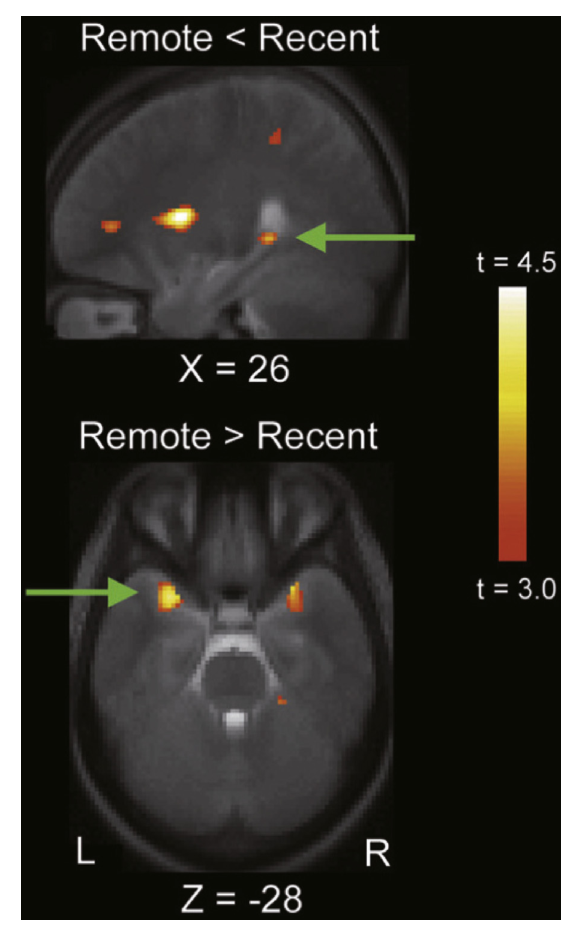
图 4 · A36 跨层记录:线索编码与目标编码的分层转换
原文图注:Fig. 4. Distinct dynamics of cue- and target-stimulus coding across layers. (A) Nissl-stained section of A36 showing the six-layered structure. (B and C) Time courses of the (B) cue-holding index and (C) pair-recall index for all the stimulus-selective neurons in each layer. (D) Plausible laminar module cascade for cued recall of visual objects. In the circuit, L5 neurons implement the coding of both cue and target information during retrieval and thus represent the relevant "pair" of objects, whereas a subset of L6 neurons implement the more exclusive coding of the retrieved target and thus most unambiguously represent the behaviorally relevant sought target.
(A) 是 Nissl 染色的 A36 六层结构剖面;(B)(C) 分别按层给出"持线索指数"与"回忆指数"的时间进程,从中可读出:线索持有与配对回忆两种编码在不同日期层间分布不同,表征转换先在第五层、随后在第六层发生;(D) 是这一级联的示意——L5 编码"整对",L6 子集只编码被寻找的目标并锁相到周围场电位。这张图支撑结果 4:同一处理过程有明确的层依赖分工,而第 6 层的存在正对应"长距输出"的解剖学常规。
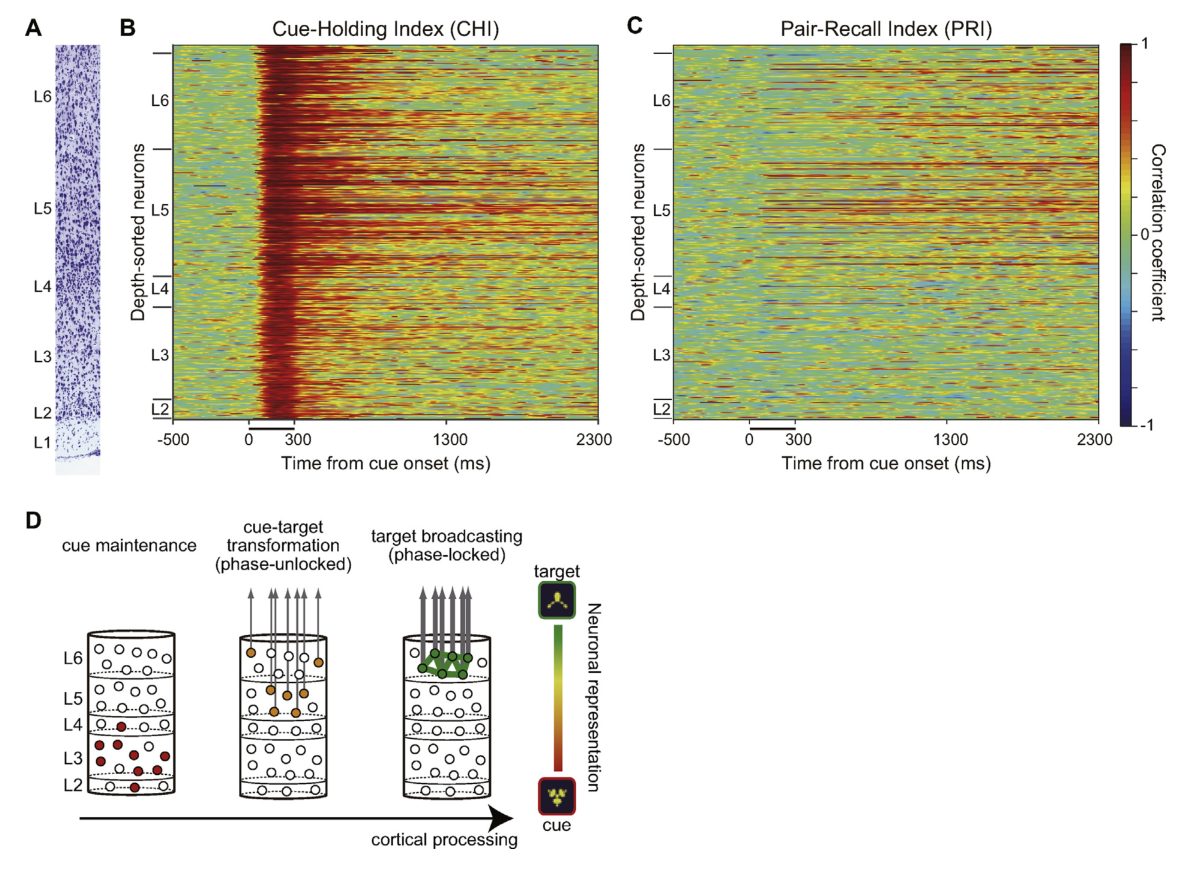
图 5 · A36 与 TE 之间的跨区间信号流
原文图注:Fig. 5. Cortical circuits for the retrieval of visual long-term memory in the temporal cortex. (A) An example of inter-area coherence between A36 and TE. (A, left) Nissl-stained histological section and current source density profile. (A, right) Depth profile of inter-area coherence between A36 single unit activity and TE local field potential. Recording depth relative to the granular layer (Gr) is shown on the right side. IG, infragranular; SG, supragranular. (B) Summary of the inter-area signals for memory retrieval between A36 and TE. Most neurons in A36 depict coherent activity with TE LFP either in the infragranular or supragranular layer, but not in the granular layer. Note that this functional signal flow appears to match the anatomical projections of feedback signals; the cortical inter-area feedback projection is known to target mainly the infragranular or supragranular layers, whereas feedforward projections mainly target the granular layer.
(A) 的深度剖面图显示 A36 单细胞活动与 TE LFP 的相干如何按记录深度分布:相干出现在 TE 的颗粒上层与颗粒下层,避开颗粒层(Gr 两侧为 SG 与 IG 的分层标识)。(B) 用示意图总结 A36 走两股通路向 TE 投射的功能信号流,并点出它与"反馈投射不进颗粒层"的解剖规律吻合。这张图支撑结果 5:自上而下的记忆反馈信号通过低频相干从 A36 流入 TE 的颗粒下层、进而调制颗粒上层活动,且调制强度耦合随行为正确与否增减。
讨论
总结部分(第 3 节"探索记忆加工的中心法则")把前述证据收拢进三个相互关联的关键概念:神经元组装配用的通信频率、皮层层状模块、以及信号的分级方向。距离是通信频率的主要决定因素:鼻周皮层中相邻的记忆神经元用 gamma 频段做定向信号传递(Hirabayashi 等 2013, 2014),前额—顶叶间的工作记忆用 12–22 Hz 的 beta 相干(Salazar 等 2012),而 A36 与 TE 之间的长时记忆提取以 beta 相干为载体(Takeda 等 2015)。跨频段的互动则借助 PAC(低频振荡的相位调幅高频能量)来设想——V1 已有"深层 alpha 相位耦合浅层 gamma 幅度"的实证(Spaak 等 2012),作者推测鼻周皮层在记忆加工中可能存在类似机制。再结合分层解剖学(feedforward 投射主要终止于颗粒层、feedback 避开颗粒层),作者提出一条候选假说:gamma 频段的亚区间同步可能介导前馈信号、beta 频段的同步介导反馈信号,而实际数据中"长时记忆提取依赖 A36→TE 的 beta 频段反馈交互"正是对后半句的支持。作者也明确列出待解决的问题:研究颞叶前馈信号的"关键频率",以及在皮层分层分辨率上呈现前馈与反馈信号互相作用的回路机制。此外,作者坦承对题叶各区域分布式记忆表征的"全图"所知有限——记忆形成到底伴随全区范围的集体重组、还是仅限于局部微回路可塑性,仍因记录手段难以同时满足高时间分辨率与广空间覆盖而无定论——这也是这幅多尺度图景需要继续拼合的原因。
一句话总结
作为一篇综述,它真正有味的地方在于把"频率当作通信协议"来用:相邻神经元说 gamma,远距离反馈说 beta/theta,中间靠相位—幅度耦合衔接——记忆提取因此变成一个跨频段的"传话"问题而非哪个区域的"开关"问题。我的理解是,这个框架最有力的证据仍是 A36→TE 的那条 beta 反馈链;theta 空间模式与 PAC 部分更像方向性的展望而非已定结论,读者应区分这两档证据强度。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[] - Fig2: 提取质量
good,对齐度full,识别面板[] - Fig3: 提取质量
good,对齐度full,识别面板[] - Fig4: 提取质量
good,对齐度full,识别面板[A, B, C] - Fig5: 提取质量
good,对齐度full,识别面板[A]
关键事实与局限性声明
- 审校纠偏: 相邻神经元说 gamma,远距离反馈说 beta/theta,中间靠相位—幅度耦合衔接 -> 评注:
- 补充要点: Takeuchi et al. (2011) 层间信号流在感知(前馈)与记忆延迟期(反馈方向反转)之间的反转——2.3 节的标题性发现,MD 未陈述其结果(见 ISSUE_002)。
- 补充要点: Miyamoto et al. (2017) 元记忆的因果性 muscimol 失活结果及其脑区定位(area 9 + SEF)未进入结果叙述(见 ISSUE_003)。
- 补充要点: Watanabe et al. (2012) 的分析方法在原文中为“psychophysiological interaction 的多变量模式分析(MVPA of PPI)”,MD 写为“多体素心理生理交互分析”,含义基本对应但建议标注方法全称以免与一般 PPI 混淆。
- 补充要点: Nakahara et al. (2016) 的 ECoG 网格植入位置(前中颞沟 anterior middle temporal sulcus 硬膜下)未提;非关键,但有助于理解“TE 到 MTL 通道分布”的空间覆盖。