IT Literature Intelligence 终审版本 (VERIFIED) 论文编号:
074| 原始基线:V0_ZCODE_BASELINE| 语义审核:needs_revision| 图表审核:passAstra裁决:compromise_revision(revise)
Local features drive identity responses in macaque anterior face patches
Waidmann · Nature Communications · 2022 · Zotero itemID=855
一句话定位:面孔网络前端补丁(AM 与 AF)一直被认为是把整张脸"看成一个人"的整合站点,这篇文章用一套把猕猴照片的眼睛、嘴、头部、身体像扑克牌一样重新洗配的刺激,给出了一个相当反直觉的答案——这两个前部补丁的神经元主要被局部特征(尤其是某只猴的一双眼睛)驱动,对特征组合几乎不敏感。它值得精读,因为它用干净的控制实验把"高层面孔身份编码建立在局部特征神经元之上"这个命题做实了,直接挑战了"前端=整体加工"的层级直觉。
研究背景
灵长类面孔共享一个一阶构型(first order configuration):成对的眼睛位于鼻子和嘴之上,并嵌在头部与身体之中。人类面孔识别的心理物理学研究长期在争论两类线索的相对权重——局部特征细节(local features,如眼睛、嘴的形状)与这些元素在整个面部和头部中的空间构型(configuration,即 configural/holistic processing,整体或构型加工)。行为证据偏向构型加工:交换甚至轻微移位内部五官都会严重破坏身份识别,面孔倒置效应也被解释为加工退回到基于特征的策略;基于抽象"面孔空间"的心理物理学框架同样把身份变化理解为连续几何畸变。
猕猴单细胞研究的证据却是混合的。PL(posterolateral)面孔补丁作为网络入口,许多细胞对对侧眼有特异调谐;中部面孔补丁的神经元既调谐局部特征细节也调谐其几何排列,且对面孔倒置敏感,提示整体加工参与;而前端被认为更高阶——AM 补丁的神经元能以视角不变的方式编码面孔身份,用连续渐变形真面孔做的研究(在 AM 与 AF)也强调连续几何畸变在身份调谐中的作用,这更接近构型分析而非部件分析。由此形成了一个教科书式的图景:PL 处理细节,中部过渡,AM/AF 处理整体与构型。缺口在于:此前研究从未系统地检验过前端补丁的身份调谐里,整体加工与部件加工各自贡献几何——前端身份调谐是否可能部分地由局部特征驱动?这个问题正是本文要回答的。
研究思路
作者的策略核心是一套"再组合"(recombination)刺激:从十张正面朝向的高分辨率猕猴照片上,把每个个体裁成四个部件——眼睛(含眉、额与周围皮肤的上内脸)、嘴(含唇、下颌与鼻的下内脸)、外脸(outer face,含耳朵与头的轮廓)与身体——然后系统性地两两洗配,生成四类交换组合:眼睛×嘴(内脸)、内脸×外脸(头)、头×身体(整猴)、猴×背景场景(完整图像)。这一设计的巧妙之处在于"语境不变的身份控制":每个局部特征都能在多个其他个体的语境里重复出现,因此可以区分"细胞在响应某个特征本身"还是"响应特征的某种组合/整体构型"——如果在洗配之后细胞反应仍由特征身份决定、而特征组合项解释不了多少方差,整体编码假说就被证伪了。
第二条思路是升级检验力度:如果局部特征真的主导反应,那么仅凭对孤立特征的反应就应该能定量预测对完整自然图像的反应。作者为此设计了三步递进的分析(语境对比、线性回归、特征"移植"进完全不同的身份与场景),并在最后补充一个眼睛×图像语境实验,把眼睛从原图中挖出移植进五个完全不同的整图语境,观察调谐是否保持。这个逻辑链从"是不是局部主导"一路推进到"局部主导到什么程度"。
方法
被试为四只恒河猴(WA、MA、SP、MO),均植入 MRI 兼容的头柱与慢性微丝电极束(microwire brush arrays,可跨天稳定追踪同一神经元数周):WA 与 MA 的 64 通道电极植入左侧 AM,MO 植入左侧 AF,SP 植入右侧 AF(下移 125 µm 后得到第二个记录位群 SP2)。面孔补丁先用 4.7 T 磁共振以分块设计功能定位(面孔/电影 vs 物体、场景、打乱面孔对比),再在立体定位引导下植入电极。正式记录时猴子头固定注视 4K OLED 屏中央白点(注视超出 2° 即重来),刺激随机交织、以 400 ms 呈现 / 300 ms 空屏的方式分块播放。
刺激与试次规模很大:450 张图像(400 张再组合图 + 50 张部件单独图)各做三种尺寸(头宽 3°/6°/9°),共 1350 张,每张至少呈现 10 次,合计 13,500 试次,分 1–2 周完成;分析取刺激呈现后 70–350 ms 的放电数,基线取呈现前 150 ms 至后 50 ms。每天还播放 60 张"指纹"图像,用波形相似性与刺激选择性模式跨天确认是同一神经元。核心分析是对每个交换类别做双向方差分析(two-way ANOVA),把反应方差分解给两个交换因子与它们的交互项(interaction,即特征组合);再按主导特征把细胞分为眼睛选择性(n=48)、嘴选择性(n=23)、外脸选择性(n=64)三类亚群做后续相关与回归。共记录 403 个神经元,其中 208 个为面孔选择性(AM 80 个,AF 128 个,单向 ANOVA p<0.05)。
主要结果
-
单个神经元强烈调谐于单一局部特征,组合几乎不贡献方差。示例 AM 神经元 WA-057_1 的反应由来自 m9 的眼睛决定,无论这双眼睛配什么嘴、什么头、什么身体、什么场景(Fig. 2a, b);该细胞反应方差的 38.5% 归于眼睛变化,嘴只占 1.9%,二者交互仅 0.2%。类似的还有只对含 m4 嘴的图像反应的 AF 细胞(嘴解释方差 0.47)与被外脸 1 和 9 强驱动的 AF 细胞(外脸解释方差 0.34)(Fig. 2c, d)。
-
群体层面呈三轴分布,交互项普遍很低。对 208 个面孔选择性细胞逐一做方差分解后,大多数细胞被单一特征主导(Fig. 3a);三类亚群中主特征的平均解释方差显著高于次特征(眼睛亚群:eyes 0.18 vs mouth 0.02;嘴亚群:mouth 0.26 vs eyes 0.02;外脸亚群:outer 0.16 vs inner 0.04;Wilcoxon 符号秩检验,p 值如 5.15e-16、2.12e-08、1.69e-16 等)(Fig. 3c),全部细胞的"眼睛—嘴—外脸"方差散点几乎落在三条轴上(Fig. 3d)。AM 两个记录位以眼睛选择性细胞为主(22/44 与 24/36),AF 的调谐更异质:一个位以嘴选择性为主(19/36),另两位以外脸为主(19/37 与 25/55)。"外脸"调谐在 AF 占比高是意外发现,因为沟底补丁按传统理解应特化于眼睛、嘴这类携带动态社会信号的可变特征,而外脸是身份的固定线索。
-
局部特征反应定量预测整图反应。把眼睛亚群按各自最强眼睛身份偏好排序后,其眼睛调谐模式与内脸、头、整猴乃至猴×场景图像的反应矩阵高度相关(Fig. 4a–c)。回归分析给出更硬的数字:眼睛亚群的平均"眼睛反应"对"整猴反应"的线性回归 r²=0.92,嘴反应只有 0.55(Fig. 4e);群体上主特征对整猴反应的回归系数中位数接近 1.0,且在所有调谐类型中都显著高于对应次特征(Fig. 4f)。换句话说,对重组内脸中同一眼睛跨不同嘴搭配求平均所得的反应,可较准确地预测含有该眼睛的完整猴图像跨背景场景平均后的反应(Fig. 4)。孤立眼睛与移植后整图之间的调谐一致性,则由Fig. 5的补充实验另行支持。
-
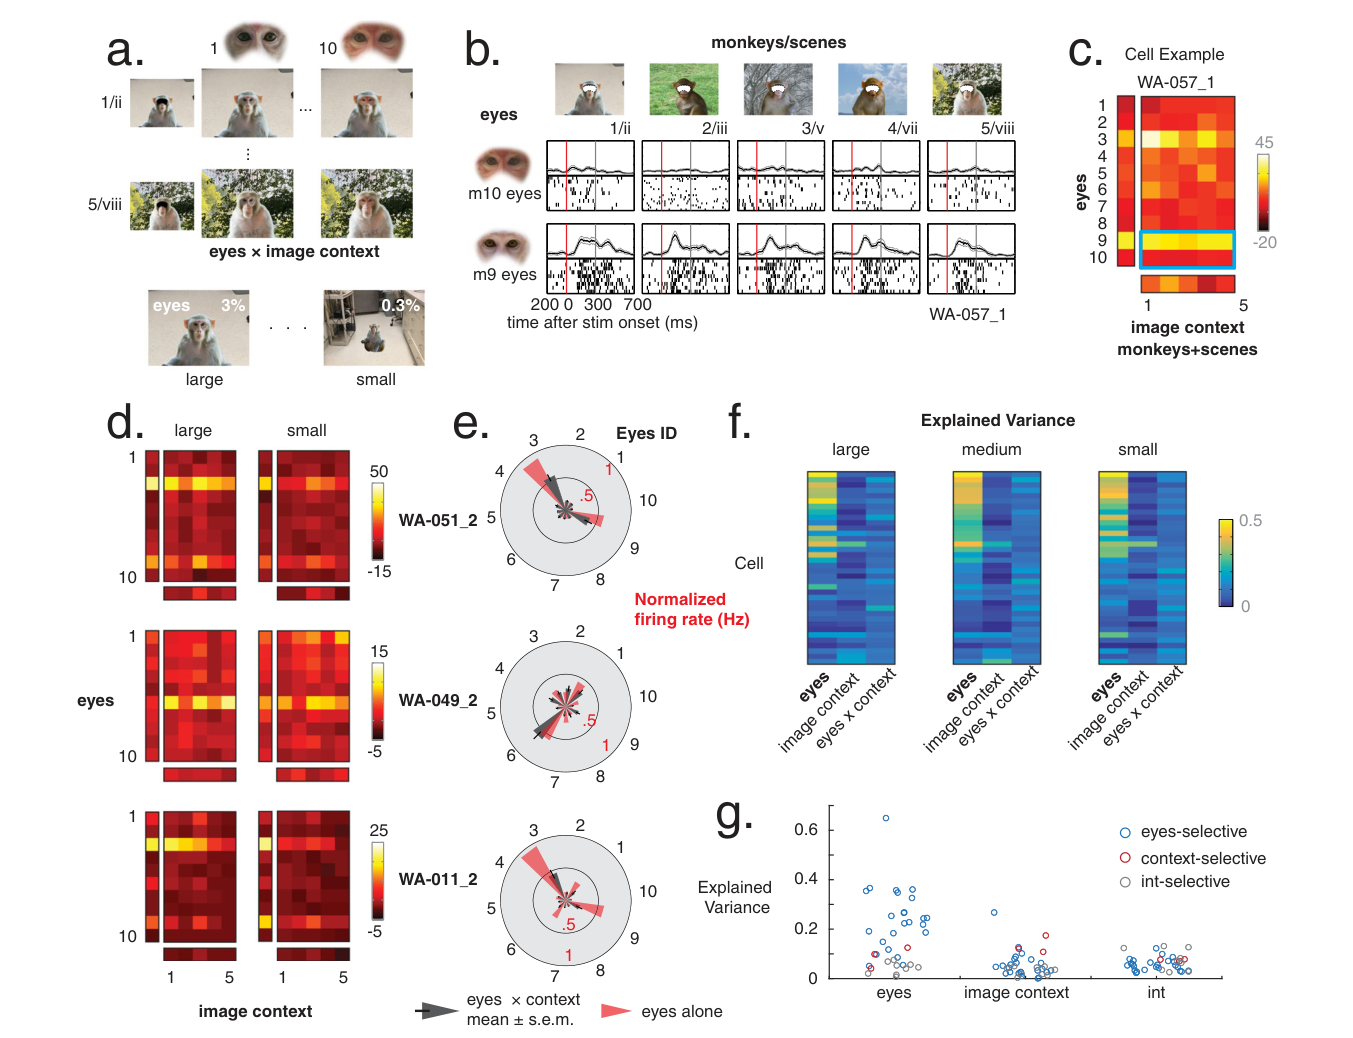
移植实验把结论推到极端。在以眼睛调谐为主的 AM 位点补做的眼睛×图像语境实验(36 个单细胞,不做筛选)中,来自 10 只猴的眼睛被移植进 5 个完全不同的整图语境:细胞仍由眼睛身份驱动,语境几乎不起作用(示例 WA-057_1:eyes 解释方差 0.36,语境 0.03,交互 0.05)(Fig. 5b, c, g;eyes 选择性 n=24 vs 语境选择性 n=3)。而且这种调谐在图像线性缩放三倍(眼睛在最小刺激中仅占整图像素的 0.3%,最大时约 3%)时依然保持(Fig. 5f)——主导反应的特征可以只是画面上一小撮像素。
-
孤立部件与组合部件的反应大体相当。对部件选择性细胞比较"部件单独呈现"与"部件嵌入组合"的反应,多数部件在两种条件下表征大致相似(Fig. S5);嘴与外脸亚群对某些组合条件有轻微但显著的偏好(t 检验 p<0.01),但身份调谐的主导来源仍是局部特征本身。
图注解读
图 1 · 重组刺激的设计总览
原文图注:Fig. 1 | Recombined parts stimuli. a Photograph of one macaque monkey broken down into component parts. Eyes and mouth compose the inner face, outer and inner face compose the head, and body and head compose the full monkey. … d Parts from monkeys 1 and 10 systematically recombined into the four swapping categories: eyes × mouth, inner × outer face, head × body, and monkey × scene. e The three stimulus presentation sizes for each swapping category, and central fixation point (white dot) with permissible fixation window (yellow line; not visible to the monkey). … f Functional overlay of face patches AF and AM from two monkeys, with tracts of chronic recording electrodes (blue arrow) and the targeted patches (white arrow) indicated.
这张图是整个刺激系统的"说明书":a 面板展示一只猴被拆解成眼睛、嘴、内脸、外脸、头、身体的层级;b、c 给出构成刺激库的十张正面猴脸照片与十张背景场景照片;d 用猴 1 与猴 10 的部件演示四种交换类别如何两两组合,说明每类各产生 100 张新图;e 标出三种呈现尺寸与注视窗;f 用功能磁共振叠加重建显示 AF 与 AM 补丁位置和慢性电极的植入路径。读图重点是理解 d 的组合逻辑——横轴与纵轴各是 10 个个体身份,交叉点即一张杂交图,这使得"特征身份"与"特征语境"在实验上被正式分离。它支撑的是方法部分的设计逻辑与主要结果第 1 条的前提:反应若由局部特征决定,那么同一特征在不同语境下应给出一致的反应模式。
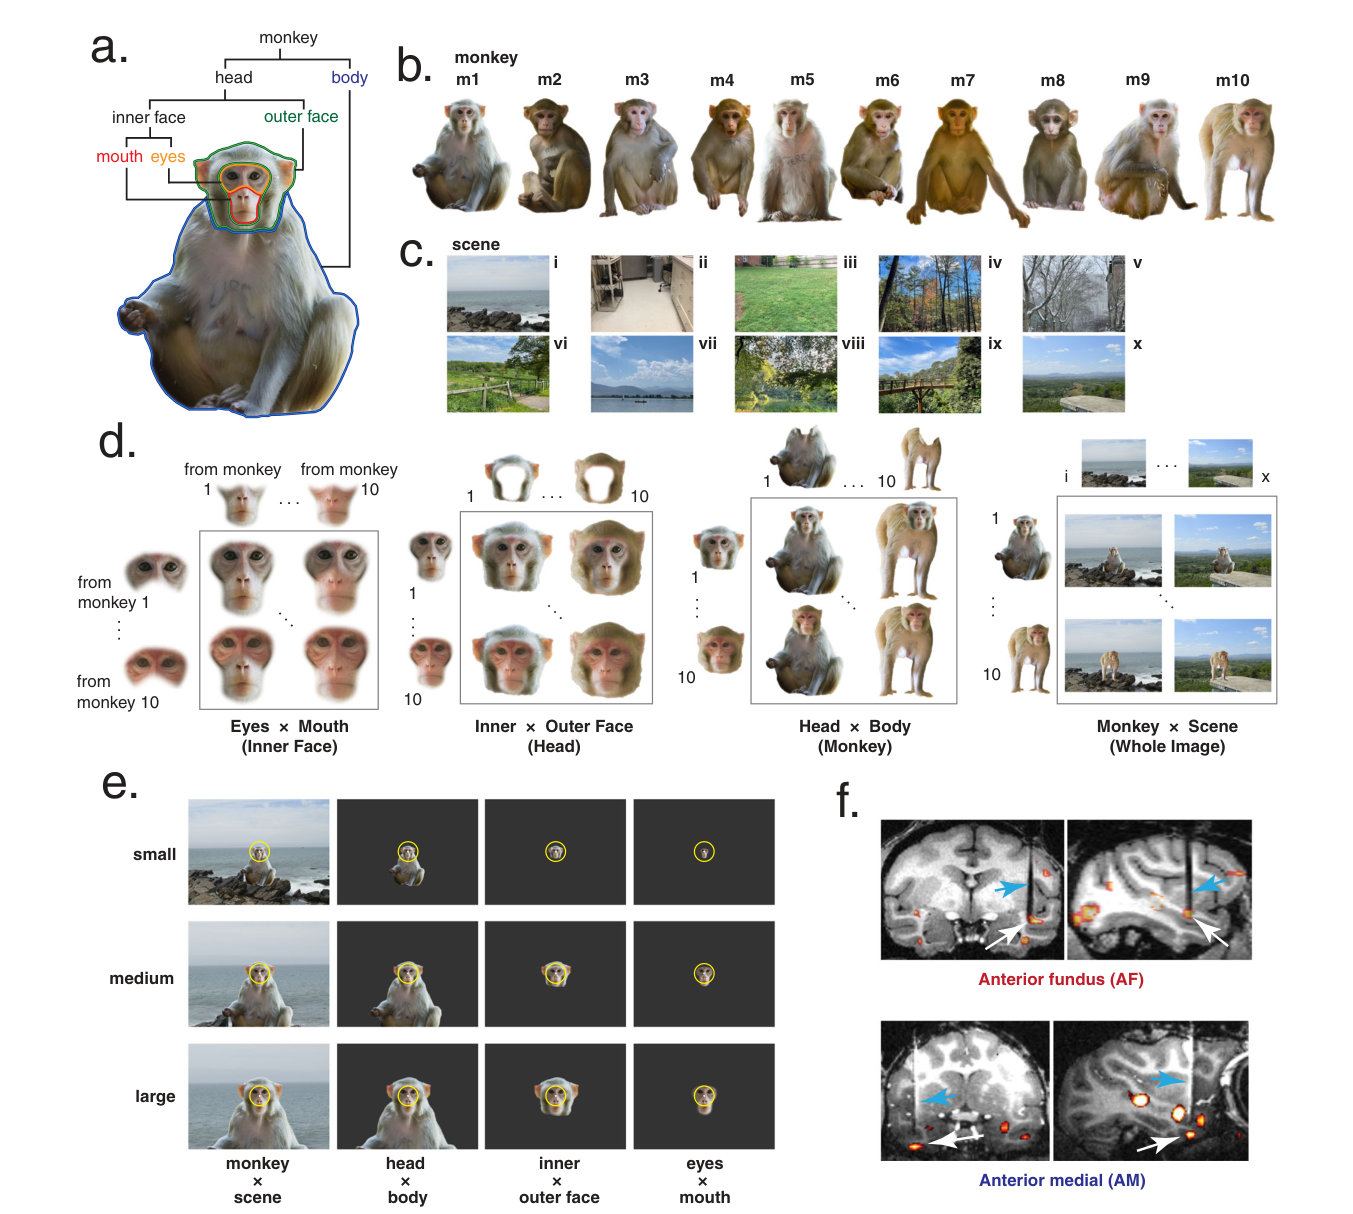
图 2 · 单细胞对局部部件的强烈调谐
原文图注:Fig. 2 | Individual face-selective neurons show strong tuning to single local facial parts. a Raster plots showing response of one typical AM neuron (WA-057_1). From left column: response to eyes × mouth stimuli (eyes from monkeys 9 and 10, recombined with mouths from monkeys 1 to 5. Subsequent columns: responses to inner × outer face, head × body, and monkey × scene stimuli from monkeys 9 to 10. b Heatmaps of AM neuron WA-057_1 average firing rate in response to large stimuli of all swapping categories; responses to combined stimuli in central square heatmaps, parts alone stimuli in flanking rectangle heatmaps. Responses in a outlined in blue. Tuning to eyes persists across swapping categories. … c Heatmaps of AF cell MO-074_1 responses to all small stimuli. Persistent tuning for stimuli that contain mouth 4. d Heatmap of AF cell SP-037_1 responses to all small stimuli indicating a strong preference for outer faces 1 and 9.
图 2 用三个代表性细胞展示"局部主导"在单细胞水平的样貌。a 的栅格图以时间(刺激前后 −200 到 700 ms)为横轴、试次为纵轴,每个小栅格块对应一类组合刺激;WA-057_1 的竖直反应带只随眼睛身份(m9 vs m10)切换,与嘴、外脸、身体、场景的搭配无关。b 把同一细胞的平均放电率画成热图(纵轴放电率 0–50 Hz),中央方块是组合刺激、两侧是部件单独刺激,可见眼睛的调谐贯穿所有交换类别。c、d 分别展示对"嘴 4"和"外脸 1、9"执着调谐的 AF 细胞热图。这张图直接支撑结果第 1 条,也是全文最直观的证据:如果这些前端细胞真在做整体编码,同一刺激集里应当看到"组合专属"的强反应行,而实际看到的是由单一部件决定的整齐条带。
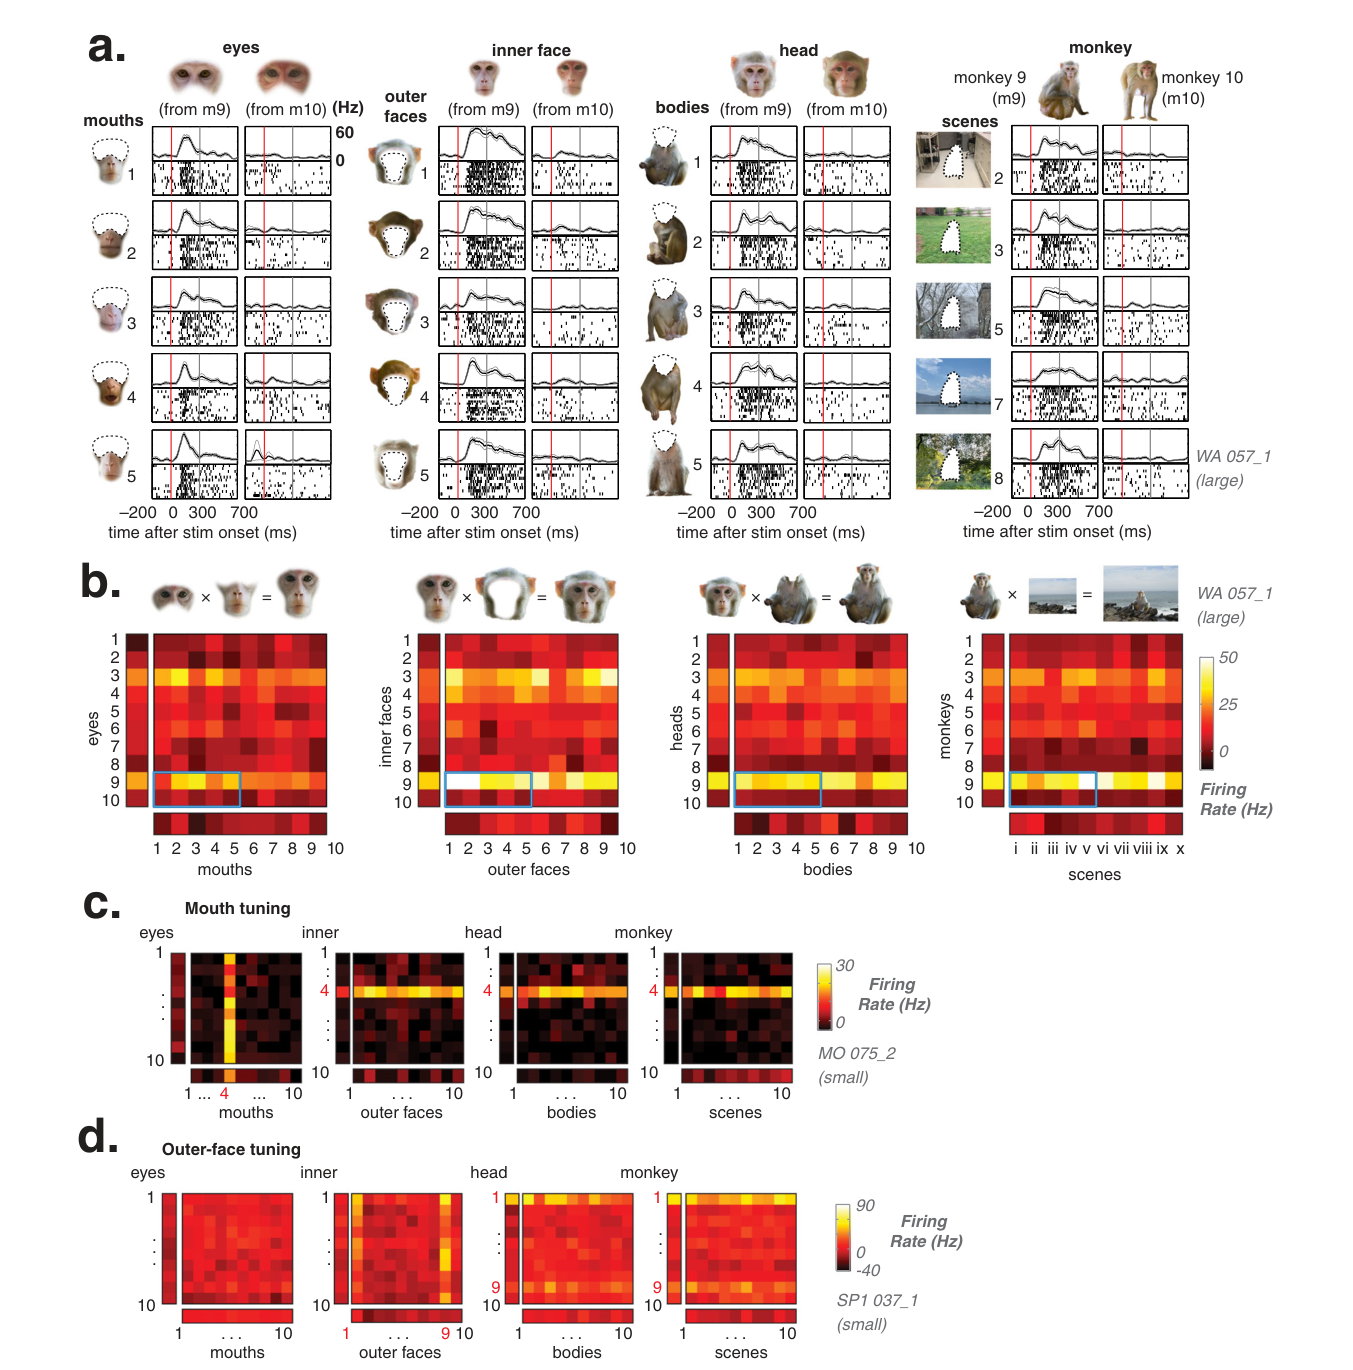
图 3 · 群体方差分解:单一特征主导、交互项可忽略
原文图注:Fig. 3 | AM and AF neurons show strong parts-based tuning. a Heatmaps of response variance (2-way ANOVA) explained by each swapping factor and interaction (e.g., eyes, mouth, eyes × mouth) for face-selective cells at AM (blue) and AF (pink) sites. Most cells show high explained variance by one feature per swapping group. b Portion of response variance explained in each swapping category by the respective swapping factors (gray) and by the interaction term (red). Variance explained by the interaction of parts is low across all sites and all swapping categories. c Classification of neurons as eyes-selective (top, red), mouth-selective (middle, green), or outer face-selective (bottom, blue). Left, histograms of variance explained by primary features (eyes, mouth, outer face), secondary features (mouth, eyes, inner face), and the interactions. Text insets: mean explained variance by each factor; means also marked with dotted line. … Right, scatter plots of explained variance due to primary and secondary features for each cell. d Response variance explained by eyes, mouth, and outer face, for all 208 face-selective cells. Neurons primarily fall along one of the three axes, indicating that most are tuned to a single local feature.
这张图把单细胞案例升级为群体统计。a 是每个记录位群(AM 蓝色、AF 粉色)所有面孔选择性细胞的方差分解热图,每列对应一种交换类别(eyes×mouth、inner×outer、head×body、monkey×scene),每行一个细胞;b 把交互项(红色)单独摘出来,跨位点跨类别的解释方差都很低——这是"组合编码不存在"的群体版证据。c 是三类亚群的直方图加散点:直方图里主特征的分布明显右移,图内数字给出平均解释方差与 Wilcoxon 符号秩检验 p 值,散点图上多数点贴着横轴或纵轴而非对角线。d 用三角形散点图把 208 个细胞同时投射到"眼睛—嘴—外脸"三个方差轴上,绝大多数细胞落在三条轴之一。读图时把 a 与 b 对照看最快:a 告诉你"总有某个特征解释很多",b 告诉你"但组合几乎没解释什么"。这张图支撑结果第 2 条,是论文标题论断的核心统计证据。
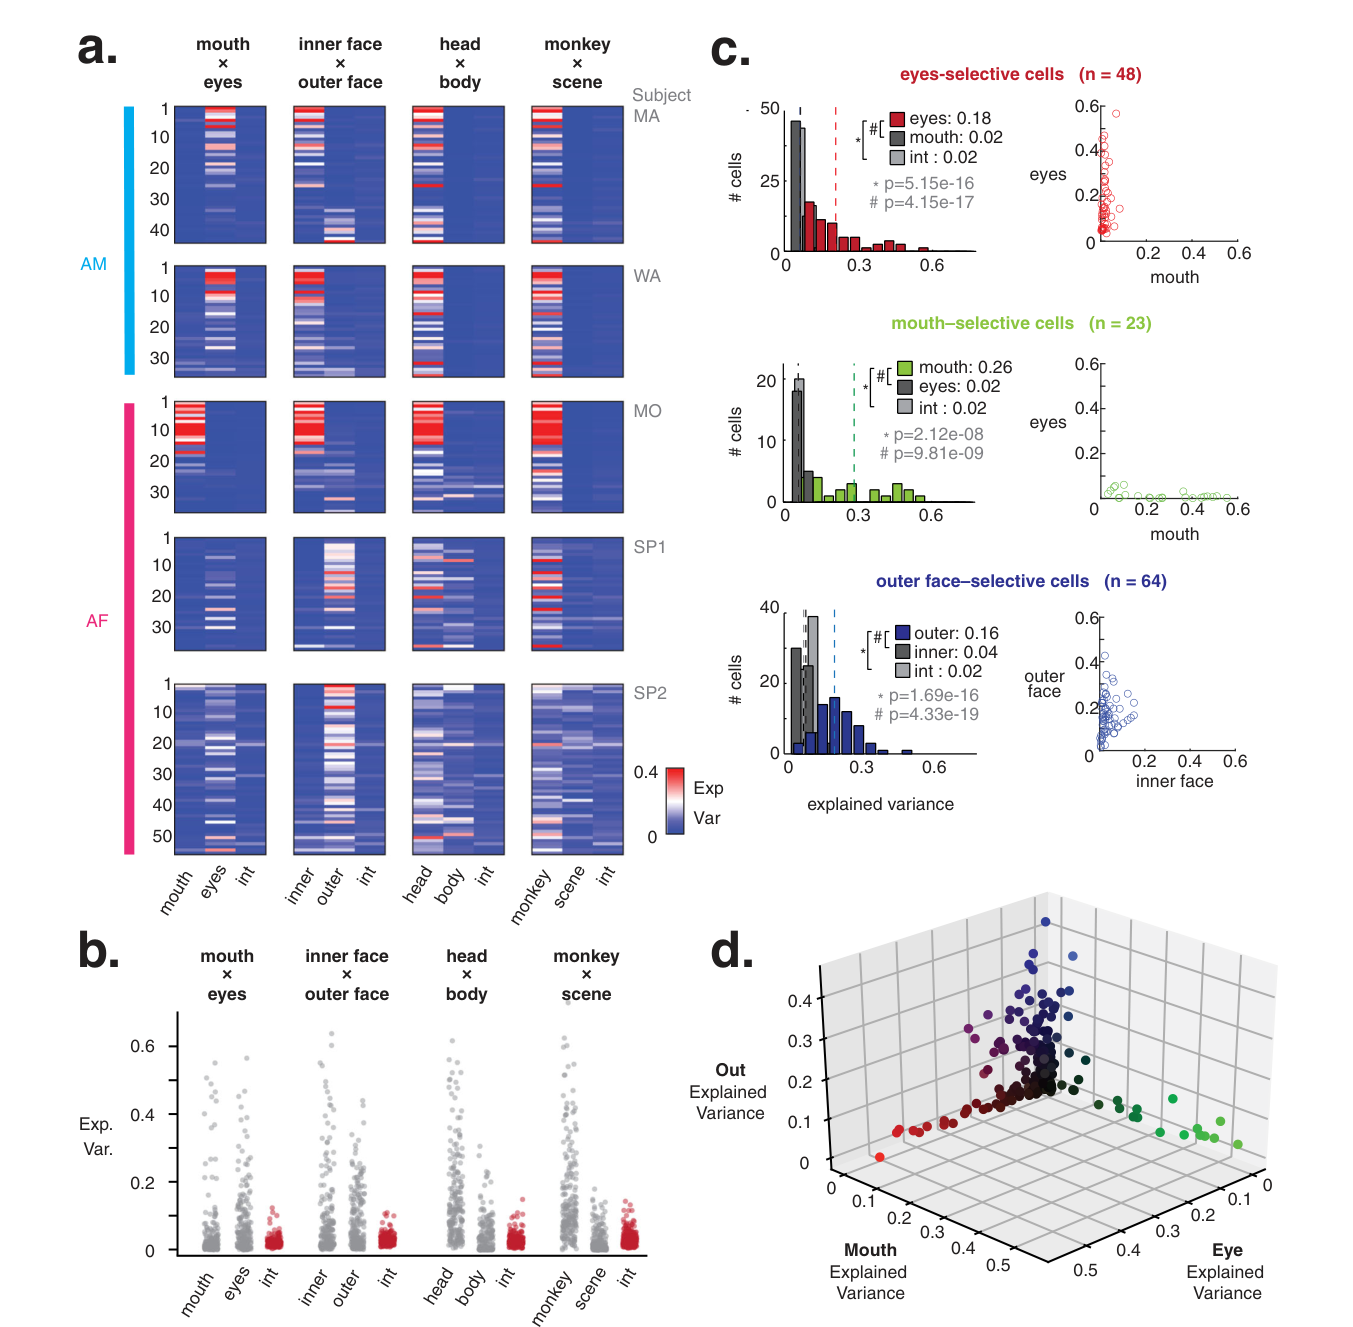
图 4 · 局部反应预测整图反应
原文图注:Fig. 4 | The responses to local parts predict responses to full naturalistic images. a Eyes-selective cells: From responses to eye × mouth and monkey × scene stimuli, average eyes and average monkey responses. Population ordered by the cells' eye identity preferences; cell order subsequently applied to the monkey responses. b Eyes-selective cells: Heatmaps of average firing rates for each local part. As in a, cells in each response matrix are ordered by eyes identity preferences. c Eyes-selective cells: Pairwise correlations between part response matrices. Correlations between eyes responses and sorted inner face, head, and monkey response matrices are high (top row in b, outlined in blue). Correlations between eyes response matrix and sorted mouth, outer face, body, and scene responses are lower (bottom row in b, outlined in orange). … e Eyes and mouth response vectors from d plotted against the response vector for monkeys. Colors of points indicate specific identity (1–10); dashed gray line shows unit line. Eyes response predicts monkey response (dark green, top, linear regression, r2 = 0.92) better than mouth response (light green, bottom, linear regression, r2 = 0.55). f Linear regression between monkey responses and primary (dark green: eyes, mouth, outer face) and secondary (light green: mouth, eyes, inner face) local part responses. Distribution of regression coefficients (boxed in e) for eyes-selective, mouth-selective, and outer-face-selective neurons. Dashed lines show median regression coefficients (green), and coefficients of 1 and 0 (gray).
这张图回答"局部特征主导到底有多彻底":不仅是定性的相似,而是定量的预测。a–c 的读法是"排序一致性"检验——先按每个细胞偏好的眼睛身份给细胞排序(列上从偏好 1 号到 10 号眼),再把同一排序应用到内脸、头、整猴的反应矩阵上;如果整体语境真的在起作用,这套排序在整猴矩阵上应该乱掉,而实际的相关矩阵(c)显示眼睛反应与内脸/头/整猴矩阵的对角相关极高(蓝色框),与嘴、外脸、身体、场景的相关低(橙色框)。e 是示范性散点:以 10 个身份为点、以眼睛平均反应为横轴、整猴反应为纵轴,点几乎贴上单位斜线(r²=0.92),换成嘴做横轴则松散得多(r²=0.55)。f 把三类的回归系数分布画出,中位数都接近 1。这张图支撑结果第 3 条,是把"调谐由局部特征决定"推进到"整图反应可由部件反应定量还原"的关键一步。
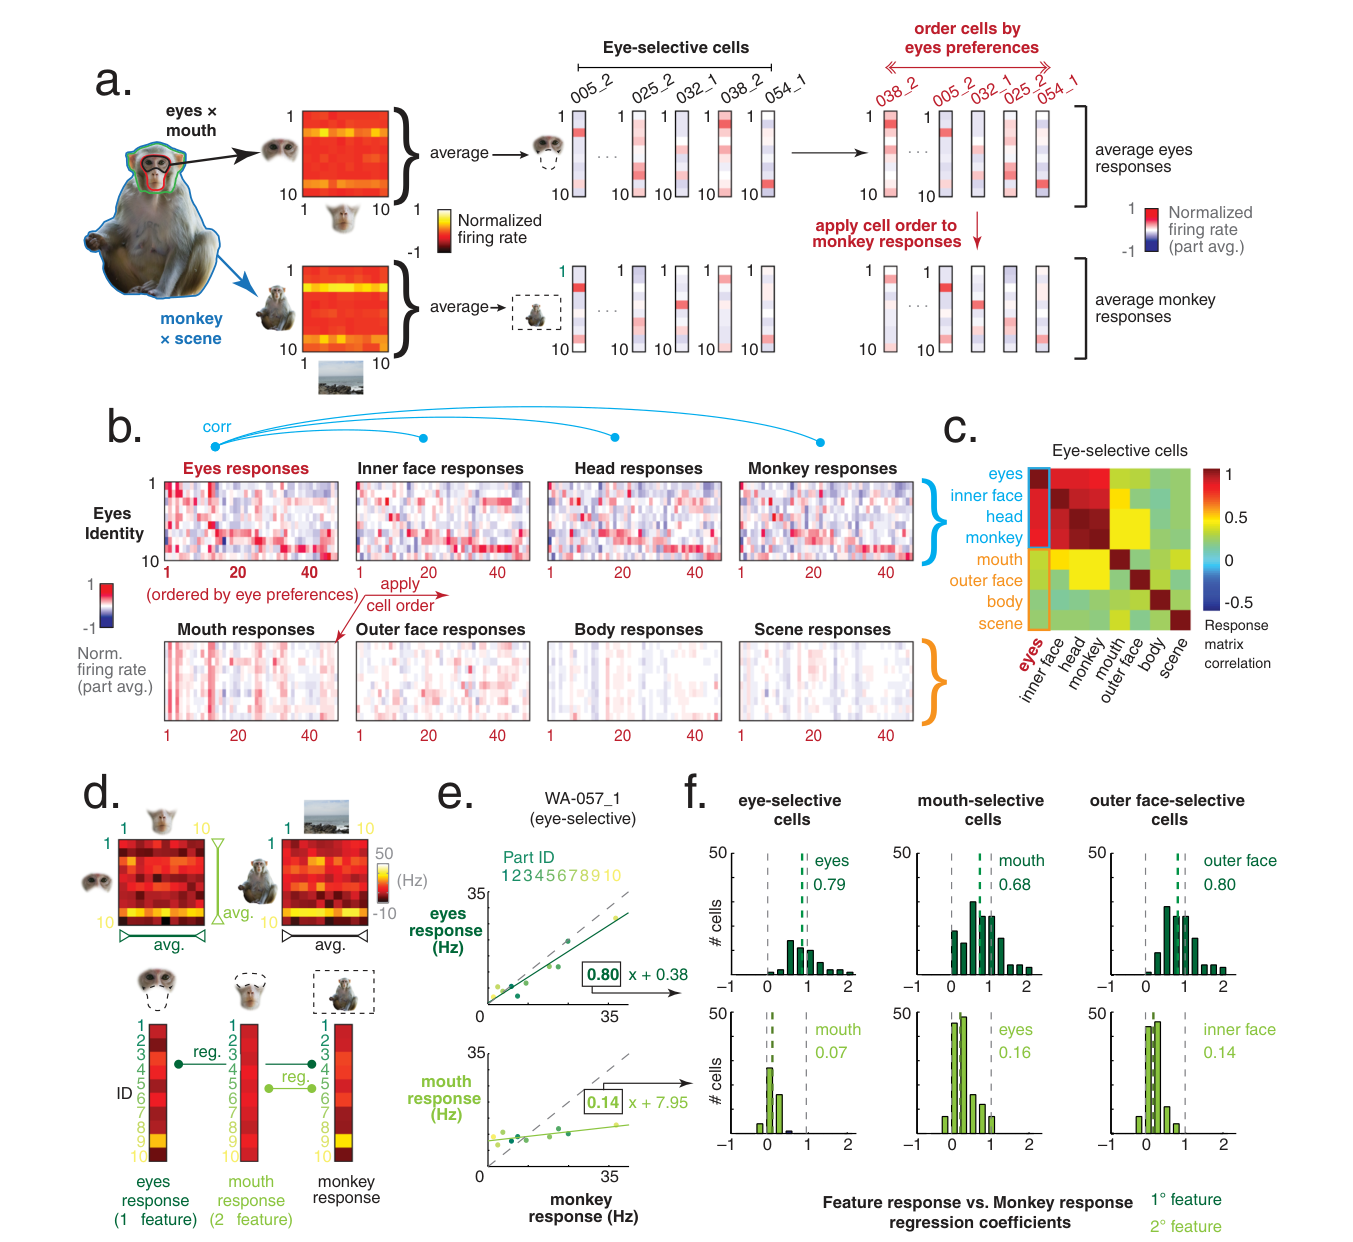
图 5 · 眼睛×语境移植:调谐不顾语境与尺寸
原文图注:Fig. 5 | Eye × Image Context swapping confirms dominance of local part tuning. a Recombination paradigm for eyes × image context stimuli. From full monkey × scene images, eyes from monkeys 1 to 10 are excised and exchanged with two full image contexts. Images are presented at the same three sizes as in the original experiment. b Raster plots for one eyes-selective AM cell, WA 057_1 (same as Fig. 2a, b). Responses to eyes from monkeys 9 to 10 exchanged with five whole image contexts. Eyes from m9 drive the response, with little input from the larger context. … c Heatmap of average WA 057_1 responses to all large eyes × image context stimuli; tuned to eyes with low contribution from image context (two-way ANOVA, explained variance due to eyes = 0.36, image context = 0.03, int. = 0.05). d Heatmap responses for three more AM neurons, each showing greater influence by eyes than image context or interaction. e Radial plots of eyes alone (mean, pink bar) and eyes × whole image (mean, gray bar; SEM, black line) normalized responses for each identity, for cells in d. … f Heatmaps of explained variance (two-way ANOVA) due to eyes, image context, and interaction for stimuli of each size. Cells display strong tuning for eyes, even as the size of the eyes within stimuli change up to tenfold. g Scatter plot of explained variance for eyes, image context, and interaction; colored by tuning for eyes (blue, n = 24), for context (red, n = 3), and interaction (gray, n = 9). The responses of the majority of the cells were dominated by the eyes.
这张图是最严苛的控制实验:把眼睛彻底从原身份里"连根拔起",移植进完全不同的整图。a 给出移植范式;b 的栅格图再次展示 WA-057_1——反应带只随眼睛身份(m9/m10)移动,五个语境之间几乎纹丝不动;c 的热图给出定量结论(eyes 0.36 / 语境 0.03 / 交互 0.05);d、e 用另外三个细胞和雷达图展示"孤立眼睛的反应模式"与"嵌在整图里的反应模式"逐身份重合;f 按 small/medium/large 三种尺寸分别做方差分解,眼睛调谐在尺寸放大十倍(像素占比)时依然坚挺;g 把 36 个细胞按"eyes 选择性 / 语境选择性 / 交互选择性"分色,24 个落入蓝色。读图时注意 a 中标注的 3% 与 0.3%——那就是眼睛像素占整图比例的上下限,是"驱动整张脸反应的可以只是 0.3% 的像素"这一惊人表述的出处。这张图支撑结果第 4 条,同时是讨论中"前端补丁不是整合站点"结论的最强控制证据。
讨论
作者把这一结果定性为"重大意外":按皮层视觉层级"后部处理局部、前部处理整体"的通行观念(从 Marr 到 Van Essen 的经典论述),加上心理物理学对面孔整体加工的强调,他们原本预测 AM 至少应以特征组合驱动为主,实际却得到"组合编码可忽略"的结果。如何与既有证据和解?作者给出三条不互相排斥的路径:其一,整体构型信息可能以放电同步性(spike synchrony)而非放电率的方式被前端皮层编码(援引颞下皮层的经典工作);其二,整体加工可能发生在面孔补丁的"下游"——嗅周皮层(perirhinal cortex)与颞极(temporal pole),它们与 ITC 重度互连、对熟悉面孔反应强烈,其神经元有把不同视觉成分关联起来的能力,而最近的研究恰好发现颞极的反应与面孔识别的行为表现吻合、AM 却几乎不吻合;其三,整体加工可能主要由中部面孔补丁承担——倒置显著影响中部补丁而非前端补丁的反应,Thatcher 错觉的敏感性也集中在中部。作者还指出,人类神经心理学证据同样不利于一律的"前端=整体"假设:前颞叶损伤导致联想型面孔失认(associative prosopagnosia),患者认不出是谁,但对面孔结构的知觉分辨能力大体保留。
作者也认真处理了两处张力。与 Freiwald & Tsao (2010)"AM 以视角不变方式编码身份"的关系:二者并不矛盾,因为面部部件本身携带足以支持视角不变识别的信息(Royer 等 2016),局部调谐可能正是视角不变性的载体。与本文结论边界的界定:局部部件理论上还能继续细拆(眼睛可拆成瞳孔直径、眼间距、周围皮肤等),所以不排除在较小面部子区域内存在某种联合调谐或构型加工——只是就"传统的整体加工"概念而言,前端面孔补丁的单个神经元确实更关心面部与头部的特定子区域,而非它们在整脸中的语境。计算模型方面,作者引用了稀疏编码混合模型与卷积神经网络的工作,前者中单个单元调谐于少数面部特征、整体性通过自上而下的分类竞争实现,与本结果一致。
一句话总结
在我看来,这篇文章的杀伤力在于把"前部面孔补丁=整体身份编码"这个几乎成了默认设置的假设,用一个并不花哨却足够彻底的刺激设计直接放倒——身份信号竟然可以被 0.3% 像素的一双眼睛单独决定。但我不认为它否定了面孔的整体加工本身:它更像是把整体加工的地址从 AM/AF 改写到中部补丁、嗅周皮层与放电同步性上,"细胞看部件、系统认整体"的分工图景反而因这篇文章更清晰了。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[] - Fig2: 提取质量
good,对齐度full,识别面板[] - Fig3: 提取质量
good,对齐度full,识别面板[] - Fig4: 提取质量
good,对齐度full,识别面板[] - Fig5: 提取质量
good,对齐度full,识别面板[]
关键事实与局限性声明
- 审校纠偏: {'md_section': '一句话定位', 'current_text': '它用干净的控制实验把“高层面孔身份编码建立在局部特征神经元之上”这个命题做实了。', 'classification': 'OVERCLAIM', 'problem': '研究测量的是静态刺激诱发的单神经元放电,没有身份识别行为、神经干预或群体因果证据。“建立在……之上”是作者提出的解释,不是被直接做实的机制性事实。', 'recommended_fix': '改为“结果支持前部面孔补丁的身份相关放电可在很大程度上由局部面部特征解释。”'} -> 评注:
- 审校纠偏: {'md_section': '研究思路', 'current_text': '如果在洗配之后细胞反应仍由特征身份决定、而特征组合项解释不了多少方差,整体编码假说就被证伪了。', 'classification': 'OVERCLAIM', 'problem': '低交互项只能削弱以平均放电率和这些预定义部件组合为基础的整体编码模型,不能证伪所有整体编码假说。作者明确保留了放电同步性、其他脑区及较小子区域内构型编码等可能性。', 'recommended_fix': '改为“这将不支持这些单神经元以平均放电率编码所测试部件组合的假说,但不能排除其他尺度或编码形式的整体加工。”'} -> 评注:
- 审校纠偏: {'md_section': '图注解读·图3', 'current_text': '这是“组合编码不存在”的群体版证据。', 'classification': 'OVERCLAIM', 'problem': '原文结论是交互项解释方差很低或组合编码证据极少,不是组合编码绝对不存在。', 'recommended_fix': '改为“这是所测试条件下组合项贡献较低的群体证据。”'} -> 评注:
- 审校纠偏: {'md_section': '图注解读·图5', 'current_text': '同时是讨论中“前端补丁不是整合站点”结论的最强控制证据。', 'classification': 'INTERPRETATION', 'problem': '“不是整合站点”是作者基于平均放电率结果提出的范围受限解释;单动物AM控制实验不能排除AF、同步性或群体层面的整合。', 'recommended_fix': '改为“为前部面孔补丁单神经元的平均放电并不主要编码这些部件组合提供了有力控制证据。”'} -> 评注:
- 审校纠偏: {'md_section': '一句话总结', 'current_text': '身份信号竟然可以被0.3%像素的一双眼睛单独决定。', 'classification': 'OVERCLAIM', 'problem': '0.3%指最小刺激中眼睛区域占整幅图像的像素比例;数据表明部分眼睛选择性神经元的放电调谐由该区域主导,而非整个身份信号或行为识别被其单独决定。', 'recommended_fix': '改为“在最小刺激条件下,仅占图像约0.3%像素的眼睛区域仍可主导部分AM神经元的身份相关放电调谐。”'} -> 评注:
- 审校纠偏: {'md_section': '一句话总结', 'current_text': '它更像是把整体加工的地址从AM/AF改写到中部补丁、嗅周皮层与放电同步性上,“细胞看部件、系统认整体”的分工图景反而因这篇文章更清晰了。', 'classification': 'OVERCLAIM', 'problem': '中部面孔补丁、嗅周皮层、颞极和放电同步性只是讨论中的若干候选解释,本研究没有直接比较或验证这些机制,也不能据此完成整体加工的解剖定位。', 'recommended_fix': '改为“结果促使作者提出若干待检验的可能性:整体信息或许由中部面孔补丁、下游颞叶区域或神经元间同步活动承载。”'} -> 评注:
- 补充要点: 三类部件选择性亚群仅覆盖135/208个面孔选择性细胞,另有73个细胞未被归入眼睛、嘴或外脸选择性类别。
- 补充要点: 眼睛×整图语境实验的36个未筛选单元中有9个以交互项为主,而非全部表现为纯眼睛主导。
- 补充要点: 补充移植实验仅来自一只猴的左侧AM位点,未在AF或其他动物中复现。
- 补充要点: 实验只有被动注视,没有身份判断或识别行为,因此不能证明这些局部特征神经元实际决定了身份识别表现。
- 补充要点: 刺激均为头部正对相机的静态照片;研究没有直接检验跨视角身份不变性、动态面孔或熟悉度效应。
- 补充要点: 双向ANOVA中的低交互项只评估所定义裁剪部件之间、以平均放电率表示的组合效应,不能排除部件内部构型、群体编码或神经元间同步所承载的整体信息。