IT Literature Intelligence 终审版本 (VERIFIED) 论文编号:
035| 原始基线:V0_ZCODE_BASELINE| 语义审核:pass| 图表审核:passAstra裁决:compromise_revision(revise)
Effects of perceptual learning in visual backward masking on the responses of macaque inferior temporal neurons
Op de Beeck · Neuroscience · 2007 · Zotero itemID=431
这篇文章做了一件此前没人做过的事:在单细胞水平上记录猕猴颞下皮层(inferior temporal, IT)神经元对"后向掩蔽"(backward masking)物体的反应,并比较大量训练前后的变化。结果出乎原设计:训练带来的行为提升大部分并非物体特异,而是转移到了从未训练过的物体上;与此对应,训练过的猴子 IT 神经元对无关掩蔽图形的反应被大幅压低。它值得读,因为把知觉学习(perceptual learning)研究从"感受野层面调谐变尖"的常见叙事,推到了"学习改变的是对干扰输入的抑制"这一反直觉结论。
研究背景
知觉学习范式指的是:在任务与刺激-反应联结已被学会的前提下,系统地降解感官信号(如叠加亮度噪声、或极短暂呈现刺激后紧跟掩蔽图形),观察长时间训练带来的行为改善。人类的此类研究已经表明,极短呈现加掩蔽会在刺激-掩蔽起始异步(stimulus-mask onset asynchrony, SOA)小于约 60 ms 时强烈妨碍物体识别,而多轮次训练能大幅提升对被掩蔽物体的识别(Furmanski & Engel, 2000; Grill-Spector et al., 2000),后者还发现训练后短 SOA 下物体选择性皮层的 fMRI 信号增强,并推测训练改变了高级视觉皮层的物体加工。单细胞层面,掩蔽对 IT 神经元的影响也已有刻画:将Rolls与Tovee(1994)的具体参数句改为:“本文援引Rolls与Tovee(1994)、Kovacs等(1995)及Rolls等(1999)的单细胞研究,指出后向掩蔽会干扰IT神经元物体选择性的强度及其出现的时间窗。”其后关于Kovacs等(1995)中断时点与神经元反应潜伏期有关的表述,可保留,本文第7页有明确转述。;Kovacs 等 (1995) 显示物体选择性被掩蔽中断,中断的确切时点取决于单个神经元的反应潜伏期。同时,暴露于复杂物体确实会改变 IT 反应(如熟悉度效应、范畴化训练重塑特征选择性),但这些研究没有一个采用严格意义上的知觉学习范式。缺口显而易见:没有人报道过"识别掩蔽物体的训练"在单神经元上的神经关联,也没有人区分这种训练效应中物体特异与物体无关的成分。
研究思路
作者最初的设计是冲着物体特异性训练效应去的——这正是人类研究强调的:训练效应不应转移到未训练物体上。策略是训练两只猴子识别短 SOA 下被掩蔽的物体组,再在同一只猴体内比较 IT 神经元对训练组与未训练组物体的反应。但行为结果主导了后续设计:训练效应大部分转移到了未训练物体上,物体特异成分只在一只猴中出现。于是作者补了第二条比较路线——把训练过的猴子与从未接受短 SOA 训练的猴子做跨动物比较,以寻找物体无关训练效应的神经关联。为排除"任务要求"的平凡解释,作者又插入两个对照:让未训练猴 2A 也执行掩蔽同异任务(但只训练它忽略长 SOA 的掩蔽),看掩蔽反应是否仍强;让训练猴 1A 再学一个对比度同异任务(此时物体与掩蔽都无关),看掩蔽抑制是否随任务相关性消失。整个设计体现了对"跨组比较"这一弱推理的自觉防御:位置重建、基线比较、掩蔽熟悉度、正确/错误试次等混淆因素都被逐一检验。
方法
实验用 4 只幼年雄性恒河猴(Macaca mulatta)。1A、1B 为训练猴,先掌握无掩蔽的同/异任务,再用一组 10 个物体做大量掩蔽训练(1A 17 个日常训练时段、约每物体 5000 次掩蔽呈现;1B 52 个时段、超过 15000 次);2A、2B为未接受短SOA掩蔽物体识别训练的对照猴,主要在被动注视条件下记录;2A在完成20次被动注视记录后,仅接受数天275 ms长SOA的任务规则训练,随后在掩蔽同/异任务下另记录27个神经元,作为任务条件对照。。刺激集 1 为 120 幅灰度物体图(改自 Rossion & Pourtois, 2004),集 2 为 50 幅黑白模式,按 10 个一组分组;掩蔽由集中随机圆斑拼成并定期更换,以防效应绑定到具体掩蔽图;刺激最大 5.4°,掩蔽 7°×7°,显示器 80 Hz,时序参数以 12.5 ms 步进。掩蔽同/异任务:第一刺激期 300 ms(物体先呈现、时长即 SOA,随后紧跟掩蔽),第二物体 300 ms 无掩蔽,间隔 500 ms,猴子按两物体相同与否向左/右扫视作答;记录期间物体位置固定、训练期间位置可变 ±2°。1A 还做了对比度同/异任务(比较两个放大的注视点亮度的变化,平均正确率 81%),此时被掩蔽物体与任务无关。记录用钨微电极经记录室背侧进入 IT 区(估计位置在外耳道前方 12-21 mm),行为任务中记录(1A: 46 个神经元;1B: 45 个),被动注视记录(2A: 63 个;2B: 53 个),2A 主动任务记录 27 个,1A 对比度任务记录 49 个。分析上:先按 SOA 150 ms 时的净反应(刺激后 60-260 ms 减基线)给每组 10 个物体排序,取最强与最弱刺激;物体特异性分析按各神经元反应潜伏期校正(Poisson 尖峰串分析,潜伏期 60-180 ms,均值 99 ms);群体直方图归一化;选择性指标用 d′(校正变异)与选择深度 DOS;掩蔽反应取短 SOA 最弱物体条件下刺激起始后 270-370 ms 窗口的净反应;行为阈值按 85% 正确率拟合累积高斯并做自助法(bootstrap)检验。
主要结果
- 行为上训练大幅改善掩蔽物体识别,但转移程度跨个体差异极大(图 2):两只猴训练后短 SOA 表现都显著提升,其中 1A 训练后对训练物体的 85% 阈值显著低于未训练物体(P < 0.01,bootstrap),约一半改善转移;1B 的训练效应几乎完全转移到未训练物体(两组阈值无显著差异)。记录期间 1A 在 SOA 13 ms 对训练/未训练物体的正确率为 84% vs 69%(P < 0.001),1B 在 SOA 25 ms 为 68% vs 73%(训练组反而略差,P < 0.05)。
- 物体特异的神经效应小而短暂,且只在 1A 出现(图 3-5):短 SOA 下 1A 的"训练 × 时间"交互显著(P < 0.005),源于响应起始后 0-50 ms 内对训练物体的选择性更高(归一化最强-最弱差 0.37±0.06 vs 未训练 0.17±0.05,P < 0.02;d′ 为 1.01±0.17 vs 0.46±0.11);仅在正确试次中分析结果相同;长 SOA 下无此效应。将本条开头改为“训练物体相对未训练物体的选择性增强小而短暂,且只在1A的短SOA条件下出现”。将1B相关句替换为:“1B在两个SOA下均未出现训练物体的选择性增强:短SOA下呈未训练物体选择性更高的趋势(P=0.06);长SOA下同方向的训练主效应达到作者所称的边缘显著水平(P=0.04),且无训练×时间交互(P>0.3)。另在全刺激的未归一化反应分析中,1B长、短SOA下对训练物体的平均绝对反应均低于未训练物体(各P<0.001)。”。按刺激等级的全刺激分析同样显示 1A 的等级 × 组别交互显著(P < 0.005)而 1B 不显著(P > 0.5)。
- 训练猴对掩蔽图形的反应近乎消失,这是最显著的效应(图 6-8):短 SOA 最弱物体条件下,1A、1B 的平均净掩蔽反应仅 1.3±0.5 与 2.1±1.1 spikes/s,91 个神经元中只有 15 个(16%)有显著掩蔽反应;未训练猴 2A、2B 分别高达 9.5±2.1 与 8.7±1.2 spikes/s,116 个神经元中 62 个(53%)显著(组间 P < 0.001,四组两两配对均 P < 0.01)。掩蔽反应在训练物体之后(1.7±0.6)与未训练物体之后(1.7±0.6)同样小,说明效应物体无关;训练前后猴的物体选择性深度(DOS 分别 0.66/0.57 vs 0.61/0.49)并无一致差异,控制 DOS 后训练效应仍显著(ANCOVA P < 0.001)。
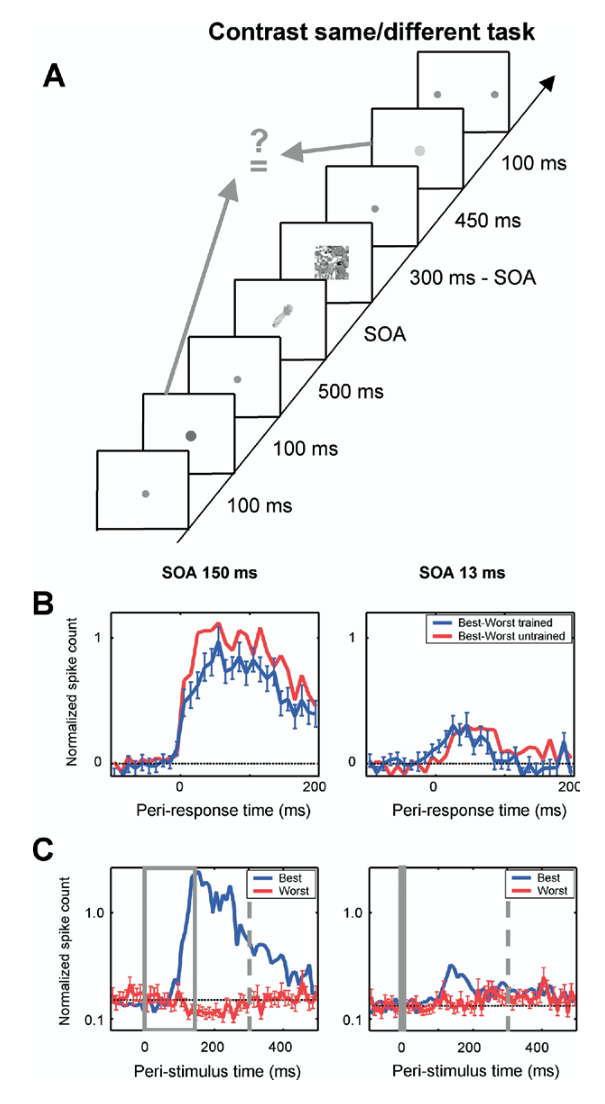
- 掩蔽反应的降低不是任务或序列 experience 的平凡结果(图 8-10,含图 9 位置重建):未训练猴 2A 执行掩蔽同/异任务(未经短 SOA 训练)时掩蔽反应仍高达 11.4±2.3 spikes/s(27 个神经元中 12 个显著),与被动注视无异,说明"做任务"本身不足以压低掩蔽反应;掩蔽图形的相对熟悉度也无影响(首日 7.6±1.0 vs 多日 9.7±1.5 spikes/s,P = 0.23);录制位置重建(图 9)显示训练猴的位置落在未训练猴覆盖范围内,且 2B 各解剖子群(前后、背腹、内外分半)掩蔽反应均显著强于训练猴(各 P < 0.01)。反过来,1A 在对比度任务(物体与掩蔽均无关)中掩蔽反应仍被压低(2.8±0.8 spikes/s,49 个神经元中仅 5 个显著,P < 0.01),且其物体特异的短暂选择性增强在此任务中消失,形成任务 × 训练 × 时间的三重交互(P < 0.05)。
- 长期训练还换来"持续性"物体选择(图 7A):SOA 150 ms 时,训练猴在掩蔽反应窗口(刺激起始后 270-470 ms)仍保留强选择性(最强-最弱差 9.8±1.7 与 8.2±1.4 spikes/s,各 P < 0.0001),未训练猴同窗口几乎无选择性(0.91±0.9 与 2.5±1.1 spikes/s);但极短 SOA 下训练猴的持续选择性也很弱(0.40±0.7 与 1.8±0.8 spikes/s),且未训练猴中掩蔽反应强弱两个半区之间未见持续选择性的相关(P > 0.3)——掩蔽抑制与持续选择并非同一神经性质。
图注解读
图 1 · 刺激与训练任务示意
原文图注:Fig. 1. Stimuli and training task. (A) Examples of the object images and masks. (B) The masked same/different task in which monkeys had to compare two object images.
(A) 给出物体图与掩蔽图的样式掩蔽由许多不同半径的圆斑拼接而成,(B) 为掩蔽同/异任务的时间线:第一物体呈现一小段(即 SOA)后立即被掩蔽,间隔后出现第二物体(无掩蔽),猴子按相同/不相同扫视左右作答。这是理解全文最重要的一张图:它说明任务要求猴子"看穿"掩蔽去比较前面的物体,掩蔽是需要被忽略的干扰项——后文一切"掩蔽反应被压低"的结论都以这个任务结构为参照。
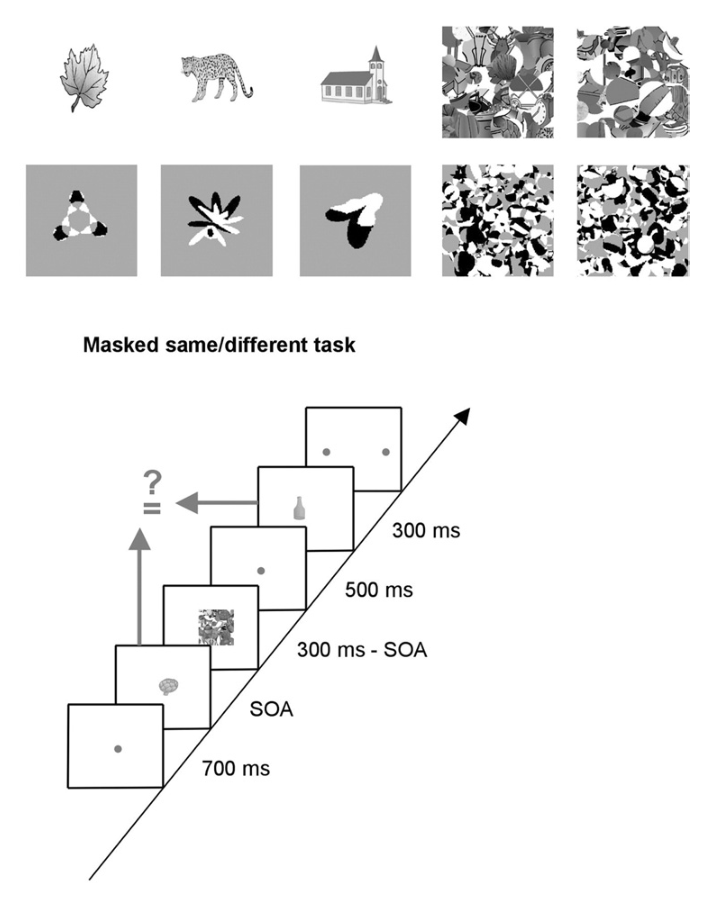
图 2 · 训练前后的行为曲线与阈值
原文图注:Fig. 2. Behavioral performance of monkeys before and after the training in the recognition of backward-masked objects. (A) Psychometric curve before training (filled symbols) and after training (open symbols) for two groups of 10 objects (trained and untrained). (B) Performance as a function of training session and SOA. (C) Eighty-five percent thresholds pre- and post-training for two groups of 10 objects, of which one was trained in-between (pre-T and post-T) and one not (pre-U and post-U). Error bars indicate 95% confidence intervals.
(A) 为训练前(实心)与训练后(空心)对训练组与未训练组各 10 个物体的心理测量曲线(正确率随 SOA 变化),(B) 为正确率随训练时段与 SOA 的演进,(C) 为训练前后两组物体的 85% 正确率阈值(pre-T/post-T 为训练组、pre-U/post-U 为未训练组),误差棒为 95% 置信区间。读图要点:(C) 中 1A 只有训练组(pre-T → post-T)阈值大幅下降且显著低于 post-U,而 1B 两组阈值同步下降——这就是"一半猴有物体特异效应、效应大多转移"的直接展示。它支撑主要结果第 1 条,并决定了全篇后半部分的比较策略。
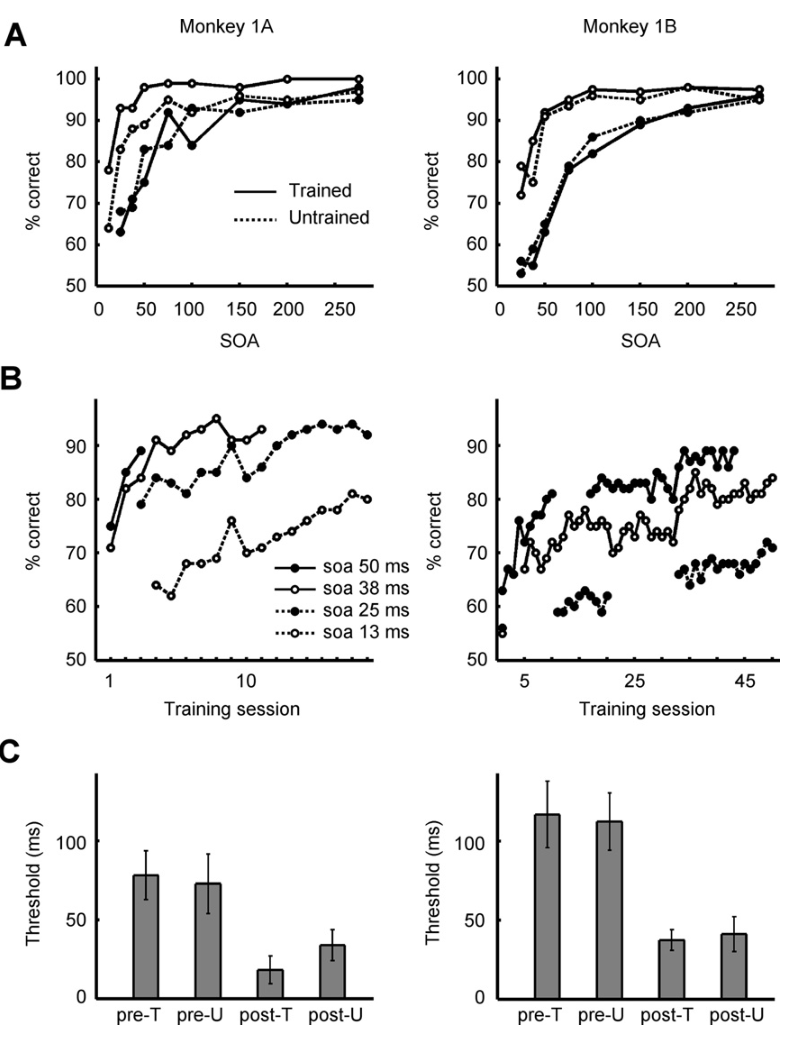
图 3 · 单个 IT 神经元对短/长 SOA 掩蔽物体的反应
原文图注:Fig. 3 shows the responses of one IT neuron to objects at a short and longer SOA. This neuron responded selectively at each SOA, preferring the same object at each SOA, but the duration and strength of the object-selective response were much smaller at the short SOA. Kovacs et al. (1995) showed before that the exact timing of the interruption of the transient stimulus response by the mask depends on a neuron's response latency. So, we report the results of analyses after correcting for the response latency of each individual neuron (see Experimental Proce-
(注:meta 中该条为正文节选而非标准图注,尾部截断。)此单细胞示例展示掩蔽的核心生理效应:同一神经元在短 SOA 与长 SOA 下偏好同一物体,但短 SOA 下物体选择性反应的时长与强度都大幅缩水——掩蔽截断了瞬态反应。作者借这段文字说明后续群体分析为何按各神经元反应潜伏期做对齐校正。它支撑方法一节的校正逻辑,并为图 4 的群体结论提供机制直觉。
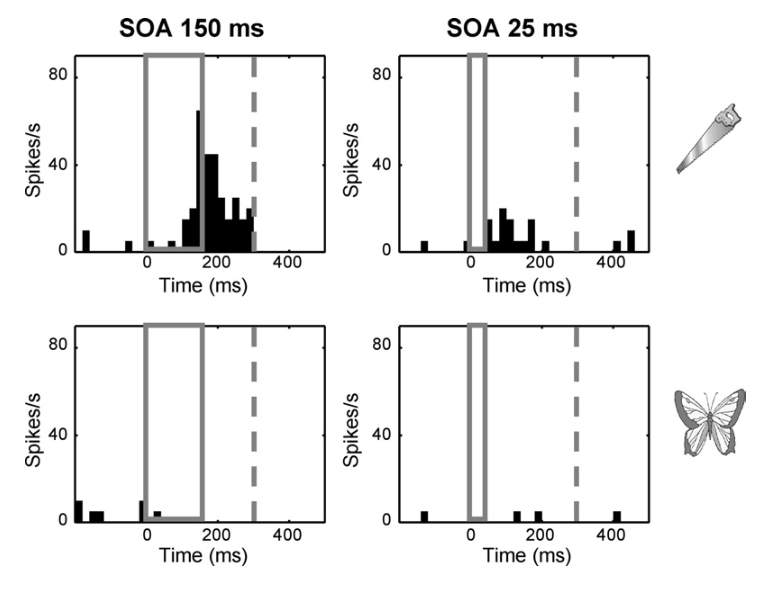
图 4 · 群体响应起始对齐直方图与训练 × 时间的交互
原文图注:Fig. 4. Normalized peri-response time population histograms for monkeys 1A and 1B in the masked same/different task. (A) Histograms for the best and the worst stimulus in each group of objects (trained and untrained). The horizontal line represents the average activity from 100 to 20 ms before response onset. (B) Histograms for the difference between best and worst stimulus. The horizontal line represents zero difference. Bin width is 10 ms. Whiskers represent the standard error of the mean across neurons.
(A) 为两只训练猴在掩蔽同/异任务中按各神经元响应起始对齐的群体直方图:每组物体(训练/未训练)的最强刺激与最弱刺激各一列,水平线为响应起始前 100-20 ms 的平均基线活动;(B) 为最强减最弱的差值直方图,水平线为零差,bin 宽 10 ms,须状线为跨神经元的标准误。读图要点:短 SOA 下 1A 的 B 图在响应起始后 0-50 ms 出现明显的训练组(实线)高于未训练组(虚线)的差值峰——即物体特异的短暂选择性增强;1B 的对应区域反而略偏向未训练组。长 SOA 下两猴的训练组与未训练组差值曲线基本重合。这直接支撑主要结果第 2 条。
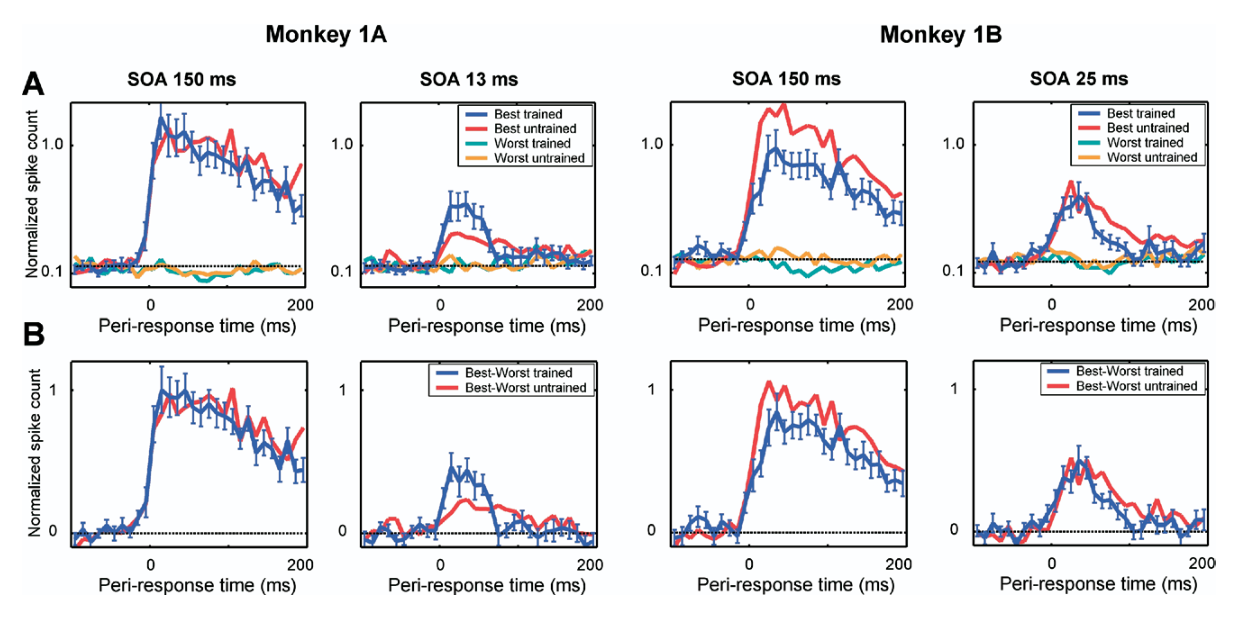
图 5 · 按刺激等级排列的平均反应
原文图注:Fig. 5. The average response during the masked same/different task as a function of stimulus rank for monkeys 1A and 1B in different SOAs. Average response was calculated in the interval 0–150 ms and 0–50 ms after response onset for SOA 150 ms and SOA 13/25 ms, respectively. Whiskers represent standard error of the mean across neurons.
横轴为按 SOA 150 ms 净反应排序的刺激等级(1 为最强、10 为最弱),纵轴为绝对(未归一化)平均反应,分别取响应起始后 0-150 ms(SOA 150 ms)与 0-50 ms(SOA 13/25 ms)计算,须状线为跨神经元标准误;训练组与未训练组分开绘制。读图要点:短 SOA 下训练组曲线在 1A 中整体高出未训练组且斜率更陡(对最强刺激反应更强、对最弱刺激抑制更明显),而 1B 中两组曲线几乎重叠;长 SOA 下训练组整体略低(发表于正文的分析:长 SOA 平均反应训练组偏小,最强物体属未训练组的神经元占多数)。它以另一种坐标展示了主要结果第 2 条的物体特异效应及其个体差异,并顺带暴露了长 SOA 训练组整体反应下降的现象。
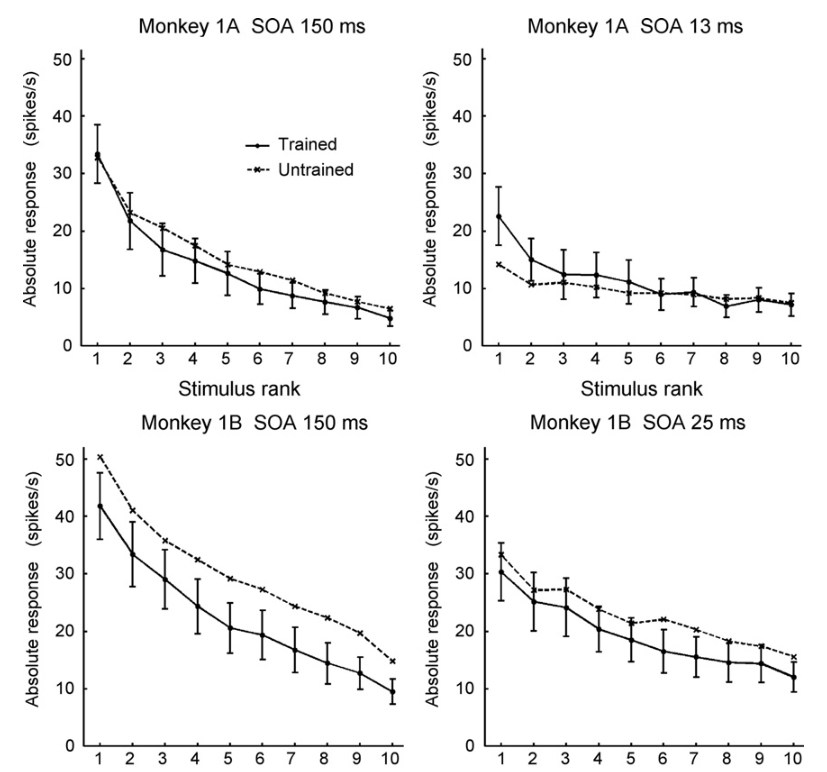
图 6 · 未训练猴单个 IT 神经元的物体与掩蔽反应
原文图注:Fig. 6. Peri-stimulus time histograms (bin width 20 ms) for a single IT neuron from monkey 2A at two SOAs for the "best" object (top row) and the "worst" object (bottom row) out of 10 objects. The gray box represents the time interval during which the object was presented. The masking pattern was presented immediately after this interval and its offset time is shown by the gray striped line.
2A(未训练、被动注视)的单神经元刺激起始对齐直方图:上排为 10 个物体中"最强"物体、下排为"最弱"物体,各在两个 SOA;灰框为物体呈现期,掩蔽紧随其后,其结束时刻以灰条纹线标出。读图要点:长 SOA 时可见物体反应后紧跟一个清晰的"第二峰"(掩蔽反应);短 SOA 时物体反应缩短,掩蔽反应峰会提前出现——文中"卡车条件短 SOA 的反应潜伏期随掩蔽而提前"正是掩蔽反应与物体反应可分离的证据。这张图定义了"掩蔽反应"长什么样,为图 7 的群体对比提供读图模板。
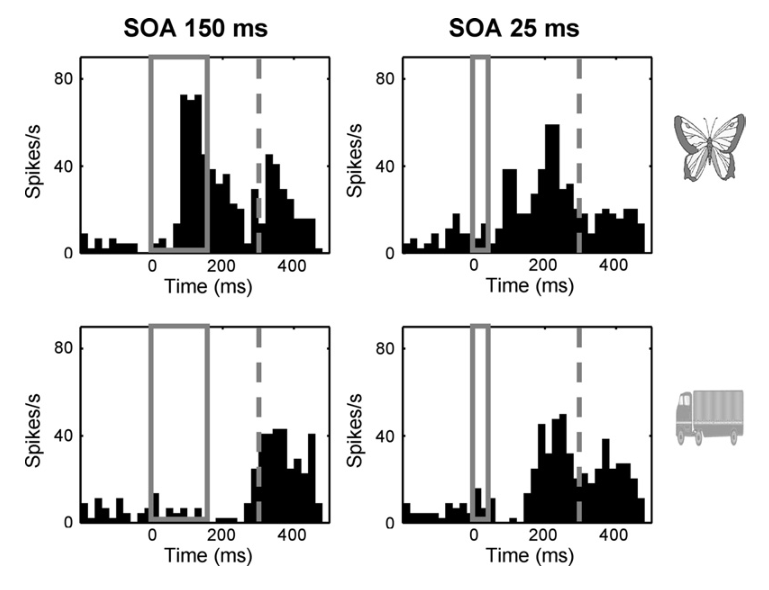
图 7 · 训练猴与未训练猴的掩蔽反应对比
原文图注:Fig. 7 shows the peri-stimulus population histograms at short and long SOA for the best and worst stimulus conditions in each monkey. There was a very striking difference between trained and untrained monkeys at the point
(注:meta 中该条为正文节选而非标准图注,尾部截断。)图中每只猴一列,分长 SOA (A) 与短 SOA (B),蓝线为 10 个刺激中最强者、红线为最弱者,归一化到长 SOA 最强反应,水平线为刺激前基线。读图时直奔掩蔽期(灰框之后):未训练猴(2A、2B)在掩蔽期出现明显隆起的群体反应,而训练猴(1A、1B)的反应几乎跌回基线;长 SOA 下训练猴在掩蔽期反而保留强持续选择性(蓝红分离)而未训练猴蓝红曲线趋于汇合。这张图是全文最核心的证据,直接支撑主要结果第 3 条与第 5 条。
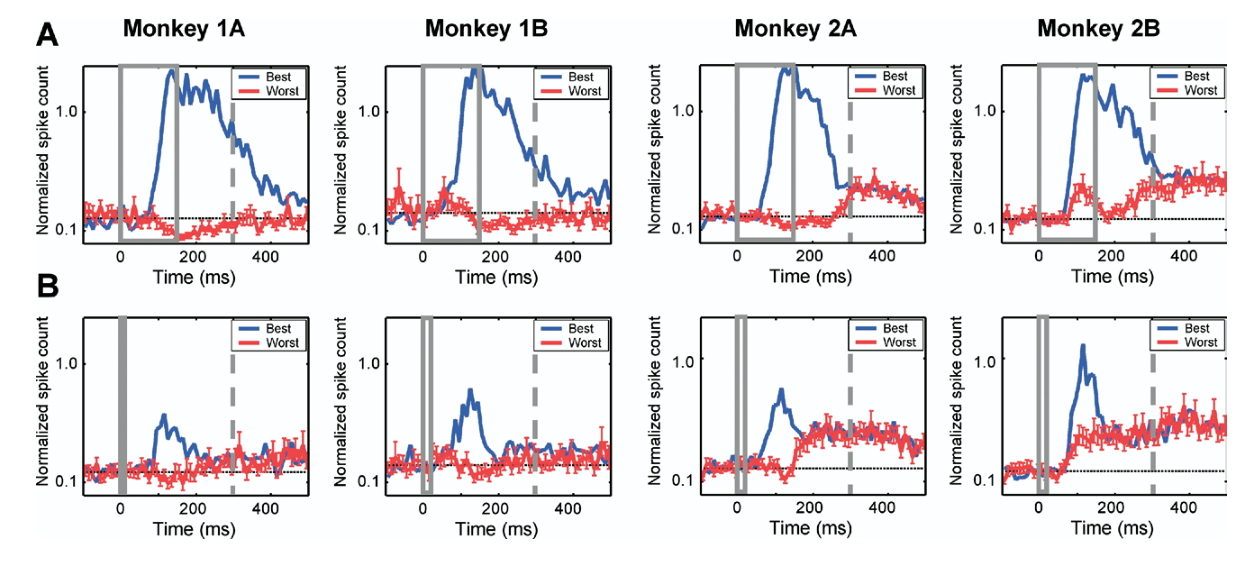
图 8 · 未训练猴 2A 做任务时的掩蔽反应对照
原文图注:Fig. 8. Normalized peri-stimulus time population histograms for monkey 2A in the masked same/different task at SOA 150 ms (top panel) and SOA 25 ms (bottom panel). Conventions as in Fig. 7.
读图要点与图 7 相同,但对象是"未做过短 SOA 训练、却执行掩蔽同/异任务"的 2A:两个 SOA 下掩蔽期都维持着强劲的群体反应(平均 11.4 spikes/s),与被动注视时无异。这一对照排除了"做掩蔽任务本身就会抑制掩蔽反应"的解释,说明反应的压低需要长期的、要求忽略掩蔽并识别物体的训练。它支撑主要结果第 4 条的第一组对照。
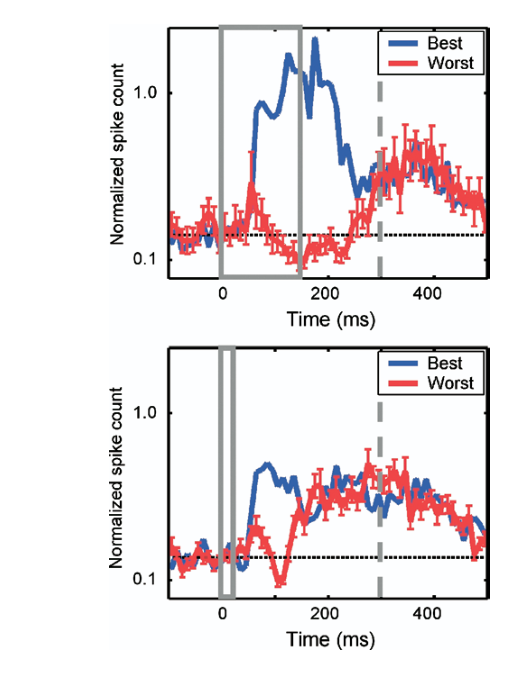
图 9 · 四只猴 IT 记录位置重建
原文图注:Fig. 9. Reconstruction of recording positions in IT cortex in the four monkeys. Abbreviations: amts, anterior middle temporal sulcus; ots, occipito-temporal sulcus; sts, superior-temporal sulcus.
图中重建了四只猴的记录位点在 IT 皮层内的分布(amts 为颞中沟前部、ots 为枕颞沟、sts 为上颞沟)。这张图服务于一件事:排除"训练猴与未训练猴只是记录位置不同"的解释。正文报道训练猴的位置范围落在未训练猴的覆盖之内,且 2B 的各解剖子群(前后相差 6 mm、背腹、内外相差约 3 mm 的分半比较)掩蔽反应都显著强于训练猴。读图时注意 2B 位点的分散性,它把强掩蔽反应呈现为 IT 全域的普遍性质,支撑主要结果第 4 条。
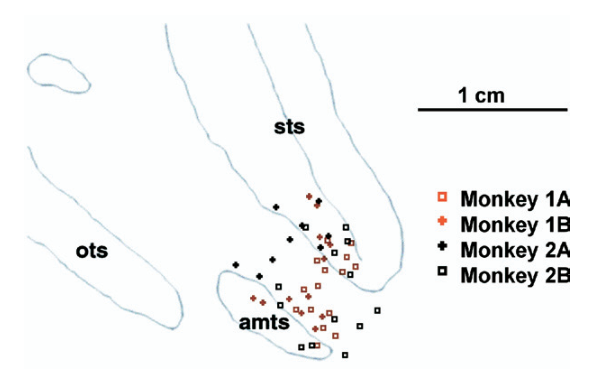
图 10 · 对比度同/异任务:掩蔽抑制与注意无关性检验
原文图注:Fig. 10. Contrast same/different task. (A) The task procedure. The monkey had to compare the contrast of the two enlarged fixation spots. (B) Normalized peri-response time population histograms for the difference in response between best and worst stimulus in each group of objects (trained and untrained). The horizontal line represents zero difference. (C) Normalized peri-stimulus time population histograms that reveal the absence of mask responses. Conventions as in Fig. 7.
(A) 为任务流程:前后各 100 ms 呈现一个扩大的注视点,猴子比较两者亮度变化,被掩蔽的物体与此完全无关;(B) 为最强减最弱的响应起始对齐差值直方图(训练组与未训练组),(C) 为刺激起始对齐直方图,显示掩蔽期内几乎没有群体反应。读图要点:把"物体无关性"推到极致之后,掩蔽反应仍被压低(平均 2.8 spikes/s,仅 10% 神经元显著),说明这种抑制不是绑定在"物体必须被加工"的任务相关性上的;同时 (B) 中短 SOA 训练与时间的交互消失,物体特异的短暂选择性增强没有随任务迁移。它支撑主要结果第 2 条(物体特异效应的局限于掩蔽同异任务)与第 4 条(掩蔽抑制的持久性)。
讨论
作者在讨论中做的第一件事是把两套效应分开归因。物体特异的神经效应(1A 的短暂选择性增强)虽然与人类研究中训练相关的 BOLD 增强在现象上对应,但它的量级小、时间窗短(响应起始后 50 ms 内),作者明确表示很难相信这样小而瞬态的单细胞效应足以驱动 BOLD 尺度的变化;更何况行为层面两只猴对未训练物体的转移程度都超过以往相似范式人类研究中的任何被试,物种、任务与测量方法(fMRI 相对于对所选神经元群胞外放电的记录)的差异都碍于直接比较,而 1B 几乎全转移、1A 半转移的个体差异更提示我们:知觉学习的特异性可能系统地取决于行为基线水平(1B 的掩蔽敏感性更差、训练效应更不特异,与 Yang & Maunsell 在 V4 的观察一致)。第二件事是为掩蔽反应压低定性:作者认为它不是简单的任务内注意抑制——它需要长期训练形成(2A 短期做任务无效,与 Jagadeesh 等的单次训练效应时程不同),一旦形成又能在物体完全无关的新任务中保留;但被动暴露假说也被否掉(2A 被动看过大量掩蔽后掩蔽反应毫无下降),作者倾向的中间解释是注意过程参与其形成、而形成的抑制独立于即时任务需求。作者没有深究其机制(是突触前还是突触后、如何泛化到新掩蔽类型均"文中未详述"式的留白),但把现象放进再入加工(re-entrant processing)框架:掩蔽之所以干扰识别,是因为它打断了由高级区反馈到低级区的再入加工;训练让系统学会"关掉"新异干扰输入并重申物体信号,从而扩展了可用于加工相关物体的时间窗。
一句话总结
这篇论文最反转的地方在于它没找到大家想找的东西:预设中的"训练让 IT 神经元对训练物体更锐利"只在一只猴、一瞬间的窗口里出现;真正一致发生的变化是掩蔽声被调小了。以我的理解,这其实揭开了知觉学习文献里一个常被忽略的层面——学习不只调高对相关刺激的增益,也可以调低对强干扰的增益,两者对行为提升的贡献可能远不对称;只是跨动物比较的定位(两只训练猴、各来自不同处理)让掩蔽效应只能停留在"关联"而非"因果",这是此文的自知之明,也是后来者可以补刀的地方。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[A, B] - Fig10: 提取质量
good,对齐度full,识别面板[A, B, C] - Fig2: 提取质量
good,对齐度full,识别面板[A, B, C] - Fig3: 提取质量
good,对齐度full,识别面板[] - Fig4: 提取质量
good,对齐度full,识别面板[A, B] - Fig5: 提取质量
good,对齐度full,识别面板[] - Fig6: 提取质量
good,对齐度full,识别面板[] - Fig7: 提取质量
good,对齐度full,识别面板[] - Fig8: 提取质量
good,对齐度full,识别面板[] - Fig9: 提取质量
good,对齐度full,识别面板[]
关键事实与局限性声明
- 补充要点: 负结果/边界条件已在MD中覆盖较全(1B无物体特异效应、极短SOA下训练猴持续选择性也弱、掩蔽反应强弱与持续选择性无相关),未遗漏关键负结果。可补充的一处:原文明确报道训练与未训练猴基线放电率无系统差异(1A 5.59、1B 7.87、2A 6.77、2B 5.56 spikes/s),这是掩蔽反应组间比较的重要基线对照,MD仅在'研究思路'中泛提'基线比较'而未给数据。
- 补充要点: 对比度任务训练期细节(半数试次物体无掩蔽呈现300ms、另一半SOA多为13ms)未提,但不影响结论理解,属可接受的省略。