IT Literature Intelligence 终审版本 (VERIFIED) 论文编号:
014| 原始基线:V0_ZCODE_BASELINE| 语义审核:pass| 图表审核:passAstra裁决:compromise_revision(revise)
Category-specific modulation of inferior temporal activity during working memory encoding and maintenance
Ranganath · Brain Research. Cognitive Brain Research · 2004 · Zotero itemID=182
一句话定位:将开头“这是前一篇 J. Neurosci. 论文(论文 013)的姊妹篇,用更精巧的……”改为“这项研究与论文 013(Ranganath 等,2004,J. Neurosci.)主题相关且部分作者相同,通过‘指令线索’设计考察……”,并衔接原有研究问题。,用更精巧的"指令线索"设计回答一个更尖锐的问题:人脑下颞叶在工作记忆(working memory, WM)编码与维持阶段的活动,究竟是刺激自下而上驱动的余波,还是任务相关的主动调控?结果是梭状回面孔区(FFA)和海马旁回位置区(PPA)的活动跟随"指令让你记什么",而非"屏幕上放了什么";背外侧前额叶(dorsolateral PFC, DLPFC)则只跟随记忆负荷。它把"前额叶通过对下颞叶表征的偏向竞争来操作工作记忆"这一猕猴电生理假说落到了人类影像证据上。
研究背景
工作记忆的在线维持被普遍认为依赖知觉表征与认知控制机制的动态交互,但 fMRI 研究的重心长期压在前额叶的"执行控制"上,对后部皮层选择性机制关注较少。从物体注意(object-based attention)研究看,对面孔或场景的选择性注意能调制 FFA 与 PPA 的活动,于是有观点推测物体工作记忆的编码和维持也通过对下颞叶物体表征的激活来实现——猕猴单细胞工作确实支持这一点:下颞叶神经元对物体高度选择性,且在保持期内表现出对这些物体的持续性特异活动。但在人类影像学里证据并不干净:Courtney 等(1997)在延迟面孔再认任务里只观察到梭状回前部有限的持续激活;Jha & McCarthy(2000)用类似范式操纵记忆负荷,却在延迟期没有发现下颞叶的负荷依赖调制——这反过来说明 Courtney 的"持续激活"可能只是初始刺激加工的尾巴,而非真正的工作记忆信号。
缺口有两个:其一,以往人类研究没有试图把工作记忆编码(WM encoding)活动从自下而上的知觉加工里分离出来,尽管行为学研究早已表明刺激知觉之后存在一个短暂的编码/巩固阶段;其二,"下颞叶延迟期活动是否服务任务"本身仍存疑。而且看来,要证明前者的存在,必须换一个能明确测量主动编码与维持信号的实验设计。另外,注意类研究解决的是多个同时呈现物体竞争知觉资源的问题,而工作记忆编码是在无竞争或低竞争条件下"把东西转为主动状态"的过程,其神经机制是否借用同一套下调/上调,本身也是待检验的问题。
研究思路
作者借用猕猴电生理的推理:下颞叶神经元物体选择性高、维持期活动具有刺激特异性,因此下颞叶活动的"地形"应反映正在维持的信息类型。具体做法是独立操纵两个变量:指令类型(线索告诉你记住面孔还是场景,即任务相关性)与刺激内容(三张序列图中含一张还是两张类别成员,即知觉内容)。若下颞叶活动只对刺激敏感,FFA/PPA 只应跟随呈现了几张本类刺激;若工作记忆假说成立,则不管屏幕上谁多谁少,FFA/PPA 在线索期与延迟期的活动应跟随指令指向的类别。同时基于背外侧 PFC 参与工作记忆与认知控制的证据,预测该区活动跟随待维护的信息量。因为两条件下的刺激序列内容完全匹配,编码与维持活动得以与知觉加工解耦——这正是设计的关键一击。
方法
12 名右利手被试(19–31 岁,均值 22.9 岁),均经医学、神经、精神史筛查。任务为延迟再认(delayed recognition):每试次先呈现 1 s 的指令线索(face 或 scene),随后逐张呈现三张随机排序的灰度图(两张面孔一张场景,或反之,各 1 s),被试在注视中央十字的同时在 12 s 延迟内复述任务相关类别,之后呈现单个面孔或场景 2 s,被试用按键判断其是否属于刚才的记忆集(各 50% 概率),试次间隔 14 s;每轮 12 试次、共 8 轮 96 个试次。刺激为 20 张面孔加 20 张场景(Kanwisher 提供)。另有视觉运动反应任务用于估计每人的血流动力学响应函数(HRF),以及两轮局部izer(faces/scenes/objects/scrambled objects 16 s 区组设计,判断与前张是否相同)。扫描在 4T Varian INOVA 上做梯度回波 EPI(TR 2000 ms,18 层 × 5 mm 轴位)。分析以多元回归估计各试次时段(线索 0–4 s、晚编码/早延迟 4–6 s、延迟 8–12 s、反应 16–18 s)相对试次间隔基线的激活,卷积用个体化 HRF;回归 beta 在 ROI 内平均后进入随机效应组分析。三个 ROI:FFA(梭状回内 faces>scenes 显著体素)、PPA(海马旁回/侧副沟内 scenes>faces 显著体素)、背外侧 PFC(中额回约 BA 9/46 内任一时段有任务相关活动的体素;腹外侧区因部分被试信号丢失被排除)。计划比较为对 cue/delay 期 beta 做"指令类型 × 刺激负荷"两因素 ANOVA。
主要结果
- 行为(图 3):总体准确率 96.8%(SD 4.6%),在行为结果末补注:“原文报告招募12名被试;行为与影像分析的F检验自由度分别为(1,10)和(1,11),文中未解释这一差异,不能据此确认是否有被试未纳入行为分析。”,交互亦不显著(F(1,10)=1.8);反应时则对负荷敏感(两项目试次更慢,F(1,10)=7.75,p<0.019),且场景试次整体慢于面孔试次(F(1,10)=11.277,p<0.01)。
- 知觉驱动的效应先行确认(作为基线):FFA 线索期对"两张面孔"的反应大于"一张面孔"(F(1,11)=18.54,p<0.001),PPA 线索期对"两个场景"大于"一个场景"(F(1,11)=21.89,p<0.001)——ROI 的类别选择性成立。
- 任务相关性独立调制下颞叶(图 4、图 5):剔除刺激数量效应后,FFA 在面孔相关试次的线索期与延迟期活动均更强(cue:F(1,11)=11.06,p<0.01;delay:F(1,11)=11.69,p<0.01),PPA 在场景相关试次两时段均更强(cue:F(1,11)=40.29,p<0.001;delay:F(1,11)=16.29,p<0.005);两 ROI 在任何时段均无指令 × 负荷交互。
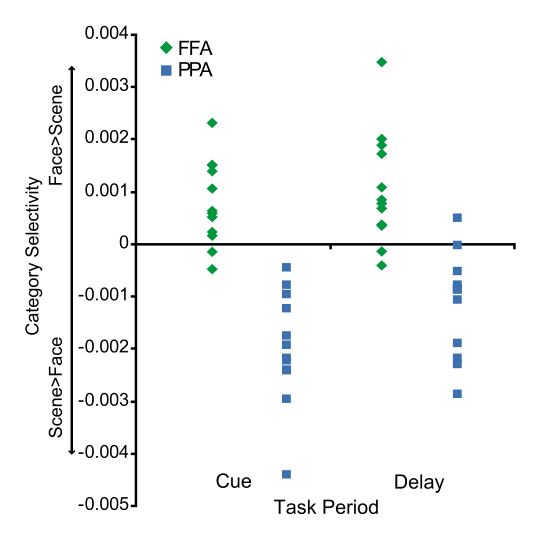
- 个体层面方向一致(图 5):把每人"面孔相关减场景相关"的 beta 差画散点,绝大多数被试在各自偏好的类别被指派记忆时 FFA/PPA 活动增强(线索期与延迟期两幅图同向),说明类别调制是群体规律而非个别被试拉动。
- DLPFC 只看数量不看类别(对应负荷操纵):延迟期活动在两个场景或两张面孔(两项目)试次显著高于一个项目试次(F(1,11)=21.02,p=0.001),与信息类型无关——与下颞叶"按类型调制"形成互补的双分离。
图注解读
图 1 · 任务设计:指令与刺激内容解耦
原文图注:Fig. 1. Behavioral paradigm and task design. On each trial, subjects were shown a sequence of three images for 1 s each. Based on the instruction cue, subjects were required to encode and rehearse 1–2 of these items across a 12-s delay. Because the content of the stimulus sets were matched across scene–instruction and face–instruction trials, activity associated with active encoding and maintenance processes could be dissociated from activity associated with perceptual processing.
时间线上依次是 1 s 指令线索、三张序列图(各 1 s,其中 1 或 2 张属于线索类别)、12 s 延迟、2 s 再认探测。读图的要点在于:同为"两面孔一场景"的输入序列,在 face 指令与 scene 指令下知觉输入完全相同,差别只在要记住哪一类——正是这一点使"主动编码/维持"与"知觉加工"在统计上可分。这张图是理解结果 3 双分离逻辑的前提。
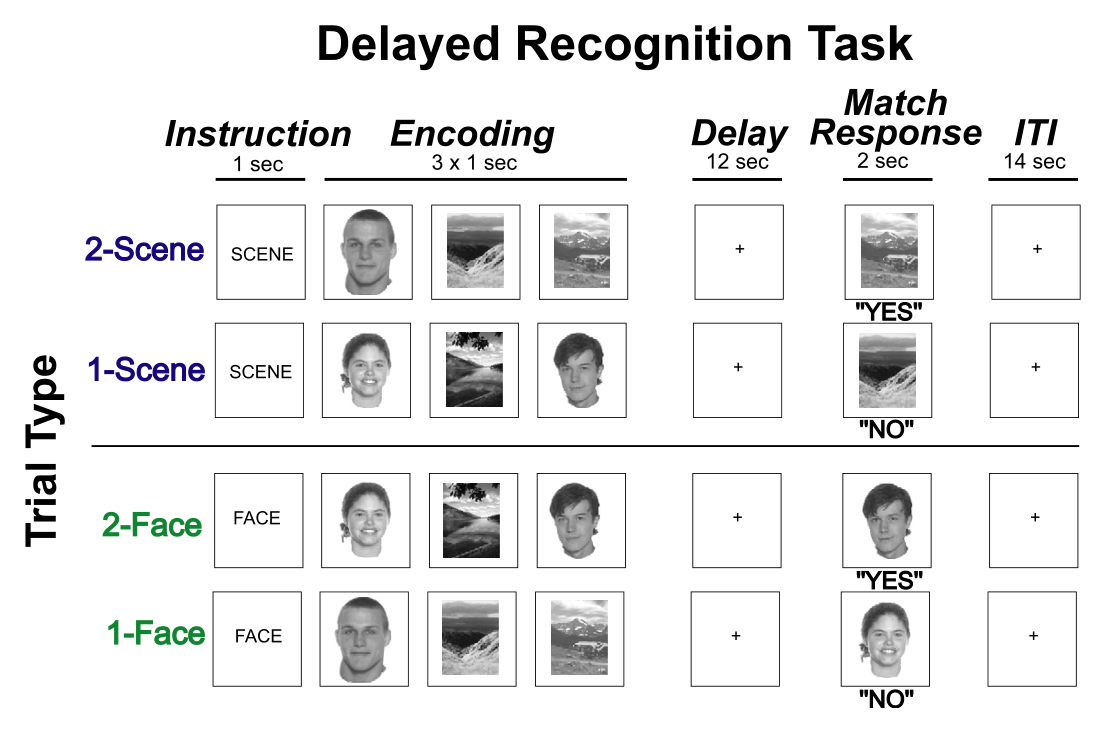
图 2 · 功能定位的 FFA 与 PPA 位置
原文图注:Fig. 2. Locations of the FFA and PPA ROIs are shown on axial slices for one representative subject.
一名代表性被试的轴位切片上分别标出 FFA(梭状回内 faces>scenes)与 PPA(海马旁回/侧副沟内 scenes>faces)的体素范围。它演示了 ROI 是"先解剖边界、后功能反转对比"的两步法得到的,因此类别选择性不是事先假设强加的,而是由独立局部izer 客观定义——这为后续所有类别调制结果提供了测量基底。
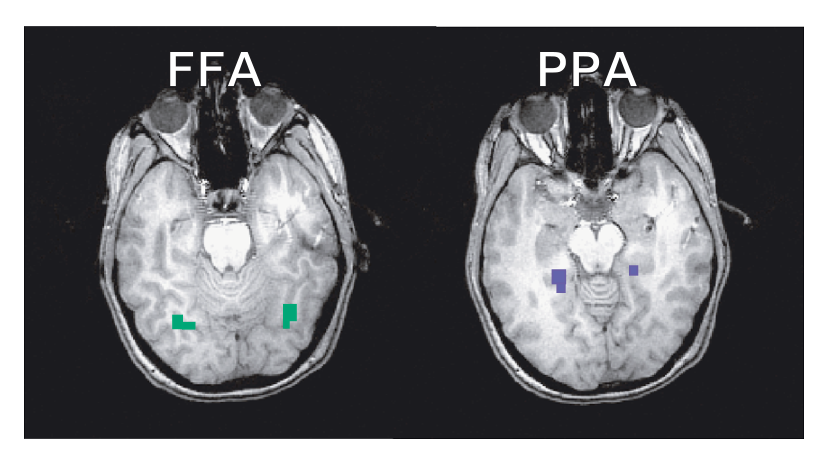
图 3 · 行为结果
原文图注:Fig. 3. Behavioral results. Bar graphs show mean accuracy (top) and reaction times (bottom) for each trial type. Error bars denote the standard error of the mean.
上排是四种试次类型(面貌指令/场景指令 × 一项目/两项目)的平均正确率,下排是对应平均反应时。正确率四柱几乎等高(约 96%),说明所有条件的记忆要求都可胜任、天花板效应存在;反应时柱则随负荷升高,且场景条件普遍略慢。这张图支撑结果 1,也提示影像差异不能归因于准确率层面的任务难度差。
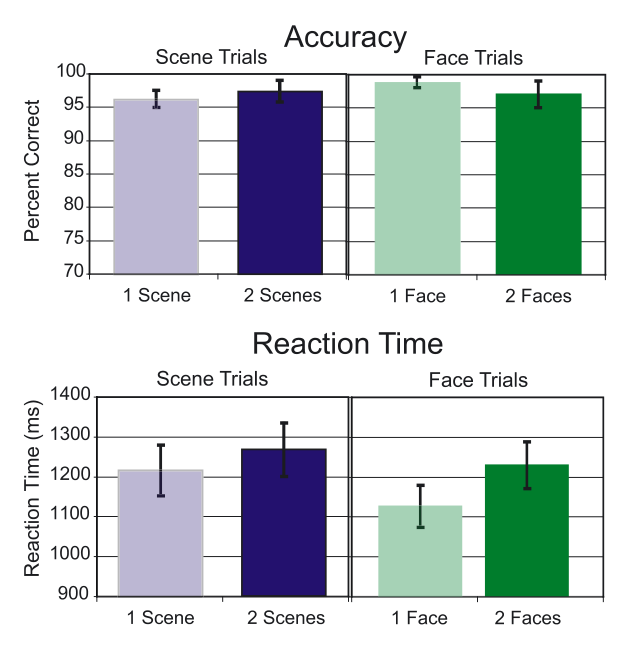
图 4 · FFA/PPA 对任务相关类别的编码与维持调制
原文图注:Fig. 4. Modulation of inferior temporal activity associated with active encoding and maintenance. The bar graphs show parameter estimates indexing the magnitude of BOLD responses in the FFA (left) and PPA (right) collapsed across memory load conditions. Cue (top graphs) and Delay (bottom graphs) period responses are shown for trials when faces were relevant (green) and trials when scenes were relevant (blue). Error bars for each ROI and task period denote the standard error of the mean across subjects. These results show that independent of perceptual stimulation, inferior temporal activity was sensitive to the type of information to be encoded and maintained.
四组柱状图:列是 FFA 与 PPA,行是线索期与延迟期,绿色柱为面孔相关试次、蓝色柱为场景相关试次(负荷条件合并)。FFA 的绿柱高于蓝柱、PPA 的蓝柱高于绿柱,且在线索与延迟两个时段都成立——注意此图已剔除刺激数量的影响。这张图是结果 3 的主图,直观呈现"指令决定下颞叶地形"的核心发现。
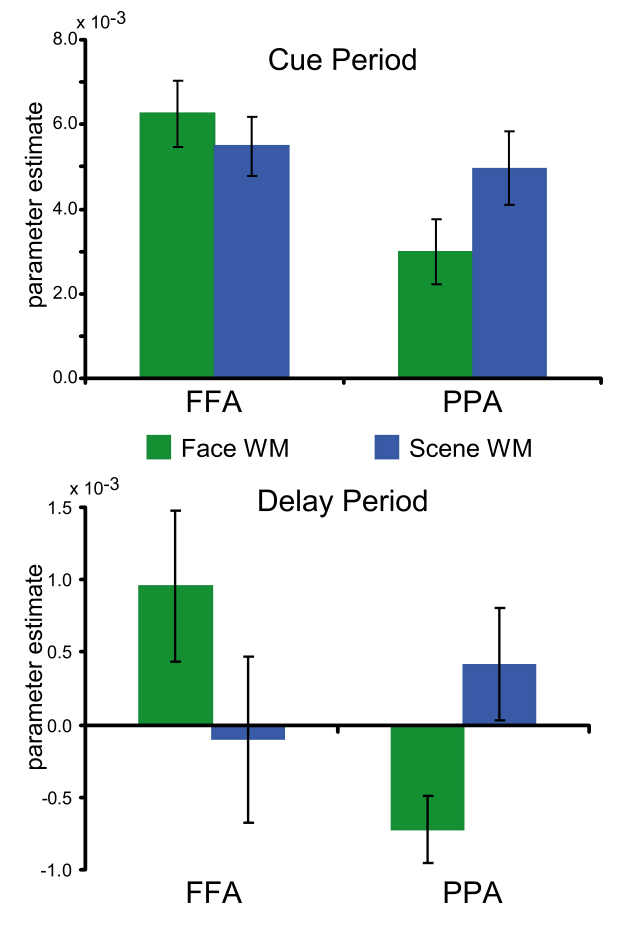
图 5 · 个体水平的类别选择性散点
原文图注:Fig. 5. Category selectivity of inferior temporal activity during WM encoding and maintenance. A scatter plot shows the parameter estimates indexing the face–scene response amplitude difference during the cue (left) and delay (right) periods. Each point represents data from a single subject. Positive values indicate relatively greater activation for face-relevant trials, whereas negative values indicate relatively greater activation for scene-relevant trials (note that because these are contrasts of parameter estimates derived from the GLM, the units are arbitrary). ……(后略:FFA(蓝)与 PPA(绿)显示,多数被试在各自偏好的刺激被指派记忆时线索期与延迟期活动增强。)
左图是线索期、右图是延迟期,横轴(或分类轴线)上每点为一个被试的"面孔相关减场景相关"beta 差:FFA 的点集中在正值区(面孔相关时更强),PPA 的点集中在负值区(场景相关时更强)。注意图中注明这些是 GLM 参数估计的对比值,单位任意,重要的是符号与聚集方向。它把图 4 的群体效应落到个体层面,支撑结果 3 与 4。
讨论
作者把发现拆成两层来谈。编码层面:本任务的刺激逐张呈现、每张 1 s,按人类电生理的估计(物体再认在刺激后 150–300 ms 内完成),刺激之间并不存在对知觉资源的竞争,因此这里的类别调制不能沿用"偏向竞争解决知觉冲突"的解释(O'Craven 等 1999;Wojciulik 等 1998;Tong 等 1998),而表明任务相关类别的知识被用于解决"记忆加工资源"的竞争——即对下颞叶表征的偏向塑造了编码入 WM 的内容,支持"WM 编码是独立于知觉加工的过程"的认知理论(refreshing、consolidation 等)。作者同时承认两种机制(促进相关类别的编码 vs 抑制无关类别的编码)无法在两类别刺激的设计下区分。维持层面:下颞叶延迟期的类别特异性活动与猕猴电生理一致(Miyashita & Chang 1988;Nakamura & Kubota 1995——且后者显示延迟期活动随延迟加长而延长,并耐受干扰项),对 Miller 等(1993)"干扰刺激消除延迟活动"的阴性结果,作者援引 Nakamura & Kubota 及人类 fMRI(Postle 等 2003:FFA 延迟活动在干扰后依然稳健)加以平衡。额-颞分工层面:下颞叶活动跟随信息类型、DLPFC 活动跟随信息数量,这与 Petrides(2000)的损伤研究互补——下颞叶损伤猴在延长延迟时受损,DLPFC 损伤猴延迟无限但监测项目数增加即受损。总体结论把 WM 描绘为携带任务相关信息的回路中的往复振荡活动(reverberating activity)。局限方面,文中只用了两个刺激类别(促进与抑制解释混杂)、腹外侧 PFC 因信号丢失未纳入 ROI,且 fMRI 无法直接判定调制方向与因果。
一句话总结
(我的理解)这篇设计上的聪明处在于用"指令与内容解耦"把自下而上知觉踢出解释链,从而干净地证明下颞叶的类别区不是被动的知觉缓存,而会随任务指令被主动调用并维持到探测时刻。不过受限于 fMRI,"FFA/PPA 更活跃"到底是增强了相关表征还是压低了无关表征,仍是一体两面说不清;这也是它与单细胞证据之间最大的解释缝隙。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[] - Fig2: 提取质量
good,对齐度full,识别面板[] - Fig3: 提取质量
good,对齐度full,识别面板[] - Fig4: 提取质量
good,对齐度full,识别面板[] - Fig5: 提取质量
good,对齐度full,识别面板[A]
关键事实与局限性声明
- 审校纠偏: 它把'前额叶通过对下颞叶表征的偏向竞争来操作工作记忆'这一猕猴电生理假说落到了人类影像证据上 -> 评注: 原文摘要的措辞为'consistent with the view that...implemented through modulation of inferior temporal activity by prefrontal cortex',即相关性证据支持该观点,但本研究无连通性/因果分析,不能证明PFC→IT的定向调制。MD在讨论部分已自行补充'fMRI无法直接判定调制方向与因果'予以平衡,故整体可接受,但定位句措辞略强于证据等级
- 审校纠偏: 与下颞叶'按类型调制'形成互补的双分离 -> 评注: 原文用语为'distinct response properties'与'complementary roles'。称'双分离'基本符合数据(IT对类型敏感不对负荷敏感;PFC对负荷敏感不对类型敏感),但严格双分离需统计交互检验支撑,原文未做跨ROI交互检验,措辞可接受但偏强
- 补充要点: 未明确提及DLPFC的ANOVA仅报告延迟期负荷效应,原文未报告DLPFC在线索期的显著效应(负结果/未报告层面,MD未区分'检验了但不显著'与'未检验')
- 补充要点: 原文方法中提及卷积矩阵含1/f功率结构与0.02–0.25Hz带通滤波,以及设置late encoding/early delay (4–6s)协变量是为了避免延迟期信号被 prolonged encoding 污染——后者MD已覆盖,前者属次要方法细节可略