IT Literature Intelligence 终审版本 (VERIFIED) 论文编号:
010| 原始基线:V0_ZCODE_BASELINE| 语义审核:fail| 图表审核:pass
Processing objects at different levels of specificity
Tyler · Journal of Cognitive Neuroscience · 2004 · Zotero itemID=172
这篇文章用事件相关 fMRI 加四位病人分析回答一个非常具体的问题:对同一个物体,按"基本层面"命名(说它是"驴")和按"领域层面"命名(说它是"生物")激活的脑区一样吗?结果是——不一样:物体加工始终激活双侧梭状回(fusiform gyrus),但只有需要更细粒度辨别的命名才额外调用左半球前内侧颞叶、包括嗅周皮层(perirhinal cortex)。这为"人类颞叶存在与猕猴类似的层级式物体加工结构"提供了直接证据,也把猕猴嗅周皮层损伤研究推论到了人类的语义障碍。
研究背景
物体知识如何在大脑中表征,是认知神经科学的核心议题。此前研究大体给出一个"基于特征的分布式系统"图景:物体知识主要由枕叶与颞叶皮层网络表征,网络的不同部分随任务所需的加工过程或多或少地参与。但具体到"哪些区域、各自干什么",争论很激烈。一类 prominent 的特化观来自 Martin 与 Chao(2001):物体的不同特征(运动、形状、颜色)存储在介导相应知觉输入与动作的感觉运动系统附近——工具激活左侧颞中回与前额叶抓取相关区,动物激活内侧梭状回(视形属性)与上颞沟(生物运动)。Damasio 的"聚合区"(convergence zone, CZ)假说则是另一种框架:加工一个物体时激活其属性对应的感觉运动区,加上联合皮层中把这些特征绑定起来的中间区——聚合区本身不存储复杂构型,只是指向感觉系统内容物的"指针"。值得注意的发展是 Simmons 与 Barsalou(2003)的精细化:聚合区按层级组织,靠后的皮层区绑定单一类型特征(颜色或形状),越往前把特征组合成越复杂的构型——粗粒度分析调用靠后神经元,细粒度辨别则额外调用更前部的复杂特征组合区。
在非人灵长类一侧,Bussey 与 Saksida(2002)、Murray 与 Bussey(1999)提出的模型几乎同构:猕猴 IT 皮层后部神经元表征简单特征,前部嗅周皮层神经元表征复杂的特征合取(conjunctions);嗅周皮层整合来自不同感觉系统的信息、形成细粒度物体辨别所需的多模态特征合取,其损伤尤其破坏需要特征合取的辨别,即"解决特征歧义"(feature ambiguity)。人类的对应证据却很薄弱。与此同时,临床上有明确的待解释对象:单纯疱疹性脑炎(herpes simplex encephalitis, HSE)与语义性痴呆(semantic dementia)病人的语义损伤呈现层级样式——概念的共享属性保留,故能把牛叫作"动物",却叫不出"牛"。缺口由此显形:如果人类腹侧颞叶也是这样一个前细后粗的层级系统,那么(1)健康人的 fMRI 应显示基本层面命名额外激活前内侧颞叶;(2)损伤前内侧区的病人应该只见细粒度辨别受损。本文同时在两头检验。
研究思路
作者的总体策略是把"同一刺激、两种命名水平"变成一个最小的任务操纵:让 19 名健康被试在扫描中默念命名完全相同的 144 张常见物体彩色图片——一次按基本层面命名(如把图称作"驴""锤子"),另一次按领域层面命名(把它称作"生物"或"人造物")。刺激完全相同,唯一变化的是需要从物体上抽取的信息精细度:领域层面只需粗粒度的类别知识,基本层面则要求在相似物体之间(虎 vs 狮 vs 豹)作细粒度区分。按 Bussey–Saksida 的层级模型推理,领域命名应只涉及对简单特征反应的 IT 侧腹区,基本命名应额外调用对复杂特征合构反应的前部颞叶、包括嗅周皮层。这个设计的干净之处在于把"看到的"完全固定,把"要说的"长度控制到几乎一致(两个领域名称同为两个音节、音位长度 5 对 6),从而把激活差异归因于辨别粒度而非视觉或发音负荷。
第二步是把健康人的激活图拿到病人身上对照。作者挑了四位 HSE 病人(JBR、RC、JH、WL),其认知(Ravens 推理测验)在正常范围但语义严重受损, voxel-based morphometry 显示双侧内侧颞叶结构(包括鼻皮层,即嗅周与内嗅皮层)广泛异常而后部颞区相对保留。按层级模型的预言,这类病人应表现为:基本层面命名严重受损、领域层面命名完好。作者于是先测病人的行为(两类命名任务),再把图1 中"基本命名特异性激活"与"领域命名激活"的轮廓分别叠到每位病人的解剖像上,看激活区与损伤区的空间关系。弱化为『fMRI 找区域、病人提供损伤-行为印证』,并可注明损伤不限于嗅周皮层、因果归因受限。
方法
fMRI 研究:19 名右利手被试(20–39 岁)参加;刺激为 144 张常见物体彩色照片,呈现在白背景中央,另加 45 个由注视十字构成的基线事件。两次 session 顺序在被试间平衡,分别做基本层面与领域层面的默念命名(扫描中不作口腔反应以避免运动伪迹,故扫描前先经外显命名预试确保每张图唤起唯一名称,概念一致性达 95%;刺激词频每百万 20、视觉复杂度 2.6、可表象性 601 等,见表3)。每个事件 2.5s:图片呈现 500ms 后接 2.0s 反应延迟;基线为十字 1.5s 加 1s 延迟;试次伪随机排列,连续同类(生物/人造物)不超过四张。扫描用 Cambridge Wolfson 脑成像中心的 3T Bruker 系统,梯度回波 EPI(TR=3200ms,TE=30ms,21 层斜切片,层厚 4mm,层间隙 1mm);分析用 SPM99 做一般线性模型与随机效应组分析,熟悉度、可表象性、视觉复杂度作为参数调节量进入模型;阈值取未校正 p<.001、且簇通过全脑 p<.05 多重比较校正,另对左颞叶做小体积校正(small volume correction, SVC);坐标以 MNI 空间报告。嗅周皮层(BA 35/36,海马旁回前段、侧窦沟周围,外侧邻梭状回)与内嗅皮层(BA 28/34)的位置按 Insausti 等(1998)与 Reber 等(2002)的界定划定;改为:『作者特别注明 fMRI 因磁敏感伪影无法可靠测量杏仁核以前区域(颞极)的活动』。
病人研究:四位 HSE 病人 JBR、RC、JH、WL。三个病人的结构像经体素形态学(VBM)分析,显示双侧内侧颞叶广泛异常(海马、杏仁核、内嗅与嗅周皮层、海马旁回后部保留与否详见原文)而后部颞区相对保留;四位病人的 T1 像经 SPM 规范化(损伤区加掩膜避免形变失真)。行为上测两类命名:其一为 227 张照片(13 个类别)的基本层面命名;其二直接类比 fMRI 任务的 8 类照片、分别按基本与领域(生物 vs 人造物)命名,仅 RC 与 JBR 可再测。
主要结果
-
两种命名都激活双侧枕颞后部;只有基本层面命名额外激活左半球前内侧颞叶(图1、表1)。基本层面命名减基线产生两大簇:左侧梭状回(BA 19/37/36)从后到前整段激活、延伸到下/中枕回(BA 18)与距状沟(左梭状回簇 3072 体素、校正 p=.004、峰值 t=8.31),右侧对应但更小。对左颞叶做 SVC 后,嗅周皮层出现激活并延伸入内嗅皮层(BA 28, 35),且只在左半球。降低阈值后,左簇进一步向前内侧扩展至梭状回、嗅周皮层、杏仁核与海马。领域层面命名减基线则只激活双侧后部区域(下枕回、纹周 BA 18/19 与梭状回 BA 19/37,左侧更强),激活延伸比基本命名更靠前,但 SVC 下左颞叶无额外激活;即使在更低阈值下,领域命名也不涉及嗅周皮层的任何部分(图1Biii)。
-
直接对比基本 vs 领域命名,差异落在左内嗅与嗅周皮层(表2A、图1C)。基本层面命名在左内嗅与嗅周皮层(BA 35/34,峰 t=5.75)显著强于领域层面命名;领域层面强于基本层面的地方只在右侧中额回(BA 8),颞叶内没有任何区域反向占优。
-
沿左下枕颞皮层由后向前取 12 个点看信号变化,形成清晰的"从无差别到有差别"的梯度(图2)。在最靠后的梭状回 BA 18(约相当于 V2)两种命名的反应几乎一致;稍前的纹外皮层(BA 19 与后部 BA 37,即侧枕复合体所在、对可识别物体形状起一般性反应的区域)也不随任务分化——这与 Malach 等(1995)、Grill-Spector 等(2001)"该区是通用的形状分析系统、不涉及概念层面表征"的结论一致。进入更前部的梭状回(前 BA 37 与 BA 20),基本层面相对领域层面的信号差逐渐拉大,最大差异出现在最前部、对应内嗅与嗅周皮层的位置。
-
病人行为模式与预测吻合:基本命名严重受损、领域命名近乎完好(表内数字)。227 张照片的基本层面命名中,JBR 42%、RC 38%、WL 26%、JH 60% 正确(健康对照平均仅 5% 错误);错误几乎都是同类坐标错误(牛→马)或上位错误(牛→动物)。在与 fMRI 任务直接可比的第二项任务中,JBR 基本命名 34% 正确而领域命名 94%,RC 为 30% 与 99%;RC 的 44% 错误是类别级命名、37% 是同类内错误,JBR 则 81% 是类内/域内错误(驴→狼、海豚→青蛙、微波炉→电唱机)。两类错误都指向"无法在相似物体间作精细区分"。
-
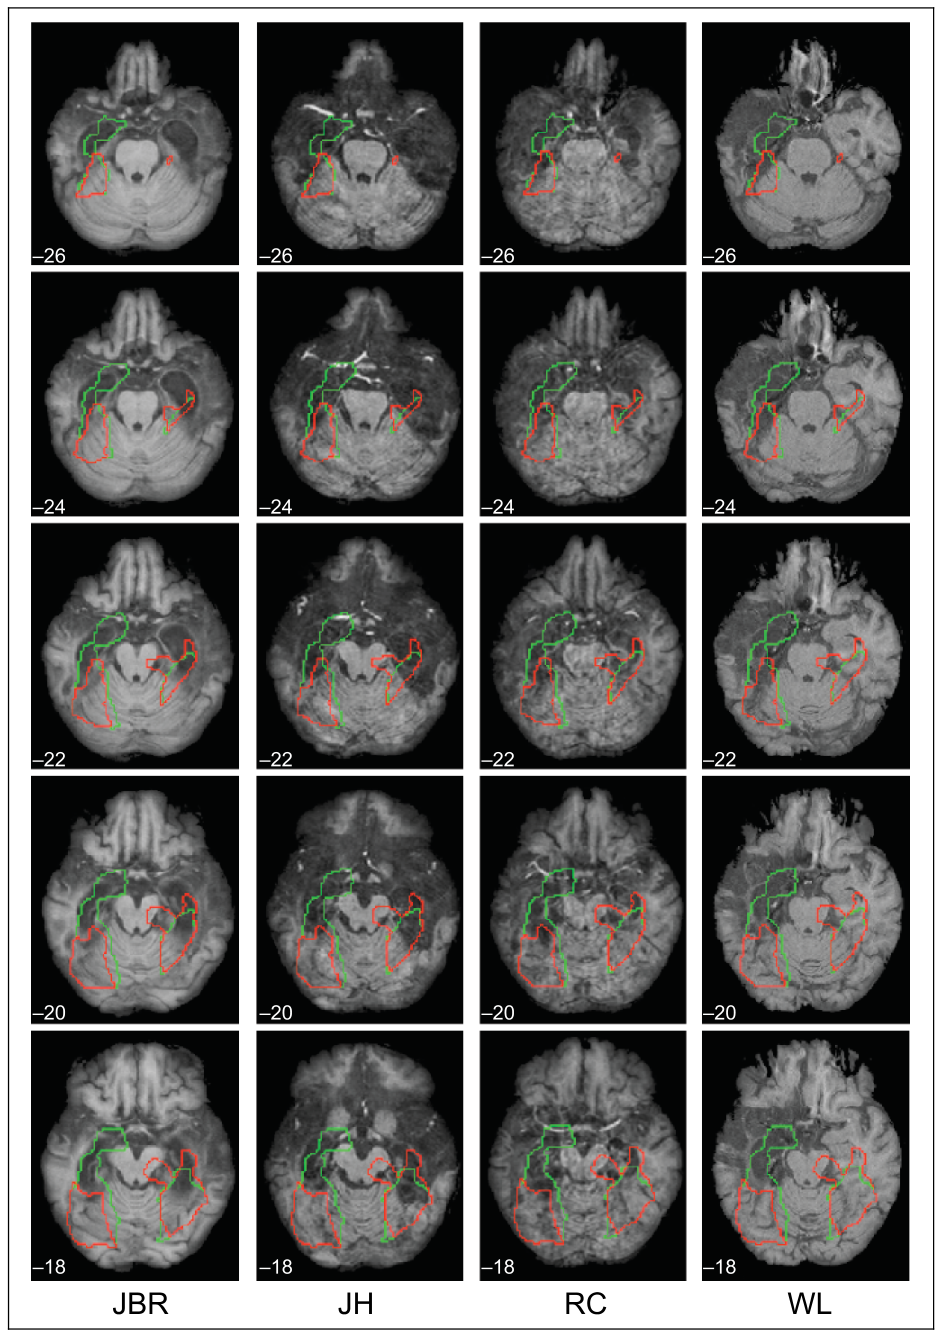
损伤位置与激活位置对应:基本命名相关的前部激活区在病人脑上严重受损,领域命名相关的后部区相对保留(图3)。四位病人均有内侧与前部颞叶广泛损伤(海马、杏仁核、内嗅与嗅周皮层、海马旁回),并延及眶内额区;WL 损伤以左侧为主。把健康被试的基本命名激活(绿色轮廓)与领域命名激活(红色轮廓)叠到病人解剖像上,可见与细粒度辨别相关的前部激活区(关键含嗅周与内嗅皮层)在病人中尽毁,而领域命名相关的后部激活区相对完好——这"可能解释了病人命名失败之所在,也解释了他们在此类任务上为何无损"。
图注解读
图 1 · 两种命名水平的激活分布与直接对比
原文图注:Figure 1. (A) Significant activations for the contrast of basic-level naming minus baseline are shown superimposed on a T1 anatomical image transformed into the standard stereotactic space of Talairach and Tournoux (1988). The color bars indicate strength of activation (voxel level T values). The areas shown survived p < .05 correction for multiple comparisons at the cluster level and were thresholded at (i) .001, (ii) .001 (with SVC for the left temporal cortex), and (iii) .01. We use neurological convention where left = left. …… (C) Significant activations for the contrast of basic level minus domain-level naming are shown superimposed on a T1 anatomical image. The activations shown were thresholded at .001 and survived p < .05 correction for multiple comparisons at the cluster level. The plot shows a representative effect size in the two conditions in the perirhinal cortex.(B 部分描述领域层面命名的对应阈值与约定,与此同构)
(A)(B) 分别是基本、领域命名减基线的激活,叠加在标准化 T1 解剖像上;色标为体素水平 T 值,(A)(B) 各含三档阈值(.001、.001+SVC、.01),神经学方位(图左即脑左)。读图看两点:基本命名 (A) 的激活向前深入到左颞叶内侧(橙色区域随阈值降低往嗅周/内嗅方向扩张),领域命名 (B) 则止步于后部梭状回,即使 (Biii) 的低阈值也一样;(C) 是基本减领域的直接对比,附嗅周皮层两条件下效应量的柱状示意。此图支撑"主要结果"第 1、2 条:任务粒度的差异专属地落在左前内侧颞叶。
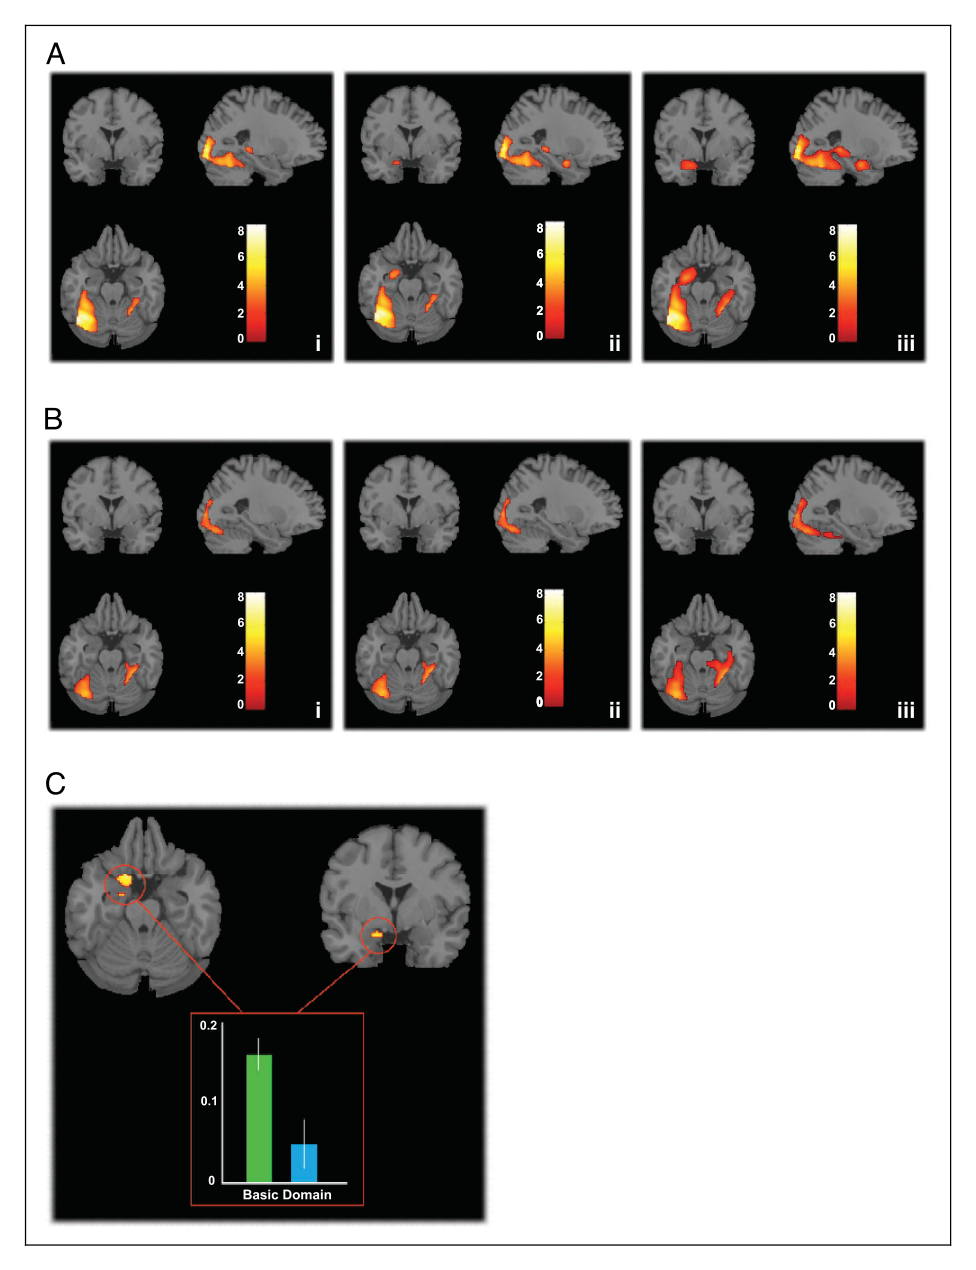
图 2 · 沿枕颞皮层自后向前的 12 个采样点:任务分化逐级出现
原文图注:Figure 2. Plots of signal change (with standard error bars) for basic- and domain-level naming relative to baseline at 12 points along the posterior to anterior extent of the left inferior occipital and temporal cortices (values shown in arbitrary units). See text for additional detail. The approximate location of each point is shown superimposed on axial (i and ii) and sagittal (iii) slices of a normalized brain. Figures above each plot indicate the position on the y (coronal) axis in MNI space.
12 个小图对应左下枕颞皮层由后向前的 12 个位置(每个小图上方的数字是该点在 MNI 冠状轴上的 y 坐标),轴/矢状切片标出各点位置;每张小图里是两种命名相对基线的信号变化(带标准误)。读法是从左(后)到右(前)扫一遍:最靠后的 BA 18 两根柱几乎等高,BA 19 与后部 BA 37 仍无差别,越往前两条件的差距越大,到最前段(内嗅/嗅周皮层位置)差距最大。这张图把"后通用、前特化"的层级梯度画成了可直接看的形式,支撑"主要结果"第 3 条,也是全文与猕猴层级模型对接的核心证据版式。
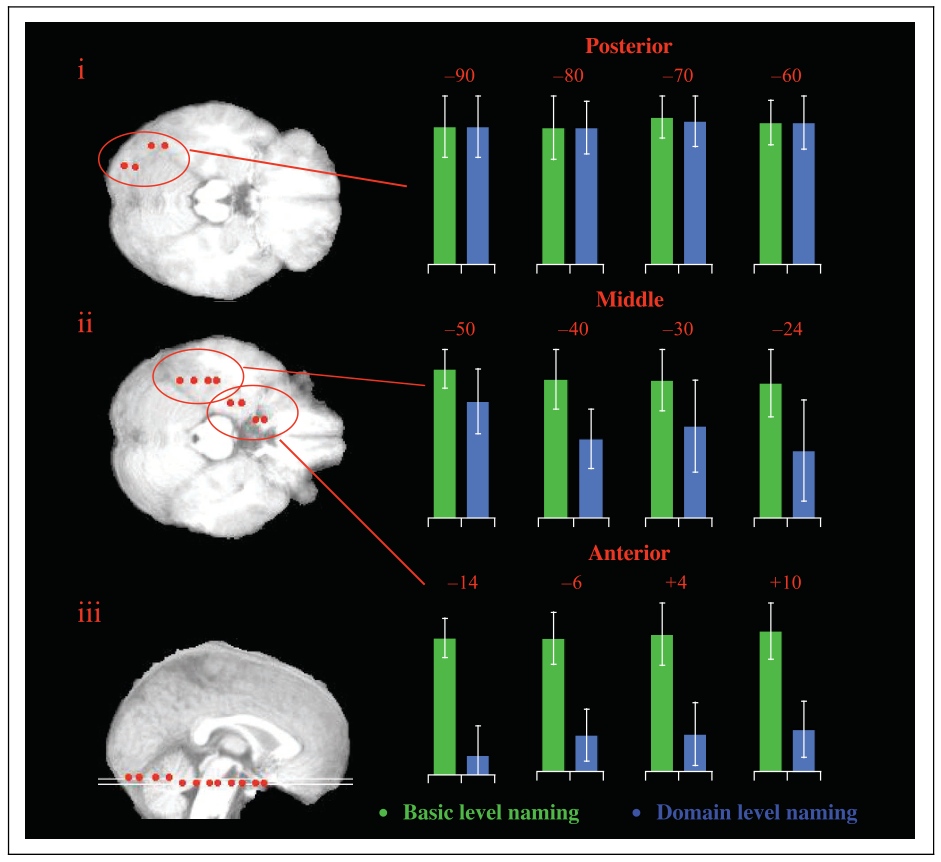
图 3 · 病人解剖像上的激活轮廓:前部损毁恰在基本命名激活区
原文图注:Figure 3. Outlines of the significant activations for the contrasts of domain-level naming minus baseline (in red) and basic-level naming minus baseline (in green) are shown superimposed on T1 anatomical images of four HSE patients. The images were transformed into the standard stereotactic space of Talairach and Tournoux (1988). The activations shown were thresholded at .01 and survived p < .05 correction for multiple comparisons at the cluster level. We use neurological convention where left = left.
把健康人两种命名的显著激活轮廓(领域=红、基本=绿)分别叠到四位病人的 T1 解剖像下层切片上。关键读法是绿、红两色与损伤(像上空洞/萎缩区)的相对位置:与基本层面命名相关的前部激活区(绿色,含嗅周与内嗅皮层)在所有病人中恰落在严重损伤处,而与领域命名相关的后部激活区(红色)相对保留。这一空间对应把 fMRI 的相关性证据提升为"损伤—行为"印证,支撑"主要结果"第 5 条与讨论中的层级解释:激活定位哪类辨别、损伤就毁掉哪类命名能力。
讨论
作者的解读是:加工同一个物体时皮层激活随所需的辨别粒度而系统变化——需要细粒度区分相似物体时招募左半球前内侧颞区(嗅周与内嗅皮层),不需要时激活局限在双侧后部 IT 与梭状回。这直接支持 Bussey 与 Saksida 等基于猕猴的主张:嗅周皮层虽长期被视为物体再认记忆(object-recognition memory)结构,但它在物体识别中的作用是解决特征歧义、支撑细粒度辨别(猕猴嗅周损伤破坏辨别表现,Bussey et al., 2002)。与 Damasio 一系的聚合区框架在总体结构上相容——简单视觉属性组合涉及颞叶后区、多模态特征的复杂分化涉及前区——但有一个分歧点:Grabowski 等(2001)主张左颞极是独特水平命名(unique-level naming)的词语提取中介系统、右颞极负责独特识别,而 Bussey–Saksida 模型把关键角色给了嗅周皮层。作者坦诚本研究无法给出裁决:由于磁敏感伪影,fMRI 无法可靠采集颞极信号(Devlin et al., 2000),故不能确定颞极是否也被激活。
结论的表述很克制而清晰:物体加工通路自枕区沿梭状回延伸至前颞叶内侧区;从本研究可见的差异看,"加工一个物体"不是完全由刺激驱动的固定过程,从物体上抽取哪些细节取决于观察者需要作出的辨别。文中没有进一步讨论命名通道本身(如语音提取)的作用,也没有给出嗅周皮层在两条件下效应量的精确数值(只在图1C 以代表性效应量示意);病人一侧只有两名(RC、JBR)做了与 fMRI 任务直接可比的测试,这些都是文本中可见的局限。
一句话总结
我的看法:这篇论文把"命名说不出细节"这个临床现象翻译成了"层级加工流上不同站点的选择性问题",用同一批图片两种命名水平的对比干净地分离了位置效应——后部梭状回是通用的形状引擎,前内侧颞叶才是细粒度辨别的代价所在。它妙在涉猎者互为镜像:健康人激活的边界,正好是病人行为崩溃的地方;不过甜区也就在这里——颞极测不了,病人只有两位做了可比任务,所以"嗅周 vs 颞极谁才是细粒度辨别的关键"这个作者自己摆出的争议,本文其实留下了尾巴。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[A, B] - Fig2: 提取质量
good,对齐度full,识别面板[] - Fig3: 提取质量
good,对齐度full,识别面板[]
关键事实与局限性声明
- 审校纠偏: 开篇『提供了直接证据』:原文摘要措辞为『These results suggest』,层级结构的跨物种对应是 suggestive 而非直接证明,建议弱化
- 审校纠偏: 研究思路『病人定因果』(见 ISSUE_003)
- 审校纠偏: 一句话总结中『涉猎者互为镜像』疑为笔误(应为『设计』类措辞),虽非事实错误但影响可读性
- 补充要点: 原文被试性别构成『9 men and 12 women』与总数 19 不符(合计 21),系原文内部不一致,笔记照录 19 人而无说明,可加注
- 补充要点: 降低阈值(p<.01)后基本命名条件下左侧距状沟(BA 17)激活亦显著,笔记未提(次要)
- 补充要点: 领域命名条件下右半球激活比左半球延伸更靠前这一半球不对称细节被误用(见 ISSUE_001),其正确形式本身值得保留
- 补充要点: 病人图片命名任务中健康对照的平均错误率(5%)来自 Bunn et al. (1998) 的既有数据而非本研究新测对照组,笔记未注明对照数据来源
- 补充要点: Table 3 中概念一致性 95% 来自作者实验室的外显命名预试(扫描内无法采集命名反应),笔记已提及但可更明确这是预试而非扫描内数据