IT Literature Intelligence 终审版本 (VERIFIED) 论文编号:
005| 原始基线:V0_ZCODE_BASELINE| 语义审核:pass| 图表审核:pass
Dynamics and plasticity of stimulus-selective persistent activity in cortical network models
Brunel · Cerebral Cortex (new York, N.Y.: 1991) · 2003 · Zotero itemID=156
Brunel 在这篇 Cerebral Cortex 论文里用一套极简的平均场网络模型回答了两个问题:皮层回路靠什么维持刺激选择性的持续放电(persistent activity,工作记忆的细胞网络基础),以及联想学习如何通过塑造突触结构改变持续活动的模式。文章先用最简单的双稳态和多稳态网络复习"吸引子"机制,再用同一框架逐个复现下颞叶(inferior temporal cortex, IT)与围嗅皮层(perirhinal cortex)三类经典实验范式——配对联想任务、带颜色切换的配对联想任务、固定序列的延迟样本匹配任务——的电生理发现,是"吸引子网络 + 赫布学习"这条理论线上承前启后的一篇。
研究背景
在清醒猴子身上做的电生理记录发现,凡带工作记忆成分的认知任务,延迟期内都会出现部分细胞对特定刺激的选择性持续放电,遍及颞叶(Fuster、Miyashita、Sakai、Naya、Miller、Erickson 等的多项研究)、顶叶与前额叶皮层(Fuster 与 Alexander 1971,Funahashi 1989–1991)。这种持续活动被视为把一个条目在"活动"状态下保持数秒的能力——即工作记忆(working memory)——的底物。颞叶与前额叶之间有一个重要差别:前额叶的持续活动能抵抗干扰刺激,颞叶不能(Miller 等 1996)。与此同时,多条实验线表明持续活动会被联想学习改变:Miyashita(1988)发现视觉图案以固定顺序反复训练后,神经元对序列近邻图案表现出增强的持续活动;Sakai 与 Miyashita(1991)的配对联想任务中发现"前瞻性"延迟活动;Naya 等(1996)的颜色切换任务中,配对联想神经元恰在屏幕颜色切换后开始放电;Erickson 与 Desimone(1999)在围嗅皮层看到延迟活动从"回顾性"(retrospective)向"前瞻性"(prospective)随训练天数的转变;Asaad 等(1998)在前额叶也观察到学习过程中延迟期活动的动态演化。缺的是一个统一的理论框架:持续活动靠什么维持,学习又如何改写它的模式。
建模方面,主导假说是持续活动由强互连网络中的兴奋性反馈回路维持(Amit 1995、Durstewitz 2000、Wang 2001 等综述)。Amit 及其合作者进一步提出这些反馈回路是学习形成的:Griniasty 等(1993)与 Amit 等(1994)用合适的固定突触结构复现了 Miyashita(1988)的结果,Brunel(1996)证明了 Miyashita 式训练协议确实能诱导出这种突触结构;但配对联想协议此前只在初步水平上被探索过(Brunel 1996;Mongillo 等 2003)。本文因此定位为两部分:第一部分复习持续活动的基本模型,第二部分聚焦"吸引子地形"(attractor landscape)如何被学习重塑——用吸引子语言说,就是看学习参数变化时,哪些网络稳态出现、消失或合并。
研究思路
作者的策略是把问题拆成三级递进的模型。第一步用最简单的单群纯兴奋性网络(均匀耦合)揭示双稳态的基本机制:网络稳态可以画成单神经元 f–I 曲线与一条直线的交点,直线斜率与兴奋性反馈强度成反比,于是"持续活动何时存在"变成一个几何问题。第二步加入真实皮层的两个关键特征——抑制主导(现实自发活动水平的稳定需要强抑制反馈)与稀疏编码(任何时刻只有少数神经元参与某个记忆态)——得到"全局抑制稳定自发活动、选择性兴奋稳定记忆状态"这一双重机制。第三步引入赫布学习(Hebbian learning)塑造的突触结构,用两个参数刻画:选择性突触增强量与联想学习指数,然后考察吸引子地形如何随之变形,把三个行为范式下的实验现象统一翻译成网络状态的出现、消失与相互转移。之所以选平均场(mean-field)方法,是因为稳态可解析求出、能画出参数平面上的"相图",而脉冲神经元网络的模拟只用来做定性对照。
方法
模型神经元用一条解析形式的 f–I 曲线(发放率对输入电流的函数)描述:低输入电流区超线性,对应噪声主导的亚阈值放电(泊松式发放);高输入区亚线性,对应均值驱动的放电。文章全图的演示值取 Ic = 0.2 nA、νc = 10 Hz,标定自 Rauch 等(2003)对皮层锥体细胞的实测。网络含兴奋、抑制两个群体;文中反复使用的具体示例是 4000 个 AMPA 型兴奋性突触(峰值幅度 50 pA、衰减时间常数 2 ms)与 1000 个抑制性突触(84 pA、5 ms)。学习后的突触结构由两个参数决定:编码水平(coding level)f,即单个刺激激活的兴奋性神经元比例(示例取 0.05,即 5%);以及选择性突触增强量 JS,即 LTP(长时程增强)给"对同一刺激有选择性的神经元之间"的突触反馈带来的增量,其余突触经 LTD(长时程抑制)压低,以保证结构化不改变自发活动。联想学习指数 a 表示配对(或序列近邻)群体间突触被增强的比例,是 LTP 与 LTD 相互抵消后的净结果。分析上,稳态解由 f–I 曲线与直线的交点解析给出(附录 1–4 列出全部公式),脉冲网络模拟用于检验有限尺寸效应与状态间转移。
主要结果
- 纯兴奋性均匀耦合网络存在双稳态(bistability):当回环耦合 J 超过约 17 pA.s 时,静默态之外出现一个持续活动态,分岔点上持续态发放率约 17 Hz;此后持续发放率随 J 陡峭上升(J 很大时 J 翻倍可使发放率增加约 40 Hz),其吸引域也迅速扩大。外部输入可在两态间切换网络:J = Jc 时,瞬态刺激 Iext > 0.25Ic 可开启持续态,超极化 Iext < −0.25Ic 可将其关闭(Fig. 2)。
- 在真实的突触数目下,皮层网络必须由抑制主导才能维持现实的自发活动水平,此时纯兴奋性网络的双稳态消失(Fig. 3)。要让刺激选择性的持续活动回来,需要在兴奋性回环中引入学习造成的结构:网络变为多稳态(multistable),每个已学物体对应一个持续活动态;持续态中只有约 5%(编码水平 f)的神经元以 10–35 Hz 放电,其余 95% 保持在 0–10 Hz 的自发水平。自发活动的稳定靠强全局抑制,持续活动的稳定靠亚群内的强选择性兴奋,两个机制独立(Fig. 4)。
- 多稳态的存在范围强烈依赖自发活动水平 νsp:νsp = 2.5 Hz 时为 13.3 < JS < 20(pA.s),5 Hz 时缩到 11.4 < JS < 14.2,7.5 Hz 时 10.6 < JS < 11.6,补为:νsp = 10 Hz(f–I 曲线拐点)时多稳态区间消失,持续活动态转为通过连续转变出现。。非选择性外部输入对持续活动呈倒 U 形(inverted-U)关系——输入增大或减小都能压低持续活动;作者将其与多巴胺 D1 受体激活对前额叶工作记忆的倒 U 形行为与电生理效应(Williams 与 Goldman-Rakic 1995)对应。选择性输入则单调有效:自发活动的存在使网络仅需约 6.4 pA 的输入即可进入持续态,比无自发活动的双稳态网络小 10 倍(Fig. 5)。
- 配对联想学习产生两类吸引子。学习指数 a < 0.06 时存在"个体吸引子":线索群体高放电(>10 Hz),配对群体略高于自发(从 a = 0 的 2 Hz 长到 a ≈ 0.06 时的约 5 Hz),这即"前瞻性"活动;a > 0.06 后个体吸引子消失,只剩两个群体同时高放电的"配对吸引子"。效应所需的突触改动极小:一个神经元平均从配对群体接收 200 个突触,a = 0.05 只对应其中 10 个被增强(Fig. 6)。
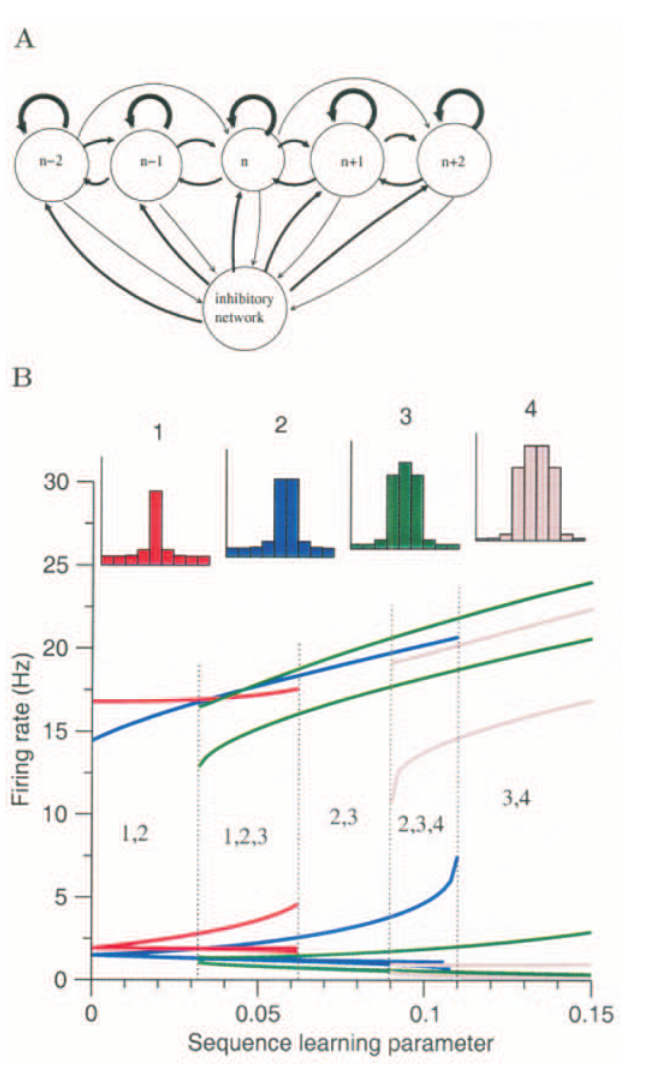
- 两个具体范式的复现。颜色切换任务:延迟中段给配对类群一个弱偏置输入,当偏置 <12 pA 且学习弱时线索记忆态稳定;偏置更强时,依 a 的大小网络或回到自发态、或从线索态 A 切到配对态 A′、或进入两群皆高放电的对称配对态 P——实验中"线索神经元回到基线、配对神经元升高"正对应 A→A′ 转移区(Fig. 7)。固定序列任务:学习使序列近邻间的突触增强,产生分别有 1、2、3、4 个群体强激活的多类持续活动态,且它们在给定 a 下共存;延迟期群体直方图上的"活动塔"随 a 增大而变宽,与 Miyashita(1988)记录到的模式相似(Fig. 8)。
图注解读
图 1 · 单个神经元的 f–I 曲线
原文图注:Figure 1. The single neuron f–I curve φ(I). For input currents below the threshold current Ic (noise-induced firing), the f–I curve is supralinear. Above the threshold, the f–I curve is sub-linear.
这是全篇的"原子":纵轴是发放率 ν,横轴是突触输入电流 I,曲线在阈值电流 Ic 以下超线性(噪声引起的放电区,平均输入低于阈值、发放靠涨落),Ic 以上亚线性(均值驱动的放电区)。它的形状决定了后续所有交点分析:正因为曲线先凸后凹、存在拐点,多稳态区间才会随自发活动水平伸缩。文中演示值 Ic = 0.2 nA、νc = 10 Hz。
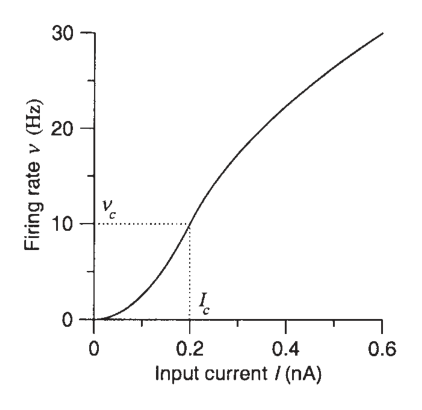
图 2 · 最简单的双稳态网络
原文图注:Figure 2. The simplest bistable network is a purely excitatory network with uniform coupling. (A) Network architecture. (B) The fixed points of network activity can be found plotting a straight line whose slope is inversely proportional to the synaptic excitatory feedback against the f–I curve. (C) Solutions of network activity versus strength of excitatory coupling. Full line: persistent activity (stable fixed point). Dotted line: basin of attraction of persistent activity (unstable fixed point). Note the high slope of the persistent activity versus coupling strength curve beyond the point where it appears at J ∼ 17 pA.s. (D) Solutions of network activity versus strength of external input. This shows the basic mechanism by which the network can switch between the up and the down states.……
A 是单群全 excitatory 的网络结构;B 给出几何解法——网络稳态是 f–I 曲线与一条斜率反比于反馈强度 J 的直线的交点;C 画发放率随 J 的解:实线为稳定持续态,虚线为吸引域边界(不稳定不动点),J ≈ 17 pA.s 处分岔出持续态,其后曲线极陡;D 画发放率随外部输入的解,展示"up/down"两态切换机制。这张图支撑结果第 1 条,是全篇直觉的起点:持续活动 = 回环兴奋把网络推上 f–I 曲线超阈分支的自维持解。
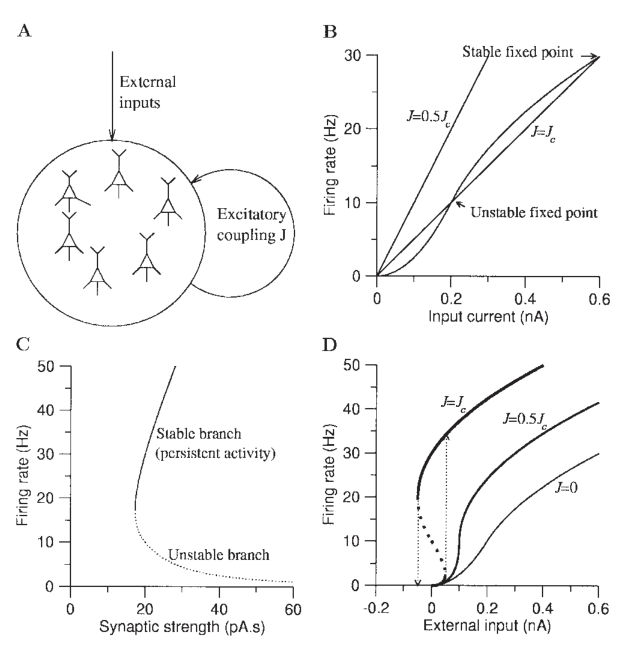
图 3 · 兴奋–抑制网络中的自发活动
原文图注:Figure 3. Spontaneous activity in an excitatory–inhibitory network. (A) Architecture of the excitatory–inhibitory network. (B) Spontaneous activity as a function of external input, for recurrent inhibition exceeding excitation by 20 pA.s. The dotted curve represents the f–I curve of an isolated cell. The strong inhibitory feedback acts to reduce the firing rates of the cells in the network. Compare with Figure 2D.
A 是加入抑制群体的网络结构;B 画自发活动随外部输入的曲线(回环抑制比兴奋强 20 pA.s),虚线是孤立细胞的 f–I 曲线——两相对照可见强抑制反馈把网络发放率压到远低于孤立细胞的水平,且图 B 无双稳态。它与 Fig. 2D 对照着读:这一对比支撑结果第 2 条的前半句——真实参数下纯兴奋性的双稳态在抑制主导网络中不复存在。
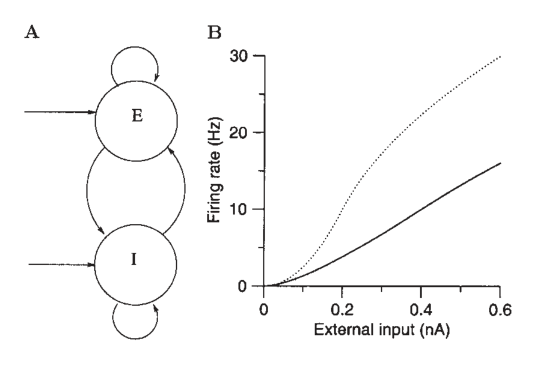
图 4 · 带选择性亚群的网络与多稳态
原文图注:Figure 4. Cortical network with selective sup-populations of excitatory cells. (A) Functional architecture of a network with four subpopulations coding for objects a, b, c, d. The relative strengths of the recurrent connections between excitatory populations are indicated by the thickness of the corresponding arrows. (B) Stationary states of network activity are again obtained by the intersection of the f–I curve and a straight line (cf. Fig. 2B). The straight line is constrained by inhibition to pass through the point of the f–I curve where the firing rate is equal to spontaneous activity and has a slope inversely proportional to the selective synaptic strength JS. (C) Rates in stationary states versus synaptic strength. Spontaneous activity (thin lines), persistent activity (thick lines) and unstable fixed point (dotted line) as a function of synaptic structure parameter JS. There are five set of curves, corresponding to spontaneous activity levels of 0, 2.5, 5, 7.5 and 10 Hz. (D) "Phase diagram" in the plane νsp – JS. The size of the multistable region decreases with νsp and vanishes when νsp = 10 Hz.
A 画学习后的功能结构:四个编码物体 a–d 的亚群,箭头粗细表示群体间回环连接强度(同群粗、异群细);B 说明几何解法的变化——直线被抑制约束为穿过 f–I 曲线上发放率等于自发活动的那一点,斜率反比于选择性突触强度 JS;C 给出五组曲线(对应自发活动 0–10 Hz 五个水平),显示多稳态区间随 νsp 增大而收窄;D 是 νsp–JS 平面上的相图,多稳态区域在 νsp = 10 Hz 时消失。这张图支撑结果第 2、3 条:稀疏编码的持续活动(仅 5% 细胞高放电)与"多稳态区间随自发活动收缩"的核心结论。
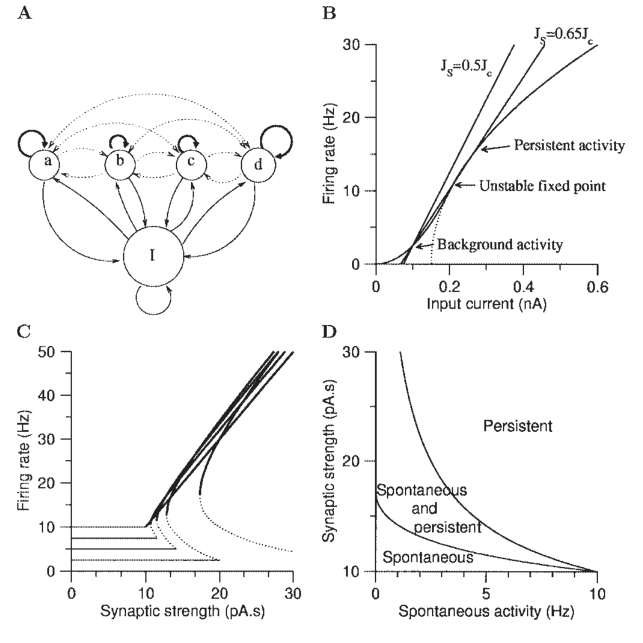
图 5 · 外部输入对自发与持续活动的双重影响
原文图注:Figure 5. Spontaneous and persistent activity as a function of external input. (A) Non-selective external input: input to the whole network. Thin black line: spontaneous activity. Medium line: persistent activity, JS = 0.75Jc. Thick line: persistent activity, JS = Jc. The arrows show how persistent and spontaneous activity are affected by a non-selective external input, starting from a "control" parameter set indicated by the full circles. A decrease in external input decreases both spontaneous and persistent activity, as expected. An increase in external input decreases persistent activity. Above some level of stimulation, spontaneous activity becomes unstable and the network jumps in one of the persistent activity states (vertical arrow). (B) Selective external input: input to one of the subpopulations. Activity of subpopulation under selective stimulation. JS = 0.7Jc, νsp = 2.5 Hz (indicated as dashed line).
A 是非选择性输入(作用于全网):黑细线为自发活动,中/粗线为两种 JS 下的持续活动;从"对照"实心圆出发,输入减小则两者都降,输入增大反而压低持续活动(倒 U 形),超过临界刺激后自发态失稳、网络跳入某个持续态(竖直箭头,对应记忆的自发激活)。B 是选择性输入(只给一个亚群):持续与自发活动都单调增加,虚线标出自发水平 2.5 Hz。这张图支撑结果第 3 条,尤其是"非选择性调节产生倒 U 形"这一可迁移到多巴胺调制实验的预测。
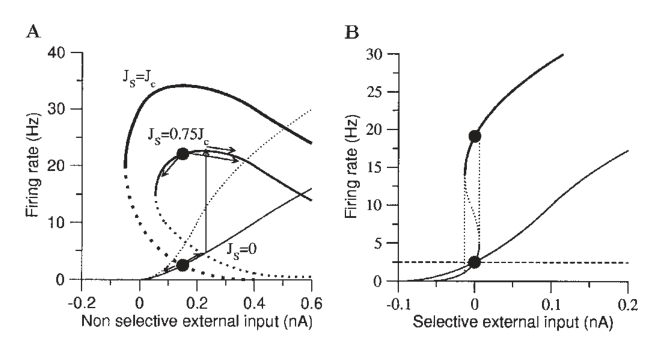
图 6 · 配对联想学习重塑吸引子地形
原文图注:Figure 6. The pair-associate protocol. (A) Architecture of a network after learning of pair associates. (B) Firing rates in memory states, as a function of pair learning index. All the states indicated in this graph are stable states. Black curve: spontaneous activity (activity in subpopulations A, A′, B, B′ shown schematically in inset SAS). …… (C) Diagram showing the regions where the different attractors live, in the space of synaptic variables (JS, a). The thick black curve shows the boundary of the region of existence of the pair states. Thin lines show the boundary of the region of existence of the individual states.
A 画配对学习后的网络结构(A–A′、B–B′ 两对相互增强);B 画各记忆态发放率随配对学习指数 a 的变化——黑色为自发活动,红色系为个体吸引子(a 从 0 到约 0.06 之间:线索群体高放电、配对群体弱放电),绿色系为配对吸引子(两个群体都高放电);C 在 (JS, a) 参数平面上标出各类吸引子的存在区域,粗黑线是配对态边界、细线是个体态边界。这张图支撑结果第 4 条:个体吸引子与配对吸引子的更替发生在很小的学习指数处,且两类态可以在一段参数区间内共存。
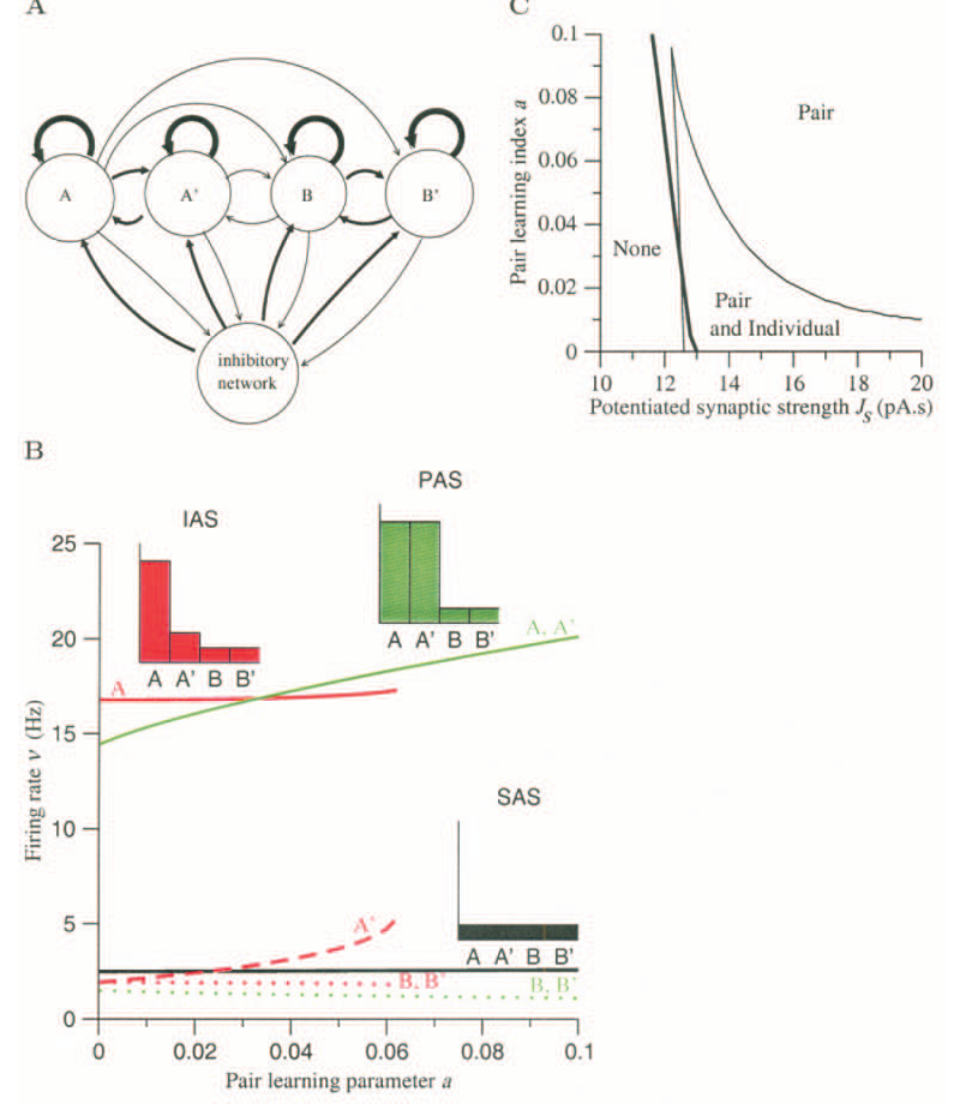
图 7 · 颜色切换:弱偏置输入引发的记忆状态转移
原文图注:Figure 7. Pair associate task with color switch. Effect of a weak biased input to the class of the paired associate in the middle of the delay period, as a function of a and the strength of the biased input (given to half of the network). After presentation of the cue, the network goes to the asymmetric A attractor in which cue neurons are highly active and pair-associate neurons are weakly active. After a weak biased stimulation (similar to color in the experiment of Naya et al., 1996), the network switches to S (non-selective spontaneous activity), A (i.e. stays in same attractor), A′ (goes to the asymmetric attractor in which pair associate has high activity, cue has low activity), or P (symmetrical pair attractor, both types of neurons have high activity).
图的横轴是偏置输入强度、纵轴(按图注描述)是配对学习指数 a,平面上划分出偏置输入后网络去向的四种结局:S(回到非选择性自发活动)、A(留在原吸引子)、A′(切到配对群体高放电的非对称吸引子)、P(两群皆高放电的对称配对吸引子)。它把 Naya 等(1996)实验里"颜色切换后线索神经元回落、配对神经元升高"的现象解释为 A→A′ 转移,支撑结果第 5 条前半。
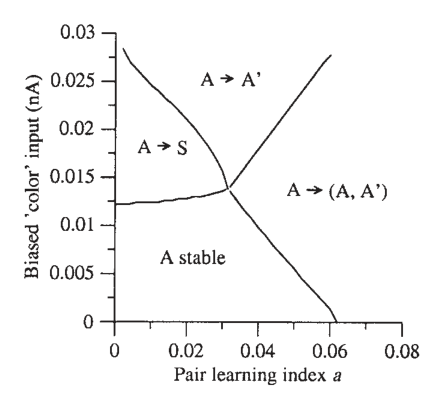
图 8 · 固定序列学习产生的多样持续活动模式
原文图注:Figure 8. Fixed sequence of cue stimuli. (A) Architecture of the network after learning. (B) Persistent activity patterns, labelled by the number of populations strongly active in such patterns (1, red; 2, blue; 3, green; 4, brown; see insets), as a function of sequence learning index. The transitions where states appear or disappear are marked with dotted vertical lines. Similar transitions where more populations become activated occur at higher values of a.
A 画序列学习后的网络结构(沿序列的近邻相互增强);B 画持续活动模式随序列学习指数 a 的变化,按强激活群体数分类标色(1 红、2 蓝、3 绿、4 棕,插图示意各模式),虚线竖线标记态的出现与消失,a 更大处还有更多群体被激活的类似转变。插图中的群体直方图显示"活动塔"随 a 增宽——这正是 Miyashita(1988)在 IT 皮层记录到的近邻增强模式的模型对应物。它支撑结果第 5 条后半。
讨论
作者在讨论中先做"稳健性审计":实验数据大多显示持续/自发发放比约为 3(如 Nakamura 与 Kubota 1995 在颞叶多个区的数据),模型在 νsp = 5 Hz 时多稳态区间为 11.4 < JS < 14.2,对参数变化约有 30% 的稳健度,区间内持续活动 12–20 Hz,绝对值与比值都算现实。他也坦承两处困难:一是脉冲网络中持续态可能被同步振荡破坏,快兴奋与慢抑制的组合易生振荡,而 NMDA 受体介导的慢兴奋有助于稳定非同步的持续活动(Wang 1999;Compte 等 2000);二是持续期放电的变异系数(CV)从栅格图看很大,而此类模型中持续活动发生在超阈值区、放电偏规则,"大 CV 难以被这类模型解释",作者承认尚无系统分析。模型的主要可检验预测是:任何足够改变单细胞兴奋性的药物都应产生倒 U 形效应——多巴胺 D1 拮抗剂离子电泳实验(Williams 与 Goldman-Rakic 1995)是已知实例。与文献的对话集中在两条线:对 Amit 学派早期工作的简化重述与推广(从固定突触结构到学习动力学),以及与 Wang、Durstewitz 等关于调制与前额叶工作记忆模型的互补。
局限方面作者说得很清楚:文中模型的吸引子是离散的,每个吸引子对应一个已学过的物体;但非熟悉条目也能进入工作记忆,这要求极快的 one-shot 学习或完全不同的持续活动机制。对空间或参数型工作记忆所需的连续吸引子模型(Seung 1996;Camperi 与 Wang 1998;Compte 等 2000),作者提醒它们对单细胞与突触参数的异质性本质上不稳健,异质性存在时连续吸引瓦解为一组离散吸引子——而一维情形下那个离散化地形与本文序列学习得到的地形颇为相似。
一句话总结
我读下来最大的收获是这套"几何化"直觉:把网络稳态画成 f–I 曲线与直线的交点,多稳态区间随自发活动水平伸缩、非选择性输入的倒 U 形效应都变成一眼可读的图像,而联想学习被还原为吸引子地形随两个突触参数(JS、a)的连续变形——连"记忆为什么会自发串台"都能解释为有限尺寸噪声驱动的状态间转移。不过作者自己对边界的交代同样值得记住:大 CV 放电和连续变量记忆是这套离散吸引子框架明确够不到的地方。
审校与证据追溯 (Verification & Evidence)
图表审计结果
- Fig1: 提取质量
good,对齐度full,识别面板[] - Fig2: 提取质量
good,对齐度full,识别面板[A, B, C, D] - Fig3: 提取质量
good,对齐度full,识别面板[A, B] - Fig4: 提取质量
good,对齐度full,识别面板[A, B, C] - Fig5: 提取质量
good,对齐度full,识别面板[A, B] - Fig6: 提取质量
good,对齐度full,识别面板[A, B, C] - Fig7: 提取质量
good,对齐度full,识别面板[A] - Fig8: 提取质量
good,对齐度full,识别面板[A, B]
关键事实与局限性声明
- 补充要点: 『Switching the Network Off』整节缺失:原文讨论了关闭持续活动的多条途径——非选择性输入的大幅增减、对持续活动神经元的选择性超极化、呈现另一刺激(Brunel and Wang 2001)、以及脉冲网络中通过同步化放电关闭持续态(Gutkin et al. 2001)。对工作记忆如何『清空』这一功能问题,这是原文明确讨论的内容。
- 补充要点: 有限尺寸脉冲网络中的状态间转移仅在一句话总结中一笔带过(『记忆自发串台』),原文实际区分了三类转移:自发态→记忆态(记忆的无线索自发激活)、记忆态→自发态(短时记忆丢失,Koulakov 2001)、记忆态之间转移(被联想学习增强,可解释实验中显著的『前瞻性』活动逐渐升高现象,Mongillo et al. 2003),后者是连接模型与 Sakai & Miyashita (1991) 等记录的关键环节。
- 补充要点: 固定序列学习的机制解释省略:原文引用 Yakovlev et al. (1998) 的试次间持续活动,说明序列近邻突触增强为何会发生(延迟期+匹配期+试次间隔的持续放电与下一试次线索的时间重叠)。